 2026, Vol. 35


引用本文 |


2. 中国科学院微生物研究所,北京 100101;
3. 首都医科大学附属北京朝阳医院内分泌科,北京 100020
2. Institute of Microbiology, Chinese Academy of Sciences, Beijing 100101, China;
3. Department of Endocrinology, Beijing Chaoyang Hospital, Capital Medical University, Beijing 100020, China
糖尿病肾病是以蛋白尿和肾功能进行性衰退为主要特征的微血管并发症[1],既是糖尿病常见的并发症之一[2],也是终末期肾病的关键危险因素[3]。糖尿病肾病影响了约20%的Ⅰ型糖尿病患者和35%的Ⅱ型糖尿病患者,是糖尿病发病和死亡的主要原因[4]。其急性加重是临床危重症的常见诱因之一,高糖诱导的肾脏炎症损伤可引发全身炎症反应综合征,进一步加重多器官功能障碍,而肾小管上皮细胞损伤及巨噬细胞极化失衡是糖尿病肾病向危重症进展的重要病理基础。糖尿病肾病患者和模型动物肾脏组织中有大量的巨噬细胞浸润[5],肾组织炎性浸润的主要细胞是巨噬细胞[6]。促炎性的M1型巨噬细胞能动态、瞬时和可逆地转化为抑制炎症的M2型巨噬细胞,M1/M2型巨噬细胞极化发生失衡,将加速糖尿病肾病的发展[7]。趋化因子配体5(C-C motif chemokine ligand 5, CCL5)属于CC趋化因子亚家族,能激活和诱导巨噬细胞募集,参与糖尿病肾病的炎症过程[8]。然而,CCL5在糖尿病肾病中的作用及机制的相关研究较少。本研究以小鼠肾小管上皮细胞株TCMK-1细胞和小鼠单核巨噬细胞株RAW264.7细胞为研究对象,使用高糖和CCL5进行处理,同时建立共培养体系,检测CCL5和高糖对TCMK-1和RAW264.7细胞的作用,旨在明确CCL5和糖尿病肾病的关系,并探讨CCL5在糖尿病肾病中的调控机制,为临床干预糖尿病肾病急性加重,改善危重症患者预后提供潜在的分子靶点。
1 材料与方法 1.1 主要试剂小鼠肾小管上皮细胞TCMK-1购自ATCC,货号CCL-139;小鼠单核巨噬细胞白血病细胞RAW264.7购自武汉普诺赛生命科技有限公司,货号CL-0190;EMEM完全培养基(含10%FBS)购自BNCC,货号338137;DMEM高糖基础培养基购自旗赛生物科技(武汉)有限公司,货号QS-S011;RANTES/CCL5 Protein, Mouse (HEK293, Fc)购自MCE,货号HY-P78249;Fetal Bovine Serum购自GIBCO,货号10099-141;Lipopolysaccharides购自MCE,货号HY-D1056;D-Glucose购自MCE,货号HY-B0389;增强型CCK-8试剂盒购自旗赛生物科技(武汉)有限公司,货号QS-S321;CD86和CD206抗体购自Biolegend,货号分别为159203和141703;超纯总RNA提取试剂盒购自康为世纪生物科技股份有限公司,货号CW0581S;HiScript Ⅲ 1st Strand cDNA Synthesis Kit (+gDNA wiper)购自南京诺唯赞生物科技股份有限公司,货号R312-01;UltraSYBR Mixture购自康为世纪生物科技股份有限公司,货号CW0957;CY3-羊抗兔IgG购自BOSTER,货号BA1032;GSDMD、Caspase-1、iNOS和CD206抗体购自武汉三鹰生物技术有限公司,货号分别为20770-1-AP、22915-1-AP、22226-1-AP和81525-1-RR;GAPDH抗体购自成都正能生物技术有限责任公司,货号200306-7E4。
1.2 细胞培养和处理TCMK-1细胞培养基为EMEM完全培养基(含10%胎牛血清),RAW264.7细胞培养基为DMEM高糖培养基(含10%胎牛血清和1%双抗),细胞均置于37 ℃、5% CO2培养箱中培养。取处于对数生长期,生长状态良好的RAW264.7细胞,以3×10⁵个/孔接种于细胞培养6孔共培小室上室;取处于对数生长期,生长状态良好的TCMK-1细胞,以3×105个/孔接种于细胞培养6孔共培小室下室,37℃、5% CO2培养箱中培养过夜。细胞分为4组,NG组、CCL5组、高糖(high glucose, HG)组、HG+CCL5组。使用无血清培养基培养TCMK-1细胞12 h后,再加入葡萄糖刺激48 h,NG组和CCL5组葡萄糖浓度为5.5 mmol/L,HG组和HG+CCL5组葡萄糖浓度为35 mmol/L。CCL5组和HG+CCL5组加入RANTES/CCL5蛋白终浓度为50 ng/mL,与RAW264.7细胞孵育24 h后,加入LPS干预6 h。将处理后的TCMK-1细胞与RAW264.7细胞接种于共培小室培养孵育24 h。
1.3 细胞增殖检测细胞孵育结束后,去除培养液,加入1 mL新鲜完全培养基,每孔加入100 μL的CCK8,37 ℃培养1 h后,使用酶标仪(BIOBASE,型号BK-EL10C)在450 nm处测定吸光度值。
1.4 实时荧光定量PCR使用超纯总RNA提取试剂盒提取细胞总RNA,使用琼脂糖凝胶电泳测定RNA的完整性,并使用NanoDrop微量分光光度计(赛默飞世尔科技公司,ND-2000)测定RNA浓度和纯度。采用HiScript Ⅲ 1st Strand cDNA Synthesis Kit (+gDNA wiper)逆转录合成cDNA,并使用UltraSYBR Mixture试剂盒和荧光定量PCR仪(Applied Biosystems,型号ABI 7500)进行实时荧光定量PCR。程序设置为:95 ℃预变性10 min,45个循环(95℃,15 s;60 ℃,60 s,引物序列见表 1)。
| 名称 | 正向引物(5’~3’) | 反向引物(5’~3’) |
| Caspase-1 | AGACAAGCCCAAGGTGAT | GTGTTGAAGAGCAGAAAGC |
| GSDMD | TGGGATACAGGATACAAGG | CTCAGAGGAGCCAAGGTG |
| iNOS | GTTCTCAGCCCAACAATACAAGA | GTGGACGGGTCGATGTCAC |
| CD206 | ATGGATGTTGATGGCTACTGG | TTCTGACTCTGGACACTTGC |
| GAPDH | AAATTCAACGGCACAGTCAA | TAGACTCCACGACATACTCAGCA |
向细胞沉淀中加入95~110 μL的RIPA裂解缓冲液(含蛋白磷酸酶抑制剂)裂解细胞,获得细胞中的总蛋白,并使用BCA蛋白浓度测定试剂盒对总蛋白进行定量。蛋白变性后经十二烷基硫酸钠聚丙烯酰胺凝胶电泳分离、转膜和封闭后,加入一抗Caspase-1(1:2 000)、GSDMD(1:2 000)、iNOS(1:1 000)、CD206(1:5 000)和GAPDH(1:8 000),在4 ℃条件下孵育12 h。充分洗涤后,加入二抗(1:10 000),室温条件下,摇床上孵育2 h。充分洗涤后,加入化学发光液,显色曝光后,使用Image J软件进行定量分析。
1.6 免疫荧光实验使用4%的多聚甲醛固定爬片15 min,并使用0.5%Triton X-100将细胞通透处理5 min。使用10%正常山羊血清,室温封闭30 min。加入兔多抗GSDMD(1:200)置于4 ℃冰箱中孵育15 h。TBST冲洗后,加入荧光二抗CY3-羊抗兔IgG(1∶100),湿盒中37 ℃孵育1 h。PBST冲洗后,滴加DAPI避光孵育5 min,使用PBST洗去多余的DAPI。封片晾干后,使用荧光显微镜(奥林巴斯,型号BX53)观察并采集图像。
1.7 流式细胞术检测CD86和CD206的表达收集RAW264.7细胞,并计数,每流式小管含1×10⁶个细胞。加入5 μL CD86和CD206抗体,4 ℃避光孵育30 min。使用洗液清洗2次后,加入100 μL含0.5%牛血清白蛋白的磷酸盐缓冲液重悬,并使用流式细胞仪(BECKMAN,型号CytoFLEX)检测分析。
1.8 统计学方法本研究所有细胞实验均设置3次独立生物学重复,每次生物学重复包含3次技术重复。使用SPSS 20.0软件进行统计分析,计量数据资料以均值±标准差(x±s)表示,完成正态性检验,结果显示所有数据均符合正态分布,多组间使用单因素方差分析,两两比较使用LSD-t检验。以P < 0.05为差异有统计学意义。
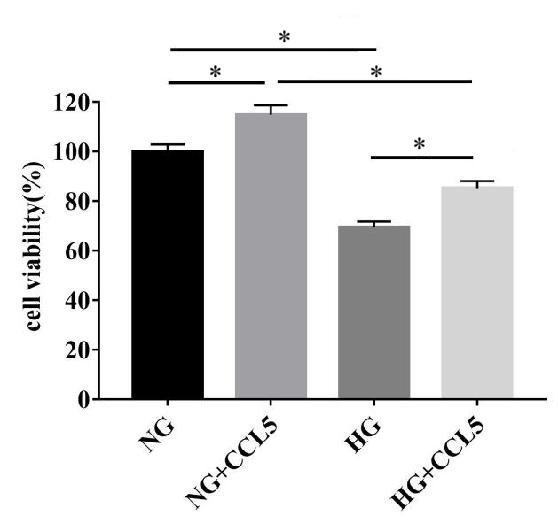
2 结果 2.1 CCL5逆转高糖所致的肾小管上皮细胞增殖抑制与NG组比较,HG组肾小管上皮细胞活性降低了30.6%,而NG+CCL5组细胞活性增加了14.74%(图 1)。与HG组比较,HG+CCL5组细胞活性增加了15.84%(图 1)。这表明高糖可抑制肾小管上皮细胞增殖,而CCL5可促进肾小管上皮细胞增殖。
|
| 注:cell viability为细胞存活率;NG为阴性对照;NG+CCL5为阴性对照+趋化因子配体5;HG为高糖;HG+CCL5为高糖+趋化因子配体5。aP < 0.05。 图 1 不同处理组肾小管上皮细胞活性 Fig 1 Activity of renal tubular epithelial cells in different treatment groups |
|
|
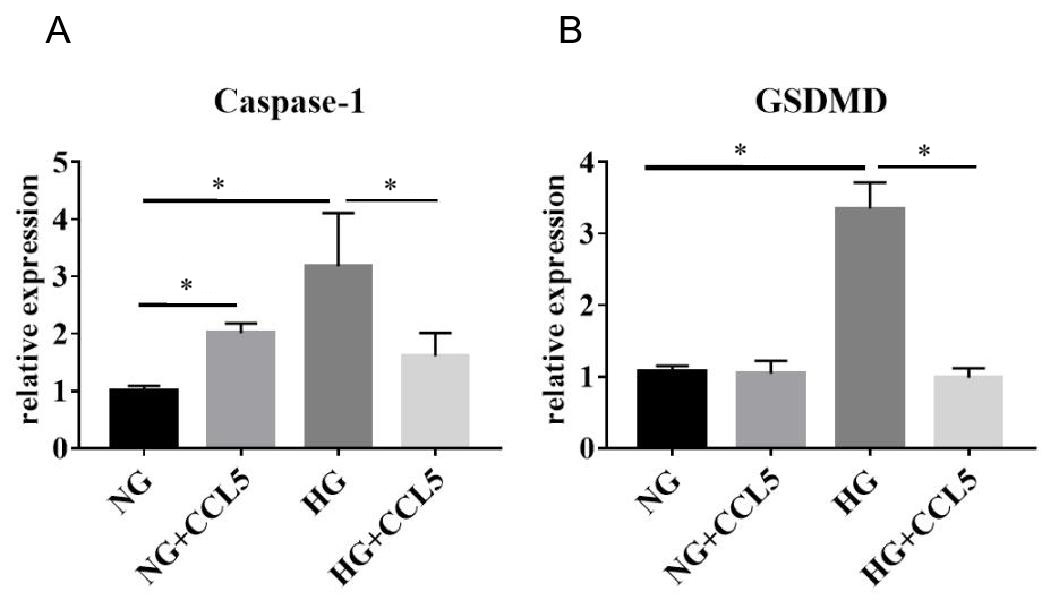
与NG组比较,HG组Caspase-1和GSDMDmRNA的表达均上调(图 2)。与HG组比较,HG+CCL5组Caspase-1和GSDMDmRNA的表达均下调(图 2)。这表明高糖可促进细胞焦亡相关基因mRNA的表达,而CCL5能抑制细胞焦亡相关基因mRNA的表达。
|
| 注:A为Caspase-1相对表达强度比较; B为GSDMD相对表达强度比较;relative expression为相关表达;NG为阴性对照;NG+CCL5为阴性对照+趋化因子配体5;HG为高糖;HG+CCL5为高糖+趋化因子配体5。aP < 0.05。 图 2 RT-qPCR检测Caspase-1和GSDMDmRNA的表达 Fig 2 The expression of Caspase-1 and GSDMD mRNA was detected by RT-qPCR |
|
|
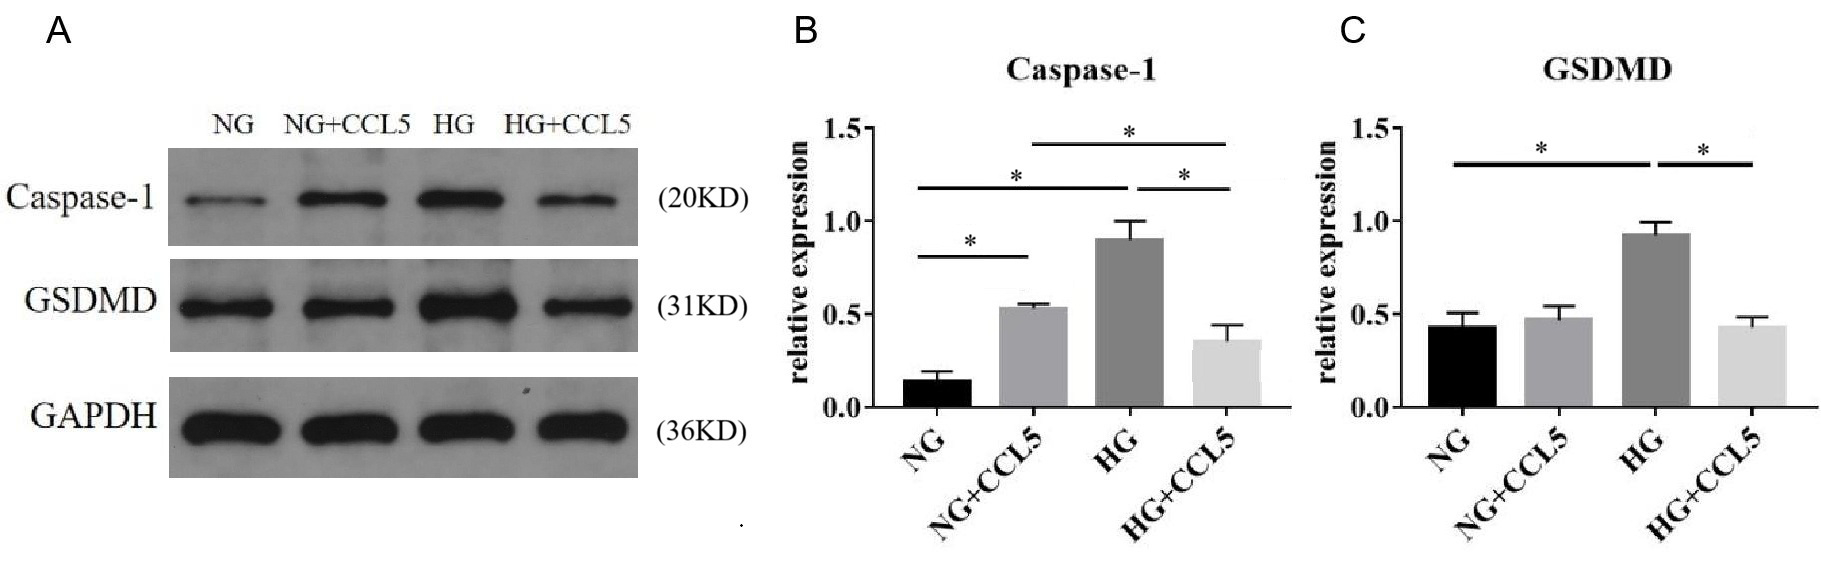
与NG组比较,HG组Caspase-1和GSDMD蛋白的表达均增加(图 3)。与HG组比较,HG+CCL5组Caspase-1和GSDMD蛋白的表达均降低(图 3)。这表明高糖可促进细胞焦亡相关蛋白的表达,而CCL5能抑制细胞焦亡相关蛋白的表达。
|
| 注:A为Caspase1和GSDMD蛋白的表达条带;B为Caspase1相对表达强度比较;C为GSDMD相对表达强度比较;relative expression为相对表达;NG为正常糖对照组;NG+CCL5为正常糖+ 趋化因子配体5组;HG为高糖组;HG+CCL5为高糖+ 趋化因子配体5组。aP < 0.05 图 3 Western Blot检测Caspase1和GSDMD蛋白的表达 Fig 3 The expression of Caspase1 and GSDMD protein detected by Western Blot |
|
|
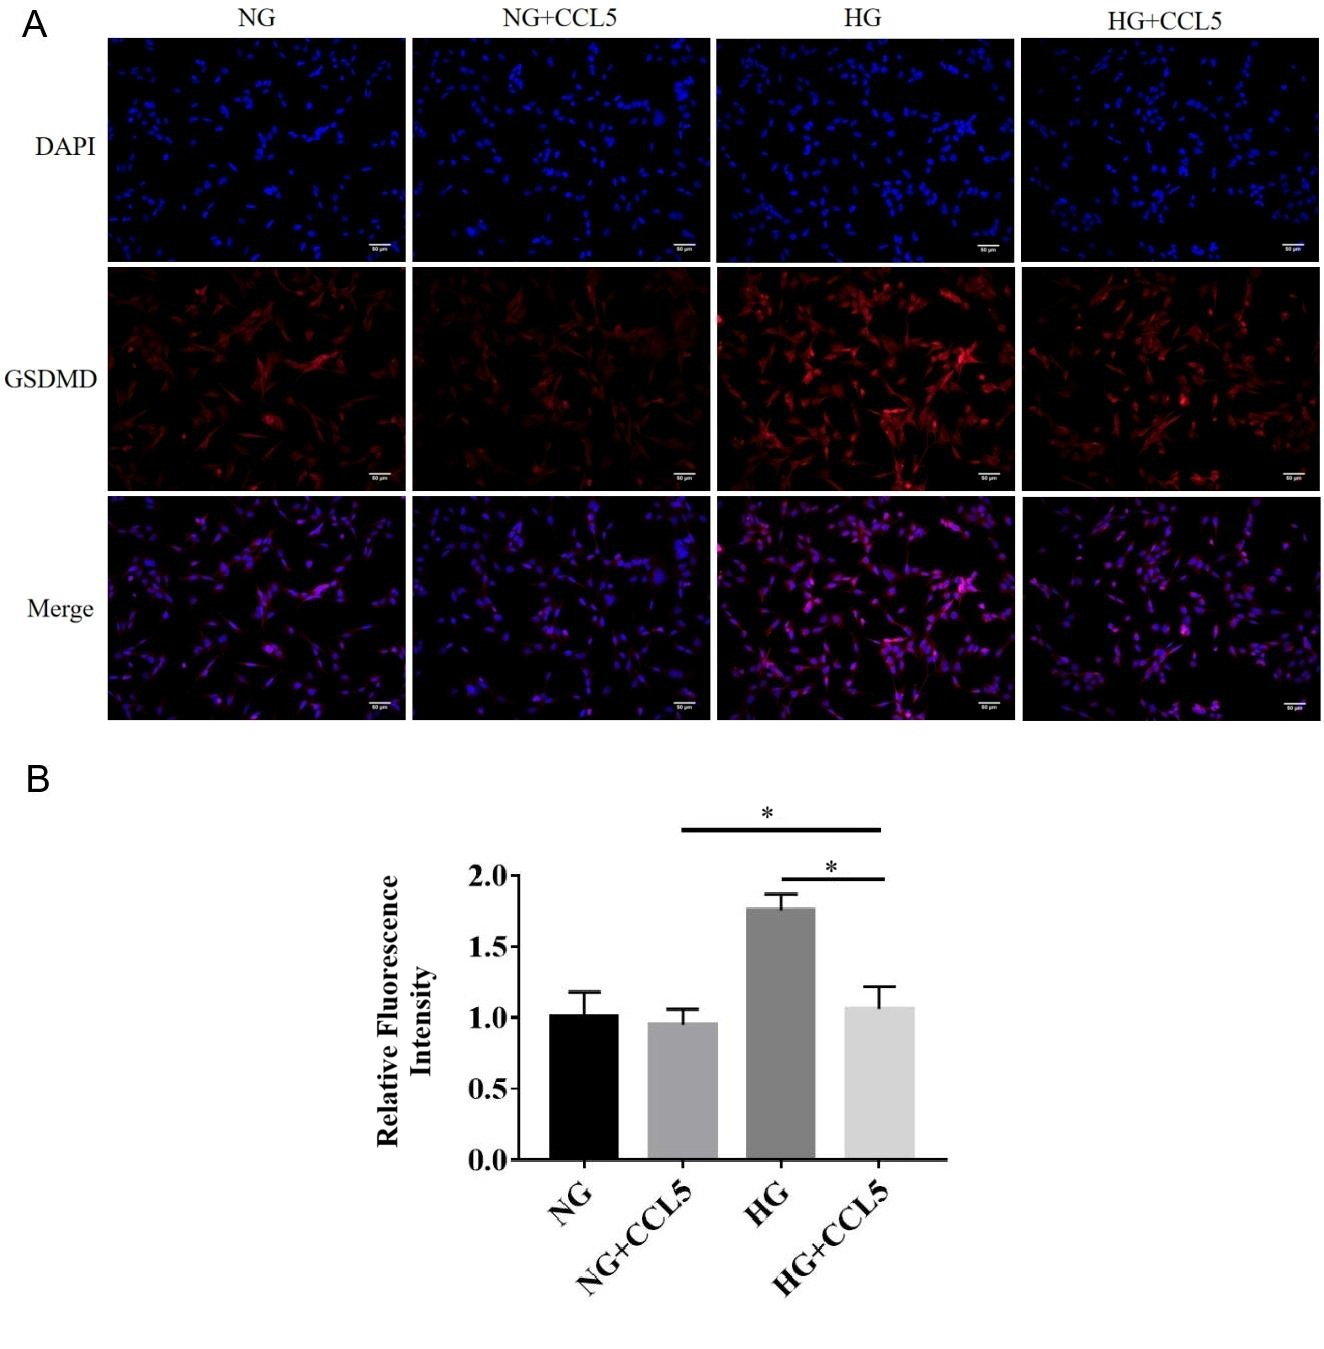
与NG组比较,HG组GSDMD荧光表达增强。然而,与HG组比较,HG+CCL5组GSDMD荧光表达减弱(图 4)。
|
| 注:NG为阴性对照;NG+CCL5为阴性对照+趋化因子配体5;HG为高糖;HG+CCL5为高糖+趋化因子配体5(免疫荧光染色,×200,比例尺50 μm)。aP < 0.05 图 4 (A)免疫荧光检测GSDMD蛋白的表达,(B)GSDMD相对荧光强度统计 Fig 4 (A) Immunofluorescent detection of GSDMD protein expression; (B) Statistical analysis of GSDMD relative fluorescence intensity |
|
|
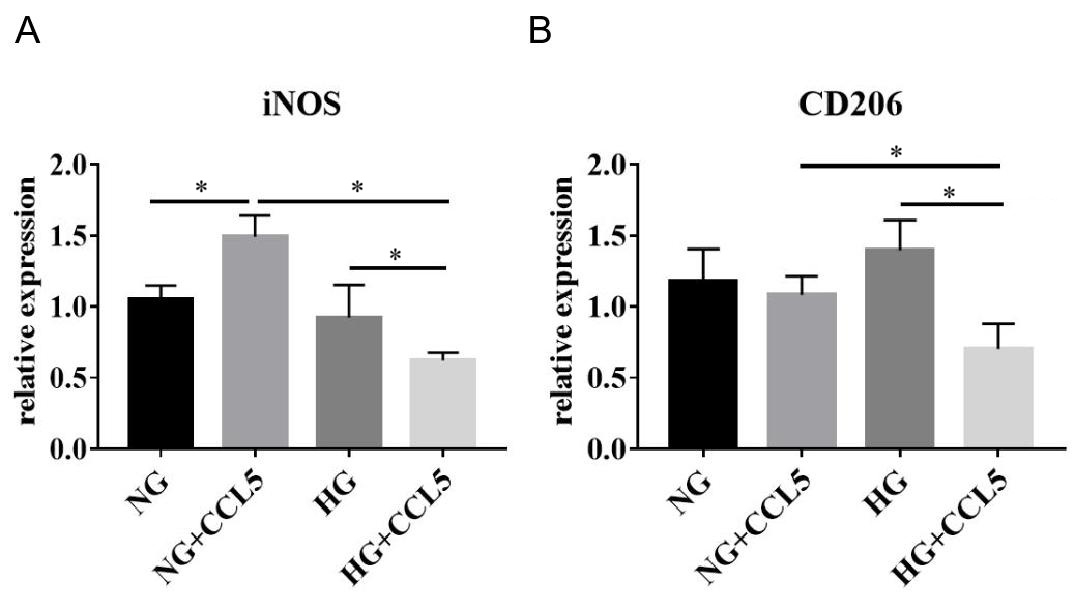
与NG组比较,NG+CCL5组iNOS基因表达上调(图 5)。然而,与HG组比较,HG+CCL5组iNOS和CD206基因的表达均下调(图 5)。这表明正常培养条件下,CCL5能促进iNOS基因的表达,但在高糖刺激下CCL5能抑制iNOS和CD206基因的表达。这也表明CCL5能调控iNOS和CD206基因的表达。
|
| 注:A为iNOS相对表达强度比较;B为CD206相对表达强度比较;relative expression为相关表达;NG为对照;NG+CCL5为对照+趋化因子配体5;HG为高糖;HG+CCL5为高糖+趋化因子配体5。aP < 0.05。 图 5 RT-qPCR检测iNOS和CD206mRNA的表达 Fig 5 The expression of iNOS and CD206 mRNA was detected by RT-qPCR |
|
|
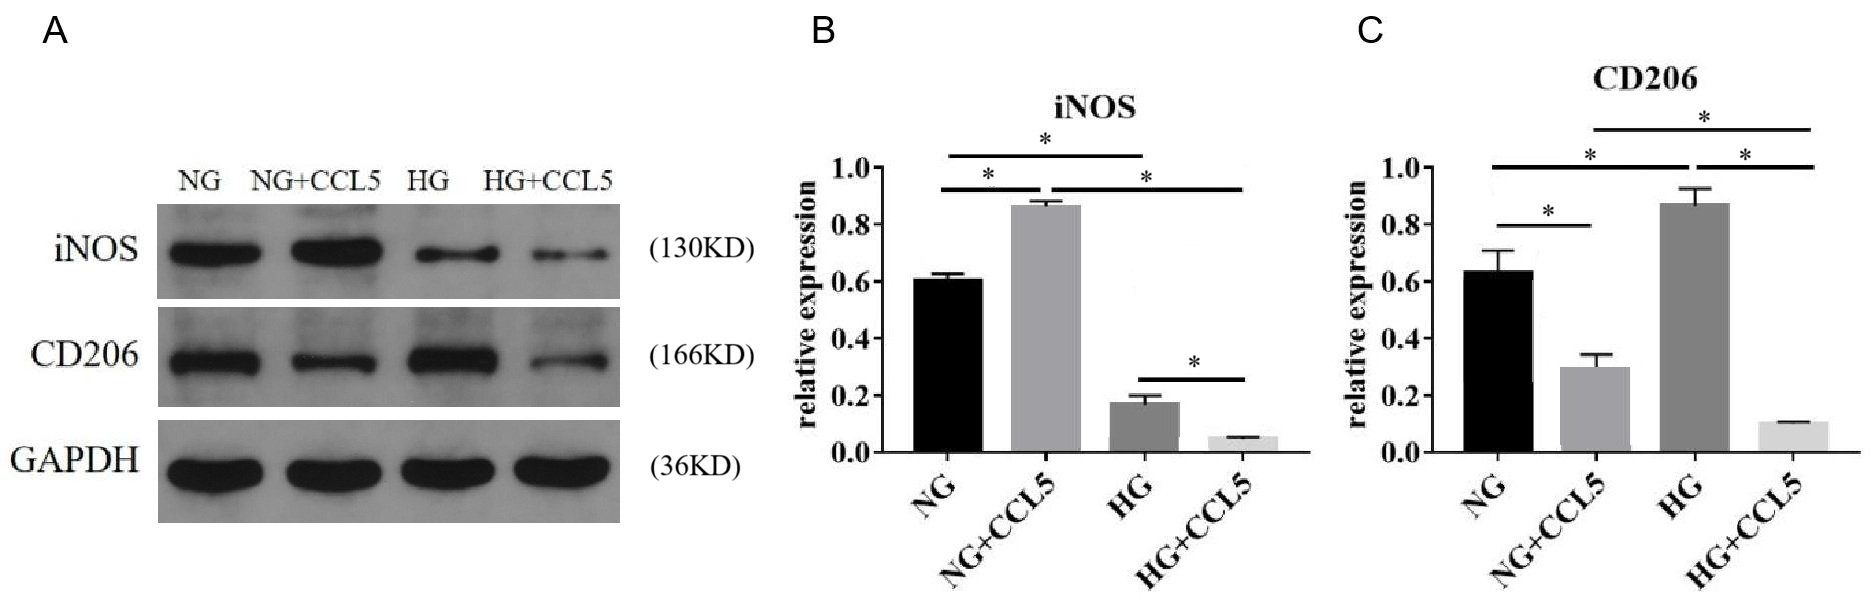
与NG组比较,HG组iNOS蛋白的表达降低,而CD206蛋白的表达增加(图 6)。与NG组比较,NG+CCL5组iNOS蛋白的表达增加,而CD206蛋白的表达降低(图 6)。与HG组比较,HG+CCL5组iNOS和CD206蛋白的表达均降低(图 6)。这表明高糖能抑制iNOS蛋白的表达和促进CD206蛋白的表达;正常培养条件下,CCL5能促进iNOS蛋白的表达和抑制CD206蛋白的表达,但在高糖刺激下CCL5既能抑制iNOS蛋白的表达也能抑制CD206蛋白的表达。
|
| 注:A为iNOS和CD206蛋白的Western Blot条带;B为iNOS相对表达强度统计;CvCD206相对表达强度统计;relative expression为相对表达;NG为正常糖对照组;NG+CCL5为正常糖+ 趋化因子配体5组;HG为高糖组;HG+CCL5为高糖+ 趋化因子配体5组。aP < 0.05 图 6 Western Blot检测iNOS和CD206蛋白的表达及相对表达分析 Fig 6 Western Blot detection of iNOS and CD206 protein expression and their relative expression analysis |
|
|
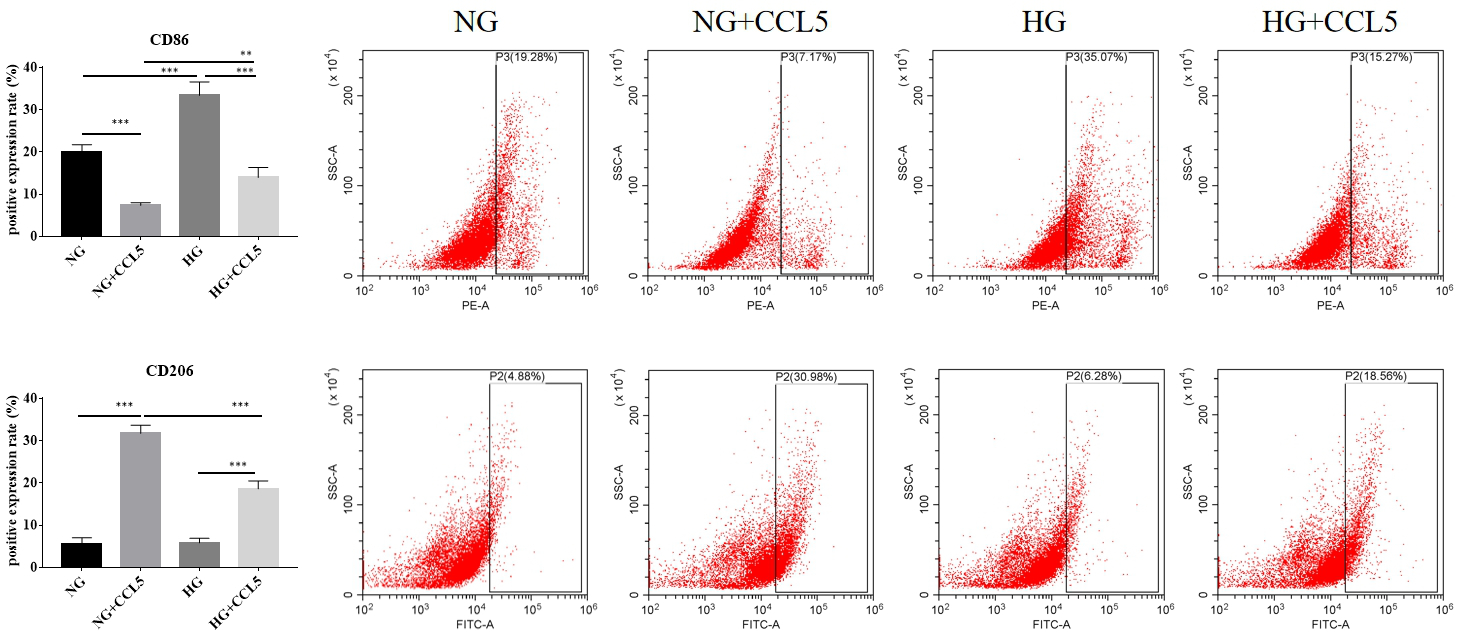
与NG组比较,HG组RAW264.7细胞CD86阳性表达率增加了13.3%(图 7)。与NG组比较,NG+CCL5组RAW264.7细胞CD86阳性表达率降低了12.71%,而CD206阳性表达率增加了26.27%(图 7)。与HG组比较,HG+CCL5组RAW264.7细胞CD86阳性表达率降低了19.4%,而CD206阳性表达率增加了12.78%(图 7)。这表明高糖处理促进了M1型巨噬细胞的表达,而CCL5抑制了M1型巨噬细胞的表达,并促进了M2型细胞的表达,促进了巨噬细胞表型从M1型转变为M2型。
|
| 注:A为CD86阳性表达率; B为CD206阳性表达率;positive expression rate为阳性表达率;SSC-A为侧向散射光面积;PE-A为藻红蛋白面积;FITC-A为异硫氰酸荧光素面积;NG为对照;NG+CCL5为对照+趋化因子配体5;HG为高糖;HG+CCL5为高糖+趋化因子配体5。aP < 0.05,bP < 0.01,cP < 0.001 图 7 流式细胞术检测CD86和CD206的阳性表达率 Fig 7 The positive expression rates of CD86 and CD206 were detected by flow cytometry |
|
|
糖尿病肾病发病过程中存在多种形式的细胞死亡,例如凋亡、坏死、自噬、焦亡和铁死亡等[9]。细胞焦亡是近年来发现的一种促炎性和程序性的细胞死亡形式,肾脏细胞的程序性死亡会加重肾损伤,细胞焦亡对糖尿病肾病的发生发展具有重要作用[10]。经典细胞焦亡途径主要依赖于Caspase-1的激活[11-12],活化的Caspase-1可以直接将GSDMD裂解成C端和N端,有成孔活性的N端可以插入细胞膜,导致细胞膜孔形成和细胞焦亡[13]。本研究结果显示高糖刺激后,小鼠肾小管上皮细胞Caspase-1和GSDMD mRNA及蛋白的表达均上调,并且GSDMD荧光表达增强,这表明高糖诱导小鼠肾小管上皮细胞发生了焦亡。同时,本研究发现CCL5可以逆转高糖诱导的肾小管上皮细胞焦亡。高糖能刺激肾脏CCL5的表达,随着巨噬细胞浸润,CCL5的上调可能在糖尿病肾病的发生和发展中起着关键作用[14]。一方面,高糖会增加小鼠肾脏CCL5的水平,CCL5加速糖尿病肾病的发展[15]。糖尿病肾病大鼠肾脏CCL5水平上调,通过下调CCL5可以缓解肾脏病理[16]。尿中的CCL5与Ⅱ型糖尿病肾病的严重程度相关[17]。糖尿病肾病患者尿沉渣中CCL5 mRNA上调,尿沉渣CCL5 mRNA与肾功能下降和肾间质纤维化程度有关,可作为糖尿病肾病的潜在预后生物标志物[18]。上调CCL5可能会间接地使肾组织中单核巨噬细胞大量浸润,进而可能促进小管间质损伤和纤维化,从而导致细胞增殖和细胞外基质成分堆积,CCL5可能参与加重糖尿病肾病的慢性炎症过程[8]。CCL5是糖尿病肾病免疫细胞浸润相关的基因[19],CCL5基因可能与糖尿病肾病的发展过程相关[20]。CCL5启动子-28G基因型可能是Ⅱ型糖尿病肾病的独立危险因素,并且可能加剧肾病的发展[21]。通过调控CCL5的表达水平可以减少肾纤维化和改善肾损伤[22]。另一方面,CCL5启动子单核苷酸多态性与糖尿病肾病没有直接的关联性[14],CCL5基因变异与糖尿病肾病之间没有显著的关联性[23]。同时,CCL5在T细胞迁移至糖尿病肾病中的确切作用尚不清楚[24]。由此可知,CCL5在糖尿病肾病中发挥重要作用,虽然在以往的研究中CCL5属于促炎趋化因子,但其在糖尿病肾病中的作用仍不明确。本研究结果显示CCL5的干预可以抑制高糖诱导的肾小管上皮细胞焦亡。
为进一步探究CCL5逆转高糖诱导的肾小管上皮细胞焦亡的作用机制,笔者对与肾小管上皮细胞共培养的小鼠单核巨噬细胞的表型进行了分析。已知CD86为M1型巨噬细胞的标志物,而CD206为M2型巨噬细胞的标志物[25-26]。本研究结果显示高糖处理后CD86阳性表达率增加,而CCL5处理后CD86阳性表达率降低,并且CD206阳性表达率增加。这表明高糖促进了M1型巨噬细胞的表达,而CCL5抑制了M1型巨噬细胞的表达,并促进了M2型细胞的表达。CCL5可通过调控M1和M2型巨噬细胞极化的平衡来逆转高糖诱导的肾小管上皮细胞焦亡。CCL5的生物学效应主要由其特异度受体CCR1、CCR5介导,二者在巨噬细胞表面高表达,是调控巨噬细胞极化的关键靶点。本研究中CCL5调控巨噬细胞极化的效应,推测亦依赖CCR1/CCR5受体的介导,其具体受体亚型及下游信号通路仍有待深入验证。体外实验研究报道CCL5可能是通过CCR1受体诱导巨噬细胞极化[27]。
综上所述,高糖可抑制小鼠肾小管上皮细胞活性、促进肾小管上皮细胞焦亡,及诱导M1型巨噬细胞极化。CCL5和高糖对肾小管上皮细胞的作用是相反的,CCL5可逆转高糖诱导的肾小管上皮细胞损伤,并转化高糖诱导的巨噬细胞表型。CCL5可通过调控M1和M2型巨噬细胞极化的平衡来逆转高糖诱导的肾小管上皮细胞焦亡。
本研究初步阐明了CCL5通过调控M1/M2型巨噬细胞极化逆转高糖诱导肾小管上皮细胞焦亡的作用及机制,但仍存在一定局限性。本研究仅构建体外细胞共培养模型开展实验,未建立糖尿病肾病模型小鼠进行体内验证,无法明确该作用在体内生理微环境中的有效性及临床转化价值。同时本研究对探索CCL5发挥调控作用的特异度受体通路的研究不够深入,虽推测其效应依赖CCR1/CCR5受体介导,但未开展相关验证实验,机制深度仍需完善;且本研究仅采用单一浓度的CCL5进行干预,未设置浓度梯度,无法分析CCL5对巨噬细胞极化及肾小管上皮细胞焦亡的浓度依赖性效应。
针对上述研究局限性,后续将开展系列深入研究,构建糖尿病肾病模型小鼠,通过体内实验验证CCL5对肾脏组织损伤、巨噬细胞极化及肾小管上皮细胞焦亡的调控作用,为临床应用提供更可靠的实验依据;设计CCR1/CCR5受体拮抗剂干预、siRNA靶向干扰等实验,明确CCL5调控巨噬细胞极化的特异度受体亚型及下游信号传导通路,进一步完善机制研究;最后,设置不同CCL5浓度梯度,探究其调控效应的剂量依赖性,筛选出发挥保护作用的最佳有效浓度,为后续潜在的临床药物研发提供参考。
利益冲突 所有作者声明无利益冲突
作者贡献声明 张蓉和柳泽深负责实验操作和论文撰写;秦建成负责数据分析;冯小萌负责课题设计与论文修改
| [1] | 唐璇璇, 董邓波, 邹圣强, 等. 1990-2019年中国糖尿病肾病疾病负担分析及发病预测研究[J]. 现代预防医学, 2024, 51(13) 2336-2341, 2392. DOI:10.20043/j.cnki.MPM.202403184 |
| [2] | 周昱君, 彭良岳. 从浊毒病机制论探讨糖尿病肾病[J]. 中医临床研究, 2024, 16(14): 118-121. DOI:10.3969/j.issn.1674-7860.2024.14.022 |
| [3] | 徐静鸽, 张之钰, 武佳慧, 等. 小分子药物治疗糖尿病肾病的药理作用研究进展[J]. 现代药物与临床, 2024, 39(1): 244-250. DOI:10.7501/j.issn.1674-5515.2024.01.041 |
| [4] | 刘天华, 马冲, 王百才, 等. 基于谱效关系探讨肉苁蓉水提物抗糖尿病肾病的有效成分及其作用机制[J]. 中国现代应用药学, 2024, 41(10): 1313-1323. DOI:10.13748/j.cnki.issn1007-7693.20233157 |
| [5] | 曹爽, 尹晓琳. 巨噬细胞与糖尿病肾病[J]. 医学综述, 2017, 23(18): 3675-3679. DOI:10.3969/j.issn.1006-2084.2017.18.030 |
| [6] | 宋振强, 王靖宇. 巨噬细胞在糖尿病肾病发生发展中的作用及可能机制[J]. 中国慢性病预防与控制, 2019, 27(11): 872-875. DOI:10.16386/j.cjpccd.issn.1004-6194.2019.11.019 |
| [7] | 王文茹, 王新慧, 闫蕾, 等. 中医药干预糖尿病肾脏疾病的潜在途径: 巨噬细胞极化[J]. 中国中药杂志, 2024, 49(15): 4044-4053. DOI:10.19540/j.cnki.cjcmm.20240412.708 |
| [8] | 李桂林, 梁尚栋. 趋化因子5及其受体CCR5与糖尿病并发症[J]. 中国药理学通报, 2011, 27(10): 1333-1337. DOI:10.3969/j.issn.1001-1978.2011.10.001 |
| [9] | Zuo Y, Chen L, Gu HP, et al. GSDMD-mediated pyroptosis: a critical mechanism of diabetic nephropathy[J]. Expert Rev Mol Med, 2021, 23: e23. DOI:10.1017/erm.2021.27 |
| [10] | 王月盈, 伊桐凝. 细胞焦亡在糖尿病肾病中作用及中药干预研究进展[J]. 实用中医内科杂志, 2024, 38(10): 79-83. DOI:10.13729/j.issn.1671-7813.Z20232401 |
| [11] | 韦双, 高维崧, 窦金萍, 等. 细胞焦亡分子机制及其调控[J]. 生物技术进展, 2023, 13(6): 868-874. DOI:10.19586/j.2095-2341.2023.0114 |
| [12] | 王瑞楠, 孙艺, 韩宇博. 基于细胞焦亡探讨中医药防治糖尿病及其并发症的研究进展[J]. 疑难病杂志, 2023, 22(5): 552-556. DOI:10.3969/j.issn.1671-6450.2023.05.022 |
| [13] | 杨倩, 叶琨. 细胞焦亡在肾脏疾病中的作用[J]. 医学信息, 2023, 36(21): 178-183. DOI:10.3969/j.issn.1006-1959.2023.21.042 |
| [14] | Joo KW, Hwang YH, Kim JH, et al. MCP-1 and RANTES polymorphisms in Korean diabetic end-stage renal disease[J]. J Korean Med Sci, 2007, 22(4): 611. DOI:10.3346/jkms.2007.22.4.611 |
| [15] | Lee CP, Nithiyanantham S, Hsu HT, et al. ALPK1 regulates streptozotocin-induced nephropathy through CCL2 and CCL5 expressions[J]. J Cellular Molecular Medi, 2019, 23(11): 7699-7708. DOI:10.1111/jcmm.14643 |
| [16] | Liu GL, Shen YJ, You LJ, et al. Tripterygium wilfordii polyglycoside suppresses inflammatory cytokine expression in rats with diabetic nephropathy[J]. Chin J Cell Mol Immunol, 2014, 30(7): 721-724. |
| [17] | Yi B, Hu XF, Zhang H, et al. Nuclear NF-κB p65 in peripheral blood mononuclear cells correlates with urinary MCP-1, RANTES and the severity of type 2 diabetic nephropathy[J]. PLoS One, 2014, 9(6): e99633. DOI:10.1371/journal.pone.0099633 |
| [18] | Feng ST, Yang Y, Yang JF, et al. Urinary sediment CCL5 messenger RNA as a potential prognostic biomarker of diabetic nephropathy[J]. Clin Kidney J, 2022, 15(3): 534-544. DOI:10.1093/ckj/sfab186 |
| [19] | Wang S, Chen SW, Gao YX, et al. Bioinformatics led discovery of biomarkers related to immune infiltration in diabetes nephropathy[J]. Medicine, 2023, 102(35): e34992. DOI:10.1097/md.0000000000034992 |
| [20] | Bi H, Ma L, Zhong X, et al. Multiple-microarray analysis for identification of key genes involved in diabetic nephropathy[J]. Medicine, 2023, 102(46): e35985. DOI:10.1097/md.0000000000035985 |
| [21] | Nakajima K, Tanaka Y, Nomiyama T, et al. RANTES promoter genotype is associated with diabetic nephropathy in type 2 diabetic subjects[J]. Diabetes Care, 2003, 26(3): 892-898. DOI:10.2337/diacare.26.3.892 |
| [22] | Liang JJ, He JX, Gao YB, et al. Exploring the potential mechanism of Tang-Shen-Ning decoction against diabetic nephropathy based on the combination of network pharmacology and experimental validation[J]. Evid Based Complementary Altern Med, 2021, 2021: 1025053. DOI:10.1155/2021/1025053 |
| [23] | Pettigrew KA, McKnight AJ, Patterson CC, et al. Resequencing of the CCL5 and CCR5 genes and investigation of variants for association with diabetic nephropathy[J]. J Hum Genet, 2010, 55(4): 248-251. DOI:10.1038/jhg.2010.15 |
| [24] | Navarro-González JF, Mora-Fernández C, de Fuentes MM, et al. Inflammatory molecules and pathways in the pathogenesis of diabetic nephropathy[J]. Nat Rev Nephrol, 2011, 7(6): 327-340. DOI:10.1038/nrneph.2011.51 |
| [25] | 朱琳, 许桂莲, 谢攀, 等. Fgl2对小鼠急性肾损伤中巨噬细胞极化的作用[J]. 陆军军医大学学报, 2024, 46(13): 1467-1476. DOI:10.16016/j.2097-0927.202401019 |
| [26] | 乔春林, 吴子毅, 孙湛, 等. BCG感染巨噬细胞对肾小管上皮细胞损伤和修复的影响[J]. 中国免疫学杂志, 2024, 40(5): 1036-1041. DOI:10.3969/j.issn.1000-484X.2024.05.020 |
| [27] | 袁铭, 王乐. 趋化因子配体5通过诱导巨噬细胞极化促进主动脉夹层发生[J]. 武汉大学学报(医学版), 2025, 46(4): 463-468. DOI:10.14188/j.1671-8852.22024.0148 |