 2026, Vol. 35


引用本文 |


2. 徐州医科大学附属医院急诊医学科,徐州 221006;
3. 徐州医科大学第二临床医学院急诊医学实验室,徐州 221006;
4. 丰县人民医院,徐州 221700
2. Affiliated Hospital of Xuzhou Medical University, Xuzhou 221006, China;
3. Laboratory of Emergency Medicine, The Second Clinical College of Xuzhou Medical University, Xuzhou 221006, China;
4. Fengxian People' s Hospital, Xuzhou 221700, China
蛋白质乳酸化修饰是近年来新发现的翻译后修饰[1-2]。研究显示,脑卒中、脓毒症等急危重症模型中,神经元蛋白乳酸化显著,且与神经损伤及血脑屏障破坏密切相关[3-4]。心脏骤停(cardiac arrest, CA)是常见急危重症,复苏后神经功能障碍是预后不良的主要原因[5]。CA时全身缺氧增强糖酵解,乳酸生成增加,血液及组织乳酸迅速升高[6]。然而,CA后蛋白乳酸化变化及其神经功能影响尚未报道。因此,本研究拟通过动物实验探讨CA后海马组织蛋白乳酸化及其对神经功能的作用,并评估潜在干预效果,为CA后神经保护提供理论依据。
1 材料与方法 1.1 主要实验试剂与仪器异氟烷、R407小动物呼吸机及麻醉机购自瑞沃德(中国)。生物信号采集与分析系统BL-420N购自泰盟(中国)。动物行为学分析软件ANYmaze购自Stoelting(美国)。2-DG购自MCE(美国)。连续性血液净化治疗机、空心纤维血液透析滤过器购自费森尤斯(德国)。
1.2 动物准备本实验获得徐州医科大学实验动物伦理道德委员会批准(202506T003、202511T022)。选用健康成年雄性Sprague Dawley大鼠(350~450 g),雄性巴马猪(35~40 kg)均由徐州医科大学实验动物中心提供。
1.3 CA模型制备建立大鼠CA模型[7-10]:3% 异氟烷麻醉后经口气管插管接呼吸机。关闭导管致窒息,MAP<25 mmHg为CA。窒息8 min行CPR:胸外按压200次/min,恢复机械通气(FiO2: 1.0),每2 min静注肾上腺素0.01 mg/kg。恢复自主循环(return of spontaneous circulation, ROSC)标准:MAP≥50 mmHg且持续≥5 min的室上性心律;CPR 10 min未获ROSC为失败。建立猪CA模型[11-12]: 3% 异氟烷麻醉后经口气管插管接呼吸机。颈静脉导丝致右心室电刺激诱颤。8 min后行CPR:胸外按压110次/min、深度5 cm,机械通气(FiO2: 1.0),每2 min评估心律,室颤行双向波电除颤150 J,同时每2 min注肾上腺素0.01 mg/kg。ROSC标准:MAP≥50 mmHg且持续≥20 min的室上性心律;CPR 30 min未获ROSC为失败。
建立猪CA模型[11-12]: 3%异氟烷麻醉后经口气管插管接呼吸机。颈静脉导丝致右心室电刺激诱颤。8min后行CPR:胸外按压110次/min、深度5 cm,机械通气(FiO2:1.0),每2 min评估心律,室颤行双向波电除颤150J,同时每2min注肾上腺素0.01 mg/kg。ROSC标准:MAP ≥ 50mmHg且持续≥20min的室上性心律;CPR 30 min未获ROSC为失败。
1.4 实验动物分组 1.4.1 大鼠实验 1.4.1.1 第一部分实验将大鼠随机(随机数字法)分为7组(n=5),包括Sham组及ROSC后0 h、1 h、2 h、3 h、6 h、12 h组。于相应时间点安乐死大鼠,收集海马CA1区组织及血液样本。
1.4.1.2 第二部分实验将大鼠随机(随机数字法)分为3组(n=5), 包括Sham组、Control组和2-DG组(在CA前1 h腹腔注射1 g/kg 2-DG)。ROSC后1 h安乐死大鼠,留取海马CA1区组织及血液样本。
1.4.1.3 第三部分实验将大鼠随机(随机数字法)分为3组(n=10), 包括Sham组、Control组和2-DG组。于ROSC后第1~11天序贯进行神经功能评估,评估完成后安乐死。
1.4.2 猪实验将猪随机(随机数字法)分为3组(n=3):包括Sham组、CA组、Blood purification组。所有实验猪于ROSC后2 h安乐死,收集海马CA1区组织及血液样本。
1.5 NDS评分于CA后24 h、48 h及72 h对大鼠进行神经功能缺损评分(NDS)[13]。
1.6 Morris水迷宫实验于CA后第7~11天进行水迷宫实验[14]。
1.7 血浆及脑组织乳酸水平检测依照乳酸检测试剂盒(KTB1100,Abbkine)说明书进行操作。
1.8 免疫印迹法检测大鼠海马CA1区蛋白乳酸化水平相关抗体如下:Pan-Kla抗体(PTM-1401RM,景杰生物,中国)、Ndufv1抗体(11238-1-AP,Proteintech,美国)以及β-actin抗体(66009-1-Ig, Proteintech,美国)。全自动化学发光图像分析系统采集图像,ImageJ分析图像。
1.9 质谱分析采用美国Thermo Scientific公司Easy-nLC 1200超高效液相色谱联用Q Exactive Plus高分辨质谱分析。样品经Trap柱(100 μm×20 mm, C18)富集后转入分析柱(75 μm×250 mm, C18)分离,流速300 nL/min,以0.1%甲酸-乙腈溶液梯度洗脱;质谱采用数据依赖模式采集,全扫描范围300~1500 m/z,选取强度前20的母离子进行高能碰撞解离[15]。
1.10 免疫荧光染色制备脑组织石蜡切片。分别滴加对应抗体:Neun抗体,Mbp抗体,iba-1抗体,GFAP抗体(GB11096,Servicebio,中国),Pan-Kla抗体(PTM-1401RM,景杰生物,中国)。于荧光显微镜下采集图像[16]。
1.11 线粒体复合物Ⅰ活性以及ATP水平检测新鲜海马组织按照线粒体复合物Ⅰ活性检测试剂盒(KTB1850,Abbkine,中国)说明书以及ATP检测试剂盒(A095-1-1,南京建成,中国)进行检测。
1.12 血液净化猪ROSC后即刻启动血液净化治疗,采用连续性血液透析滤过模式。治疗参数设置:后稀释方式,透析液流量2 000 mL/h,置换液流量1 000 mL/h;血流速维持150~180 mL/min,根据血压调整(目标平均动脉压≥65 mmHg);抗凝采用普通肝素。持续治疗2 h。
1.13 统计学方法计量资料以均数±标准差(x ± s)表示,两组比较用成组t检验,多组比较用单因素方差分析,重复测量数据用重复测量方差分析,组间两两比较用Tukey检验。统计分析用GraphPad Prism 9.0,以P < 0.05为差异有统计学意义;每组动物数为完成实验的存活数。
2 结果 2.1 动物基线和复苏特征本实验共使用大鼠146只,其中Sham组20只,Control组87只,2-DG组39只。实验共使用猪13只,sham组3只,CA组5只,血液净化组5只。基线和复苏特征见表 1和2。
| 指标 | Sham (n=20) | Control (n=87) | 2-DG (n=39) |
| 体重(g) | 420.30±17.90 | 421.80±20.80 | 419.50±19.60 |
| 基线血流动力学指标 | |||
| 心率(次/min) | 341.80±35.20 | 342.60±31.60 | 339.30±28.30 |
| 平均动脉压(mmHg) | 123.30±10.60 | 125.40±8.70 | 126.70±16.50 |
| 心脏骤停相关指标 | |||
| 心脏骤停时间(s) | - | 138.80±51.50 | 140.00±42.50 |
| 心肺复苏时间(s) | - | 104.70±40.40 | 116.30±29.20 |
| 肾上腺素剂量(μg) | - | 4.19±1.08 | 4.15±1.06 |
| ROSC后1 h血流动力学指标 | |||
| 心率(次/min) | 342.30±32.50 | 298.30±55.60a | 304.50±22.50a |
| 平均动脉压(mmHg) | 125.90±11.30 | 93.20±12.80a | 92.90±16.10a |
| 注:与sham组比较,aP < 0.05 | |||
| 指标 | Sham (n=3) | CA(n=5) | 血液净化 (n=5) |
| 体重(kg) | 36.67±1.25 | 35.58±0.58 | 35.94±0.48 |
| 基线血流动力学指标以及脉氧饱和度 | |||
| 心率(次/min) | 123.00±6.16 | 118.00±19.29 | 117.67±26.34 |
| 平均动脉压(mmHg) | 90.32±5.73 | 92.33±10.21 | 91.34±10.53 |
| 脉氧饱和度(%) | 97.67±0.58 | 98.00±1.00 | 97.33±1.16 |
| 心脏骤停相关指标 | |||
| 心肺复苏时间(s) | - | 115.67±8.74 | 117.33±12.50 |
| 肾上腺素剂量(mg) | - | 1.093±0.032 | 1.110±0.070 |
| 电除颤次数 | - | 1.00±0.00 | 1.00±0.00 |
| ROSC后1 h血流动力学指标以及脉氧饱和度 | |||
| 心率 (次/min) | 125.67±6.34 | 03.33±10.02a | 100.67±10.27a |
| 平均动脉压(mmHg) | 90.28±2.94 | 68.33±8.19a | 69.67±6.02a |
| 脉氧饱和度(%) | 96.67±0.58 | 95.67±0.58 | 95±1 |
| 注:与sham组,a P<0.05 | |||
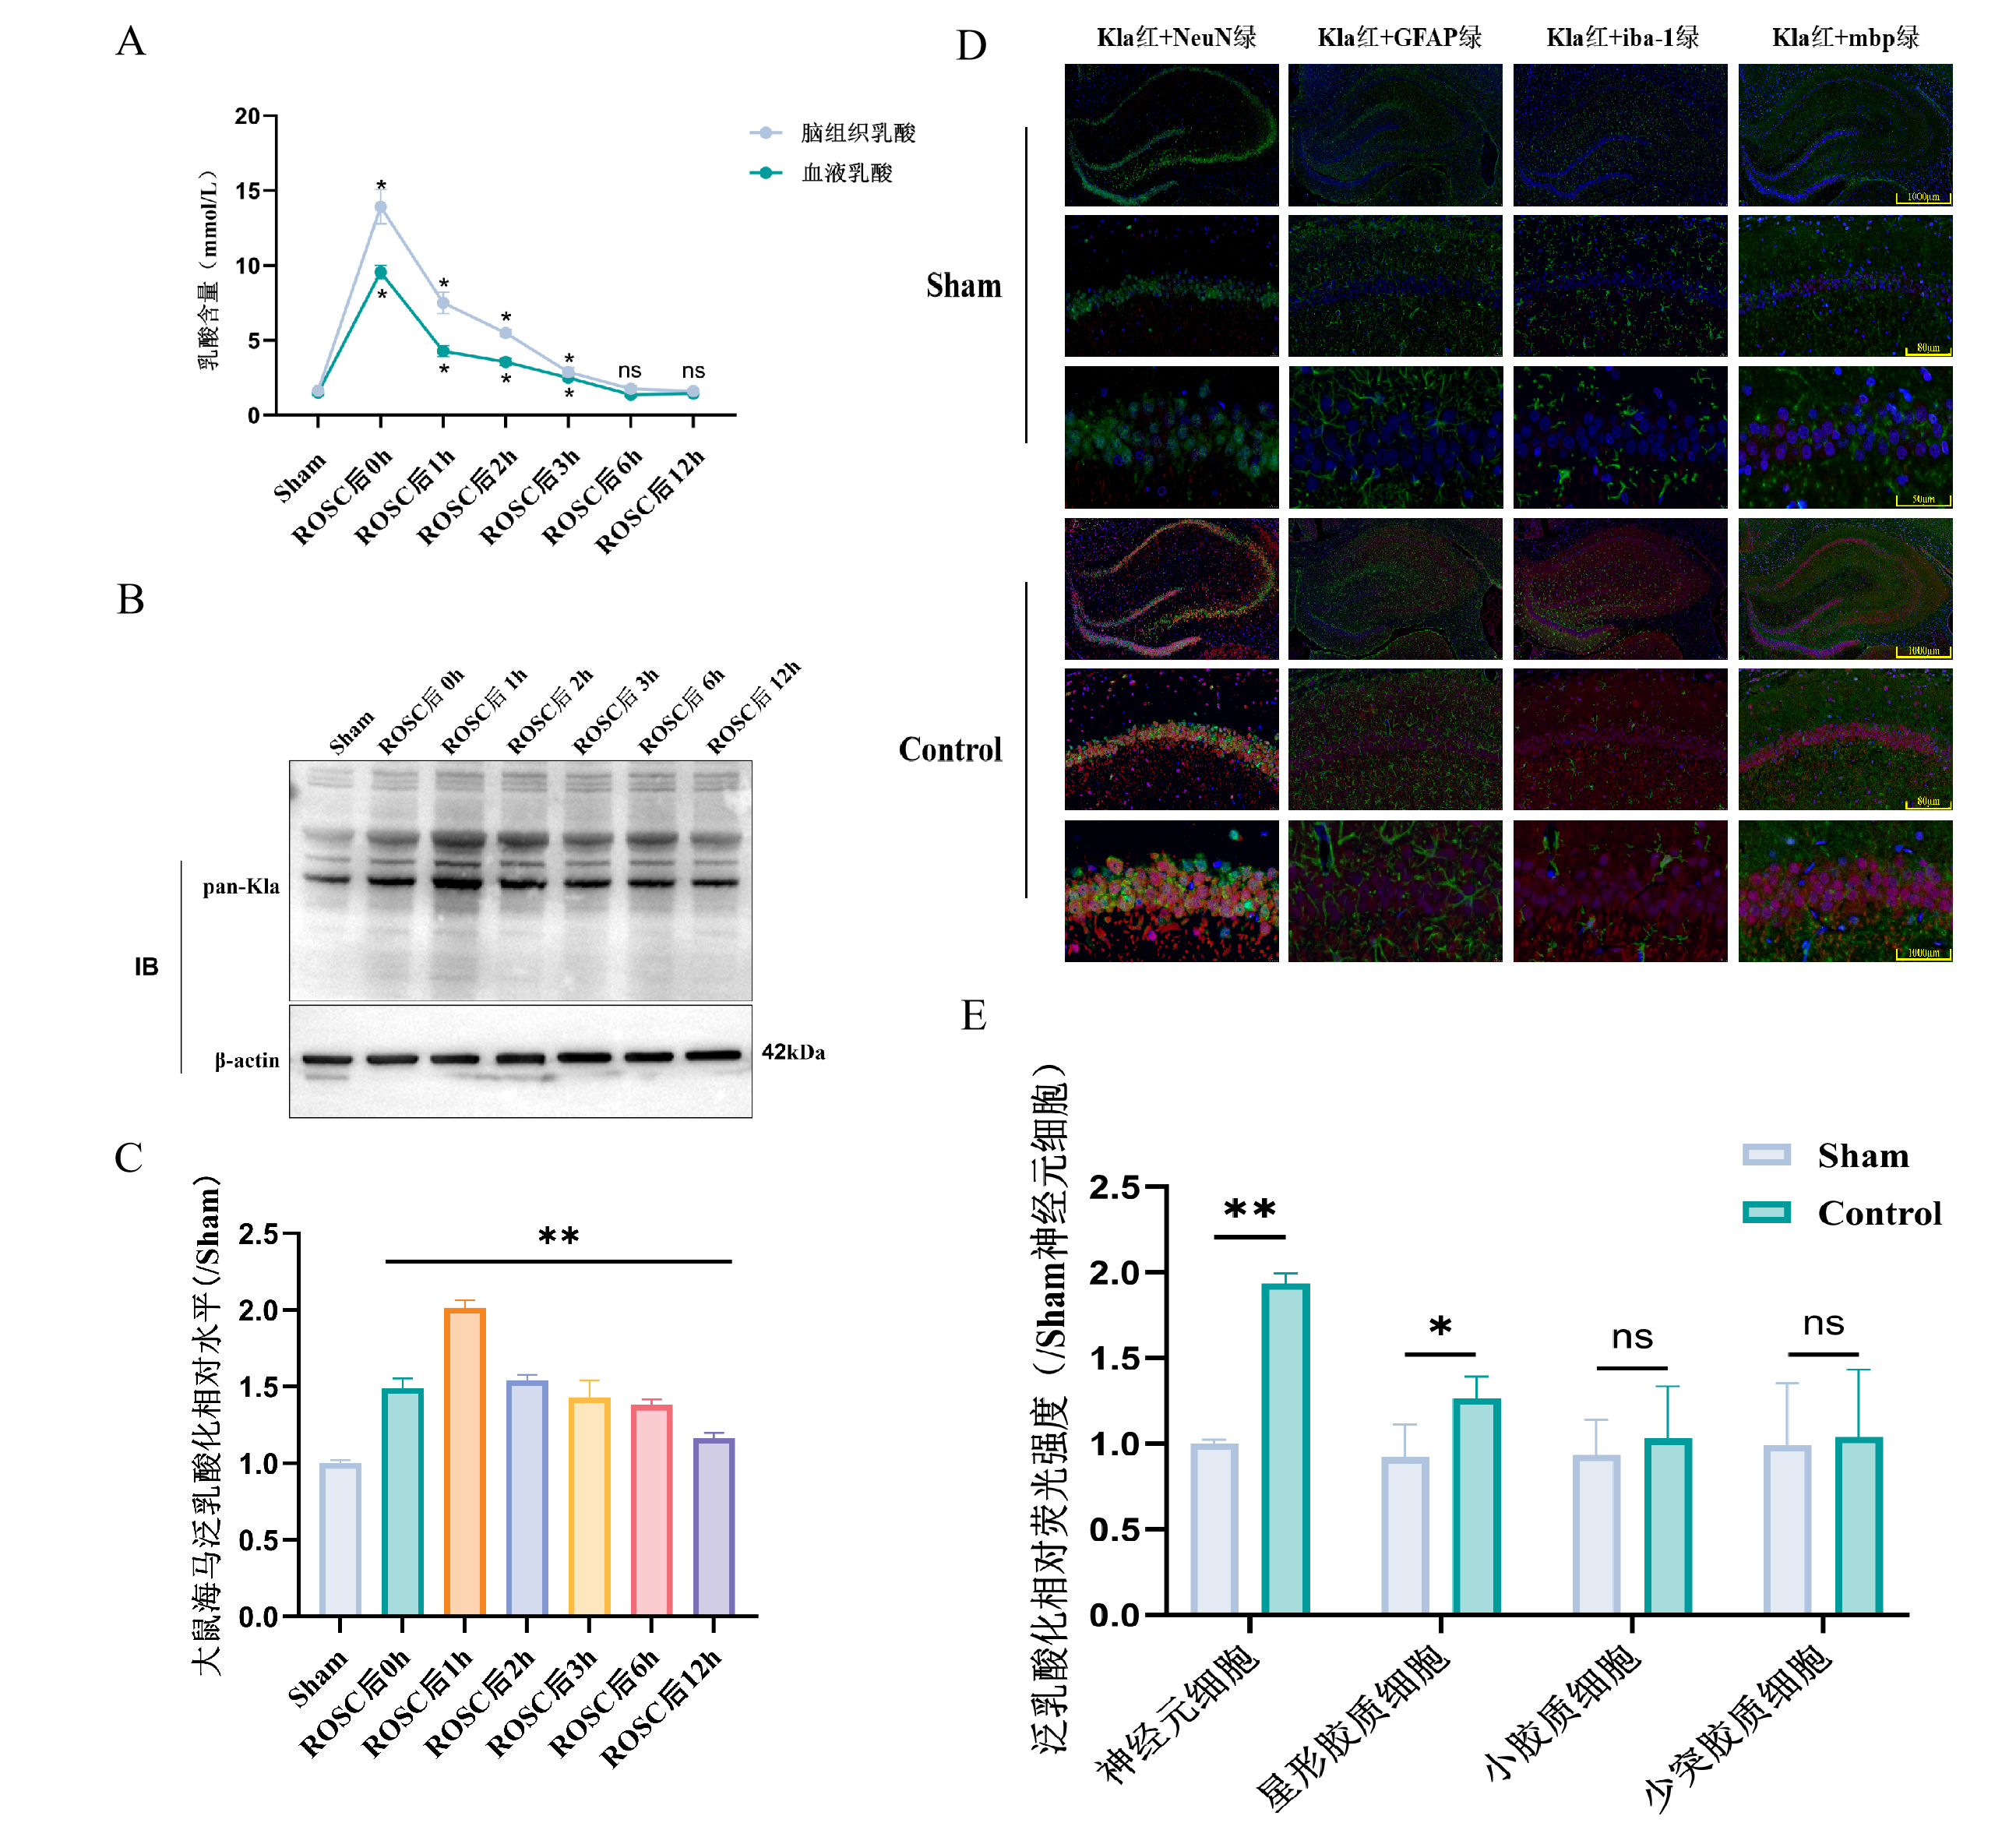
如图 1A所示,大鼠ROSC后0 h动脉血乳酸显著升高[(9.56±0.46) vs. (1.50±0.16),P < 0.05],1 h内快速下降,6 h基本恢复正常。海马CA1区乳酸在ROSC后0 h显著升高[(13.92±1.02) vs. (1.65±0.15),P < 0.05],随后缓慢降低。
|
| 注:A为大鼠CA后脑组织和血液中乳酸水平的变化趋势;B为大鼠CA后海马CA1区蛋白质泛乳酸化修饰的免疫印记检测结果;C为大鼠CA后海马CA1区蛋白泛乳酸化水平的统计分析;D为大鼠CA后海马CA1区蛋白质乳酸化修饰和细胞标志物免疫荧光共定位染色;E:大鼠CA后海马CA1区蛋白质乳酸化修饰与细胞标志物免疫荧光共定位染色的荧光强度分析。与sham组比较,aP < 0.05,bP < 0.01。 图 1 大鼠心脏骤停后海马CA1区蛋白质乳酸化修饰的动态变化 Fig 1 Dynamic changes of protein lactylation in hippocampal CA1 region after cardiac arrest in rats |
|
|
图 1B、C示,ROSC后海马CA1区0 h蛋白乳酸化水平明显增加[(1.46±0.23) vs. (1.00±0.01),P < 0.01],1 h达峰值[(1.98±0.26) vs. (1.00±0.01),P < 0.01],12 h仍高于Sham组[(1.17±0.03) vs. (1.00±0.01),P < 0.01]。
图 1D、E示,ROSC后1 h蛋白乳酸化广泛存在于神经元、小胶质细胞、星形胶质细胞及少突胶质细胞。定量分析表明神经元与星形胶质细胞乳酸化水平较高,其中神经元最为显著[(1.32±0.15) vs. (1.00±0.02),P < 0.01]。
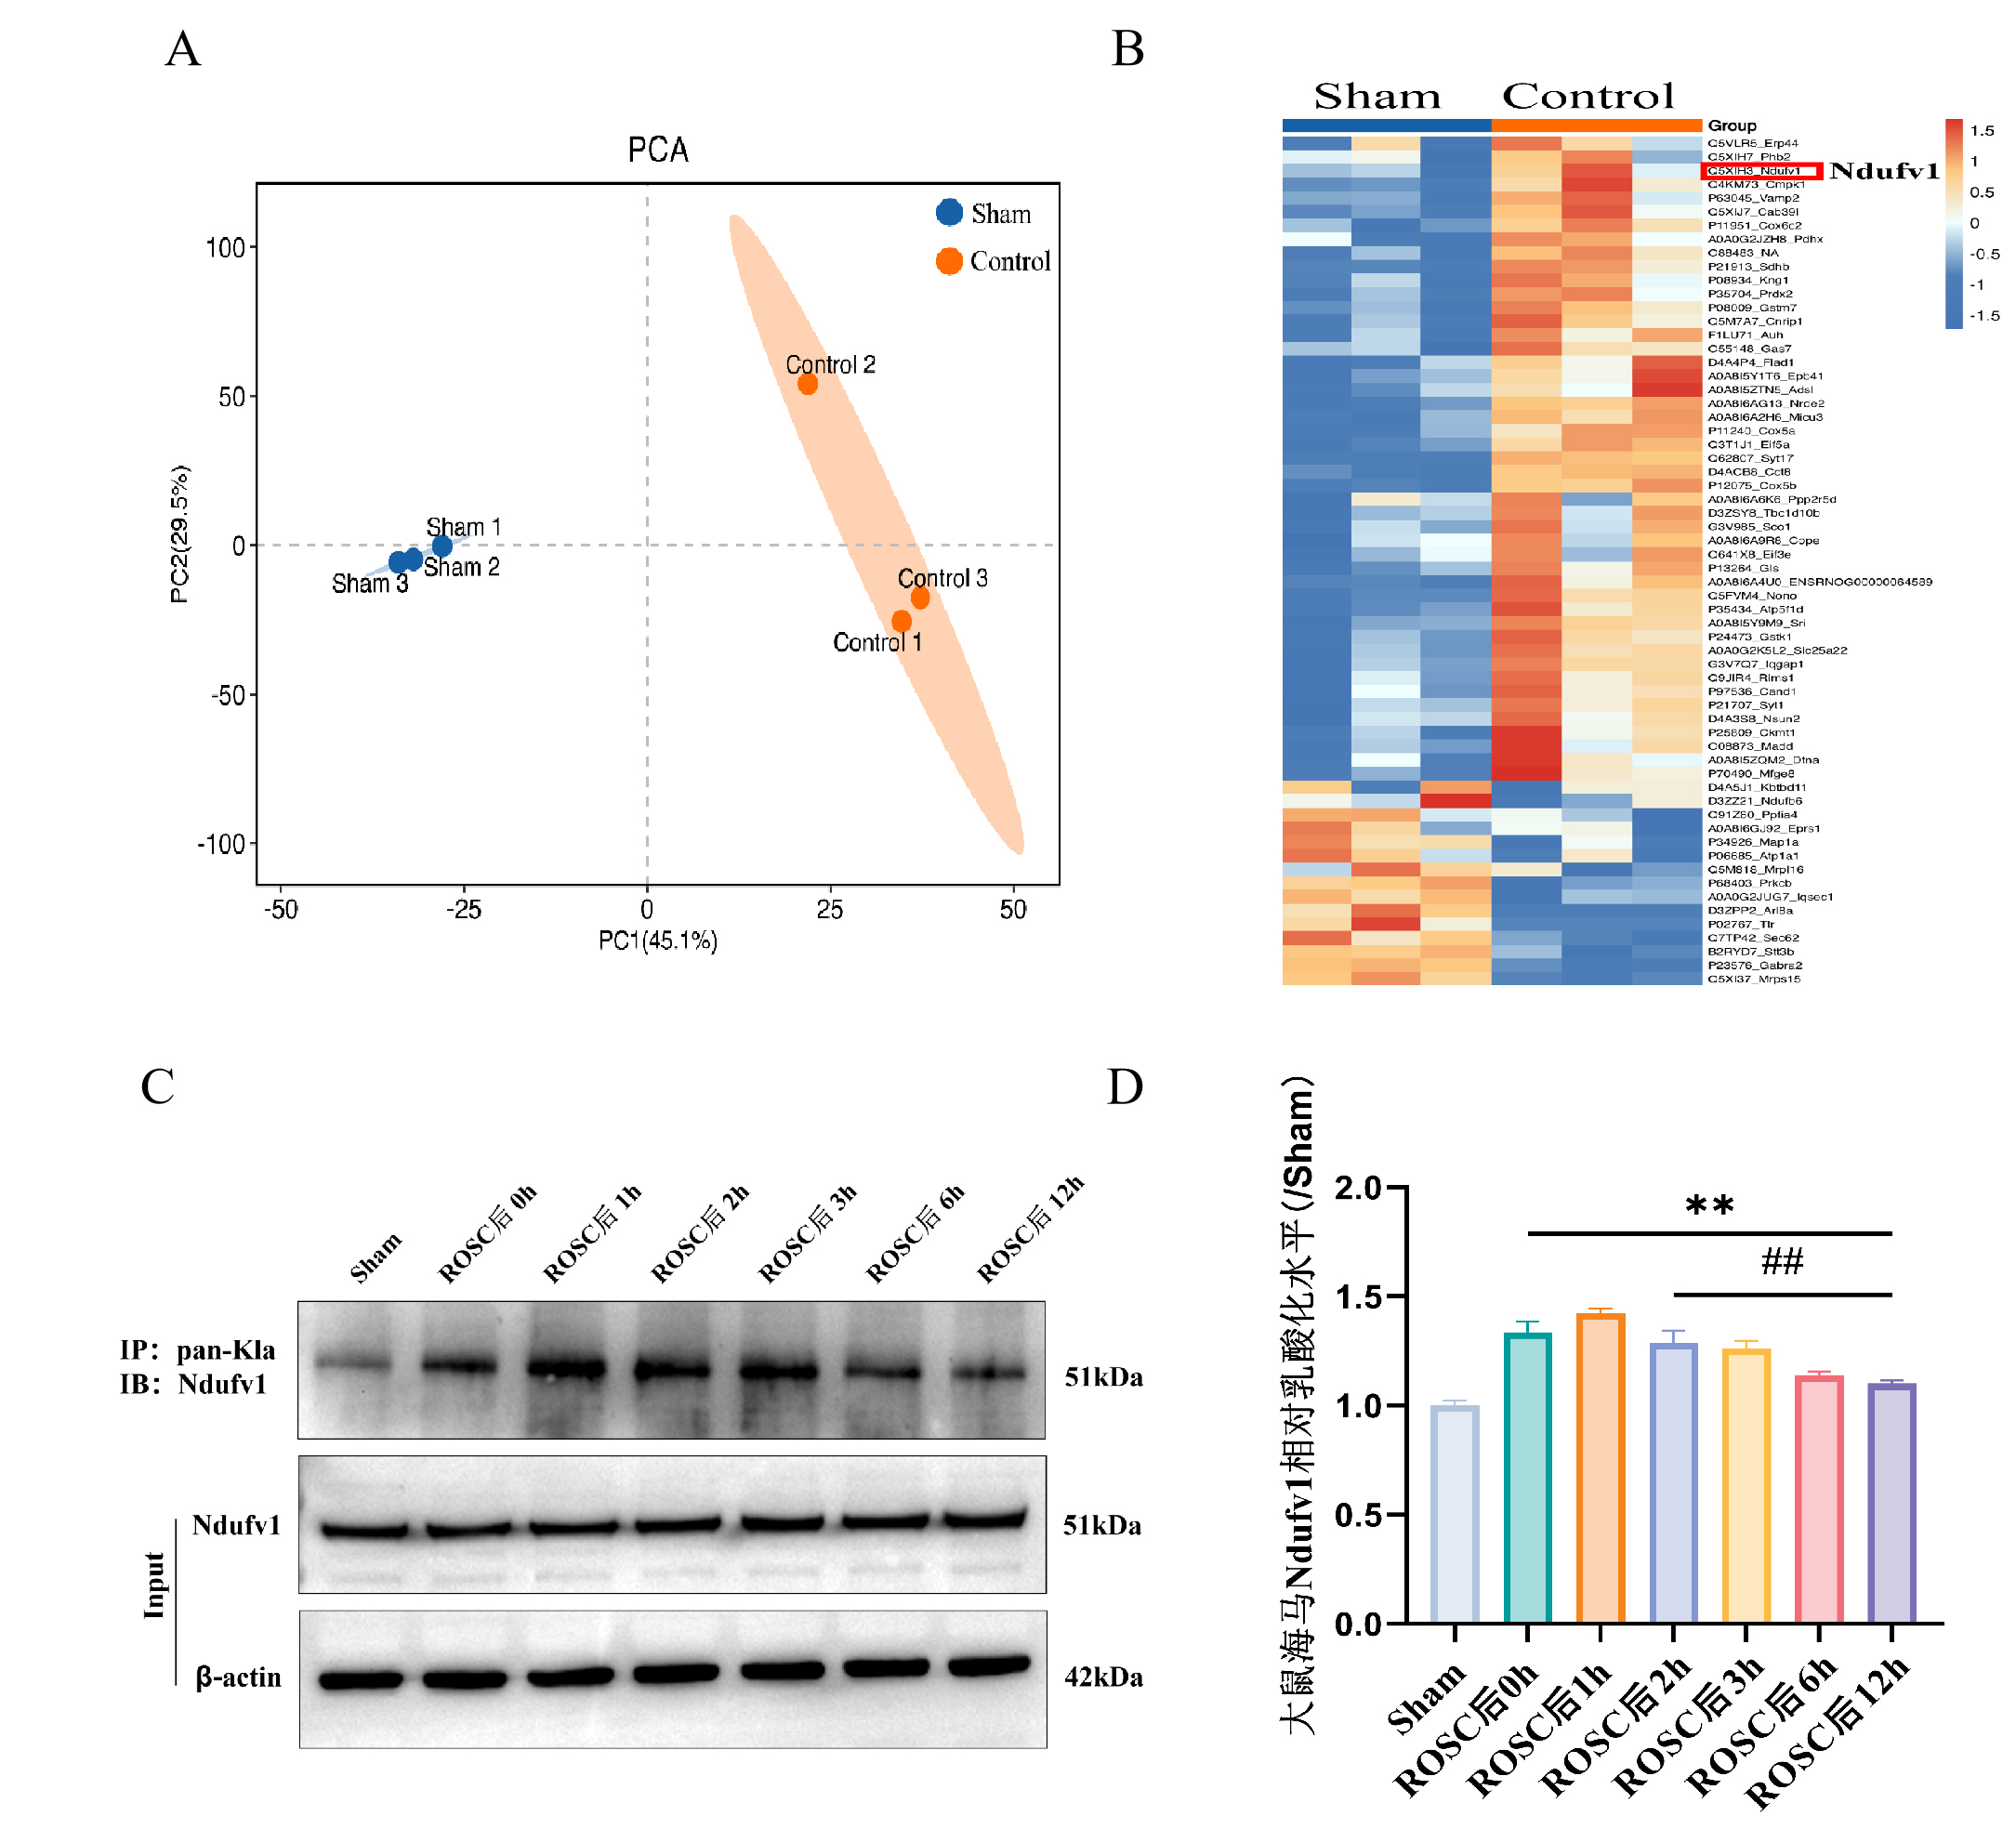
2.3 CA后大鼠海马CA1区Ndufv1乳酸化水平增多为明确乳酸化蛋白,对大鼠海马CA1区组织进行了质谱分析(图 2A~B)。ROSC后1 h与Sham组相比,共检测到47种蛋白乳酸化显著增加。进一步验证Ndufv1蛋白乳酸化(图 2C~D)显示,Control组ROSC后1 h Ndufv1乳酸化达到峰值[(1.42±0.12) vs. (1.00±0.01),P < 0.01],随后逐渐下降,但至12 h仍高于Sham组[(1.10±0.11) vs. (1.00±0.01),P < 0.01]。
|
| 注:A为Sham组与Control组海马乳酸化蛋白质组的主成分分析(PCA)图;B为Sham组与Control组海马组织差异有统计学意义的乳酸化蛋白层次聚类热图;C为大鼠CA后海马CA1区Ndufv1蛋白乳酸化水平;D为大鼠CA后海马CA1区Ndufv1蛋白乳酸化水平平统计分析。与sham组比较, a P < 0.01,与ROSC后1 h比较,b P < 0.01 图 2 大鼠心脏骤停后海马CA1区蛋白质乳酸化修饰谱及差异蛋白Ndufv1的验证 Fig 2 Analysis of protein lactylation profile in hippocampal CA1 region and validation of differential protein Ndufv1 after cardiac arrest in rats |
|
|
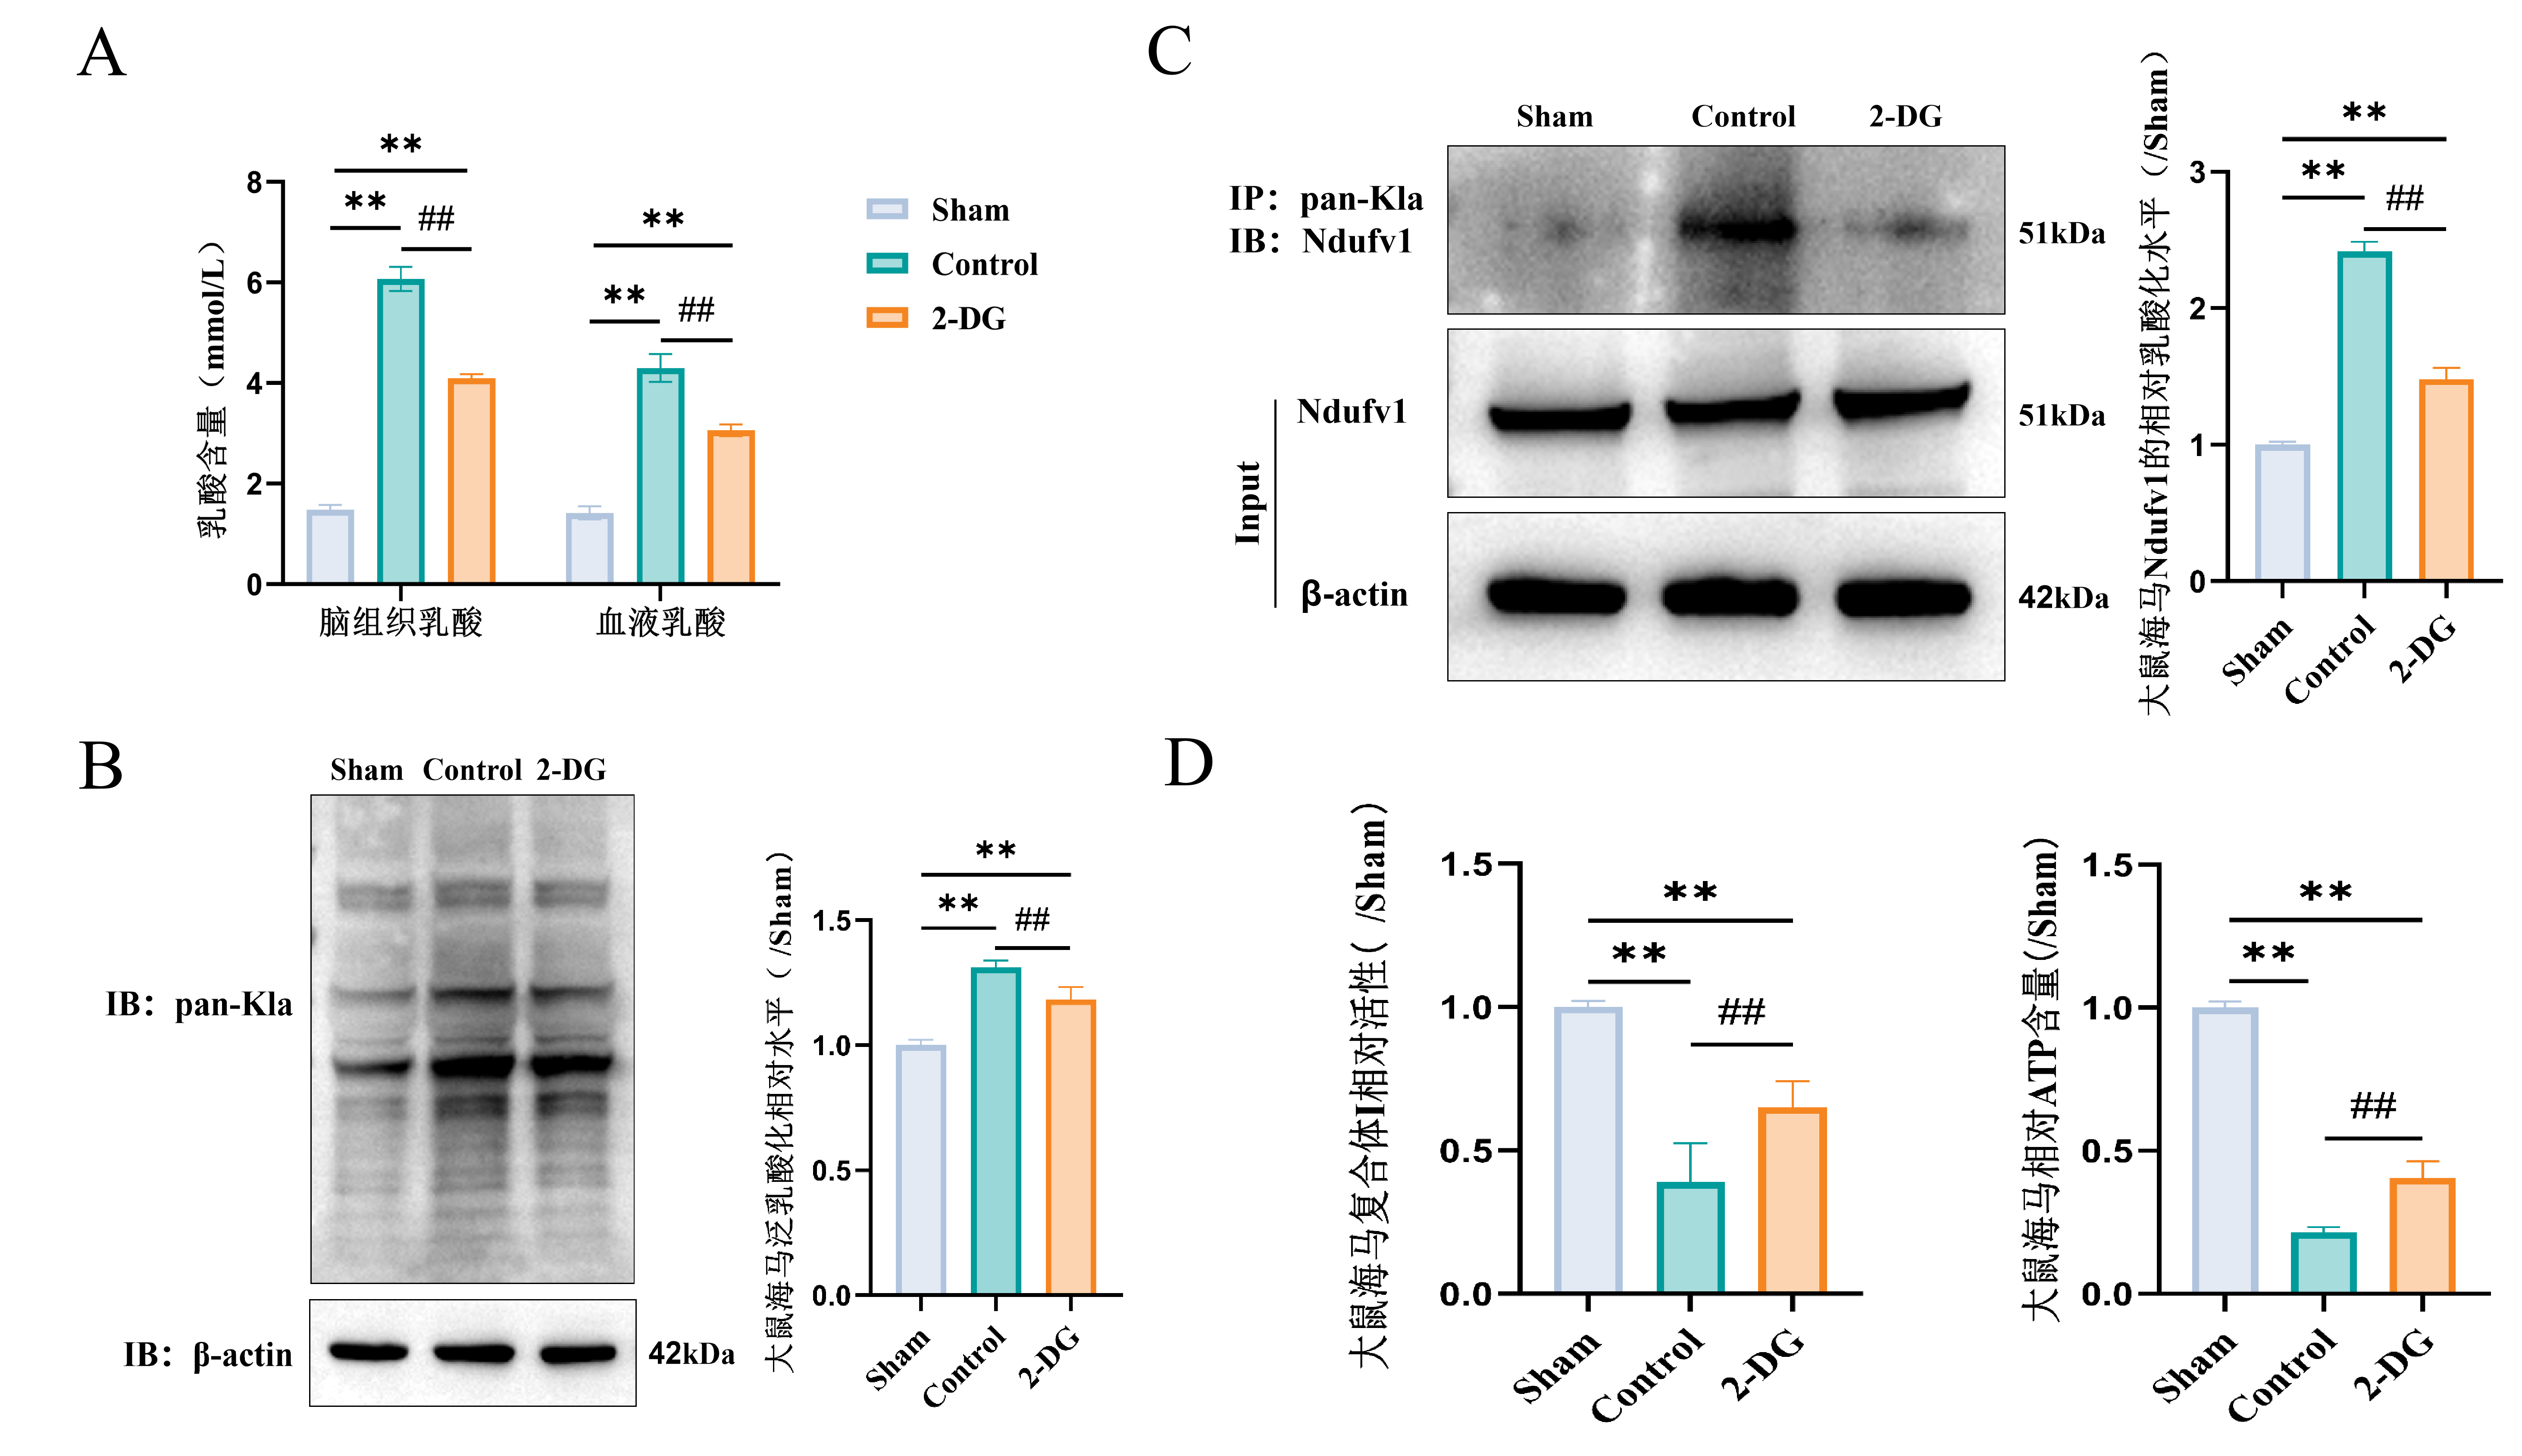
为进一步明确Ndufv1乳酸化作用,应用了糖酵解抑制剂2-DG。与Control组相比,2-DG组ROSC后1 h血液乳酸[(3.06±0.11) vs. (4.30±0.27),P < 0.01]、脑组织乳酸[(4.09±0.08) vs. (6.07±0.23),P < 0.01]、蛋白泛乳酸化水平[(1.18±0.05) vs. (1.31±0.03),P < 0.01]及Ndufv1乳酸化水平[(1.53±0.14) vs. (2.31±0.22),P < 0.01]均显著下降(图 3A-C)。同时,ROSC后1 h,Control组线粒体复合物Ⅰ活性[(0.39±0.14) vs. (1.00±0.02),P < 0.01]及ATP水平[(0.21±0.02)vs. (1.00±0.02),P < 0.01]明显降低。2-DG干预后,线粒体复合物Ⅰ活性下降减轻[(0.65±0.09) vs. (0.39±0.14),P < 0.01],ATP水平下降亦明显改善(0.40±0.06 vs. 0.21±0.02,P < 0.01)(图 3D)。
|
| 注:A为三组大鼠海马CA1区及血液乳酸含量;B为三组大鼠海马CA1区泛乳酸化水平及统计分析;C为三组大鼠海马CA1区Ndufv1乳酸化水平及统计分析;D为三组大鼠海马CA1区线粒体复合体Ⅰ活性以及ATP水平。与sham组比较, aP < 0.01,与Control组比较,bP < 0.01 图 3 2-脱氧-D-葡萄糖干预对大鼠心脏骤停后海马CA1区蛋白质乳酸化水平及线粒体功能的影响 Fig 3 Effects of 2-Deoxy-D-Glucose Intervention on Protein Lactylation and Mitochondrial Function in the Hippocampal CA1 Region After Cardiac Arrest in Rats |
|
|
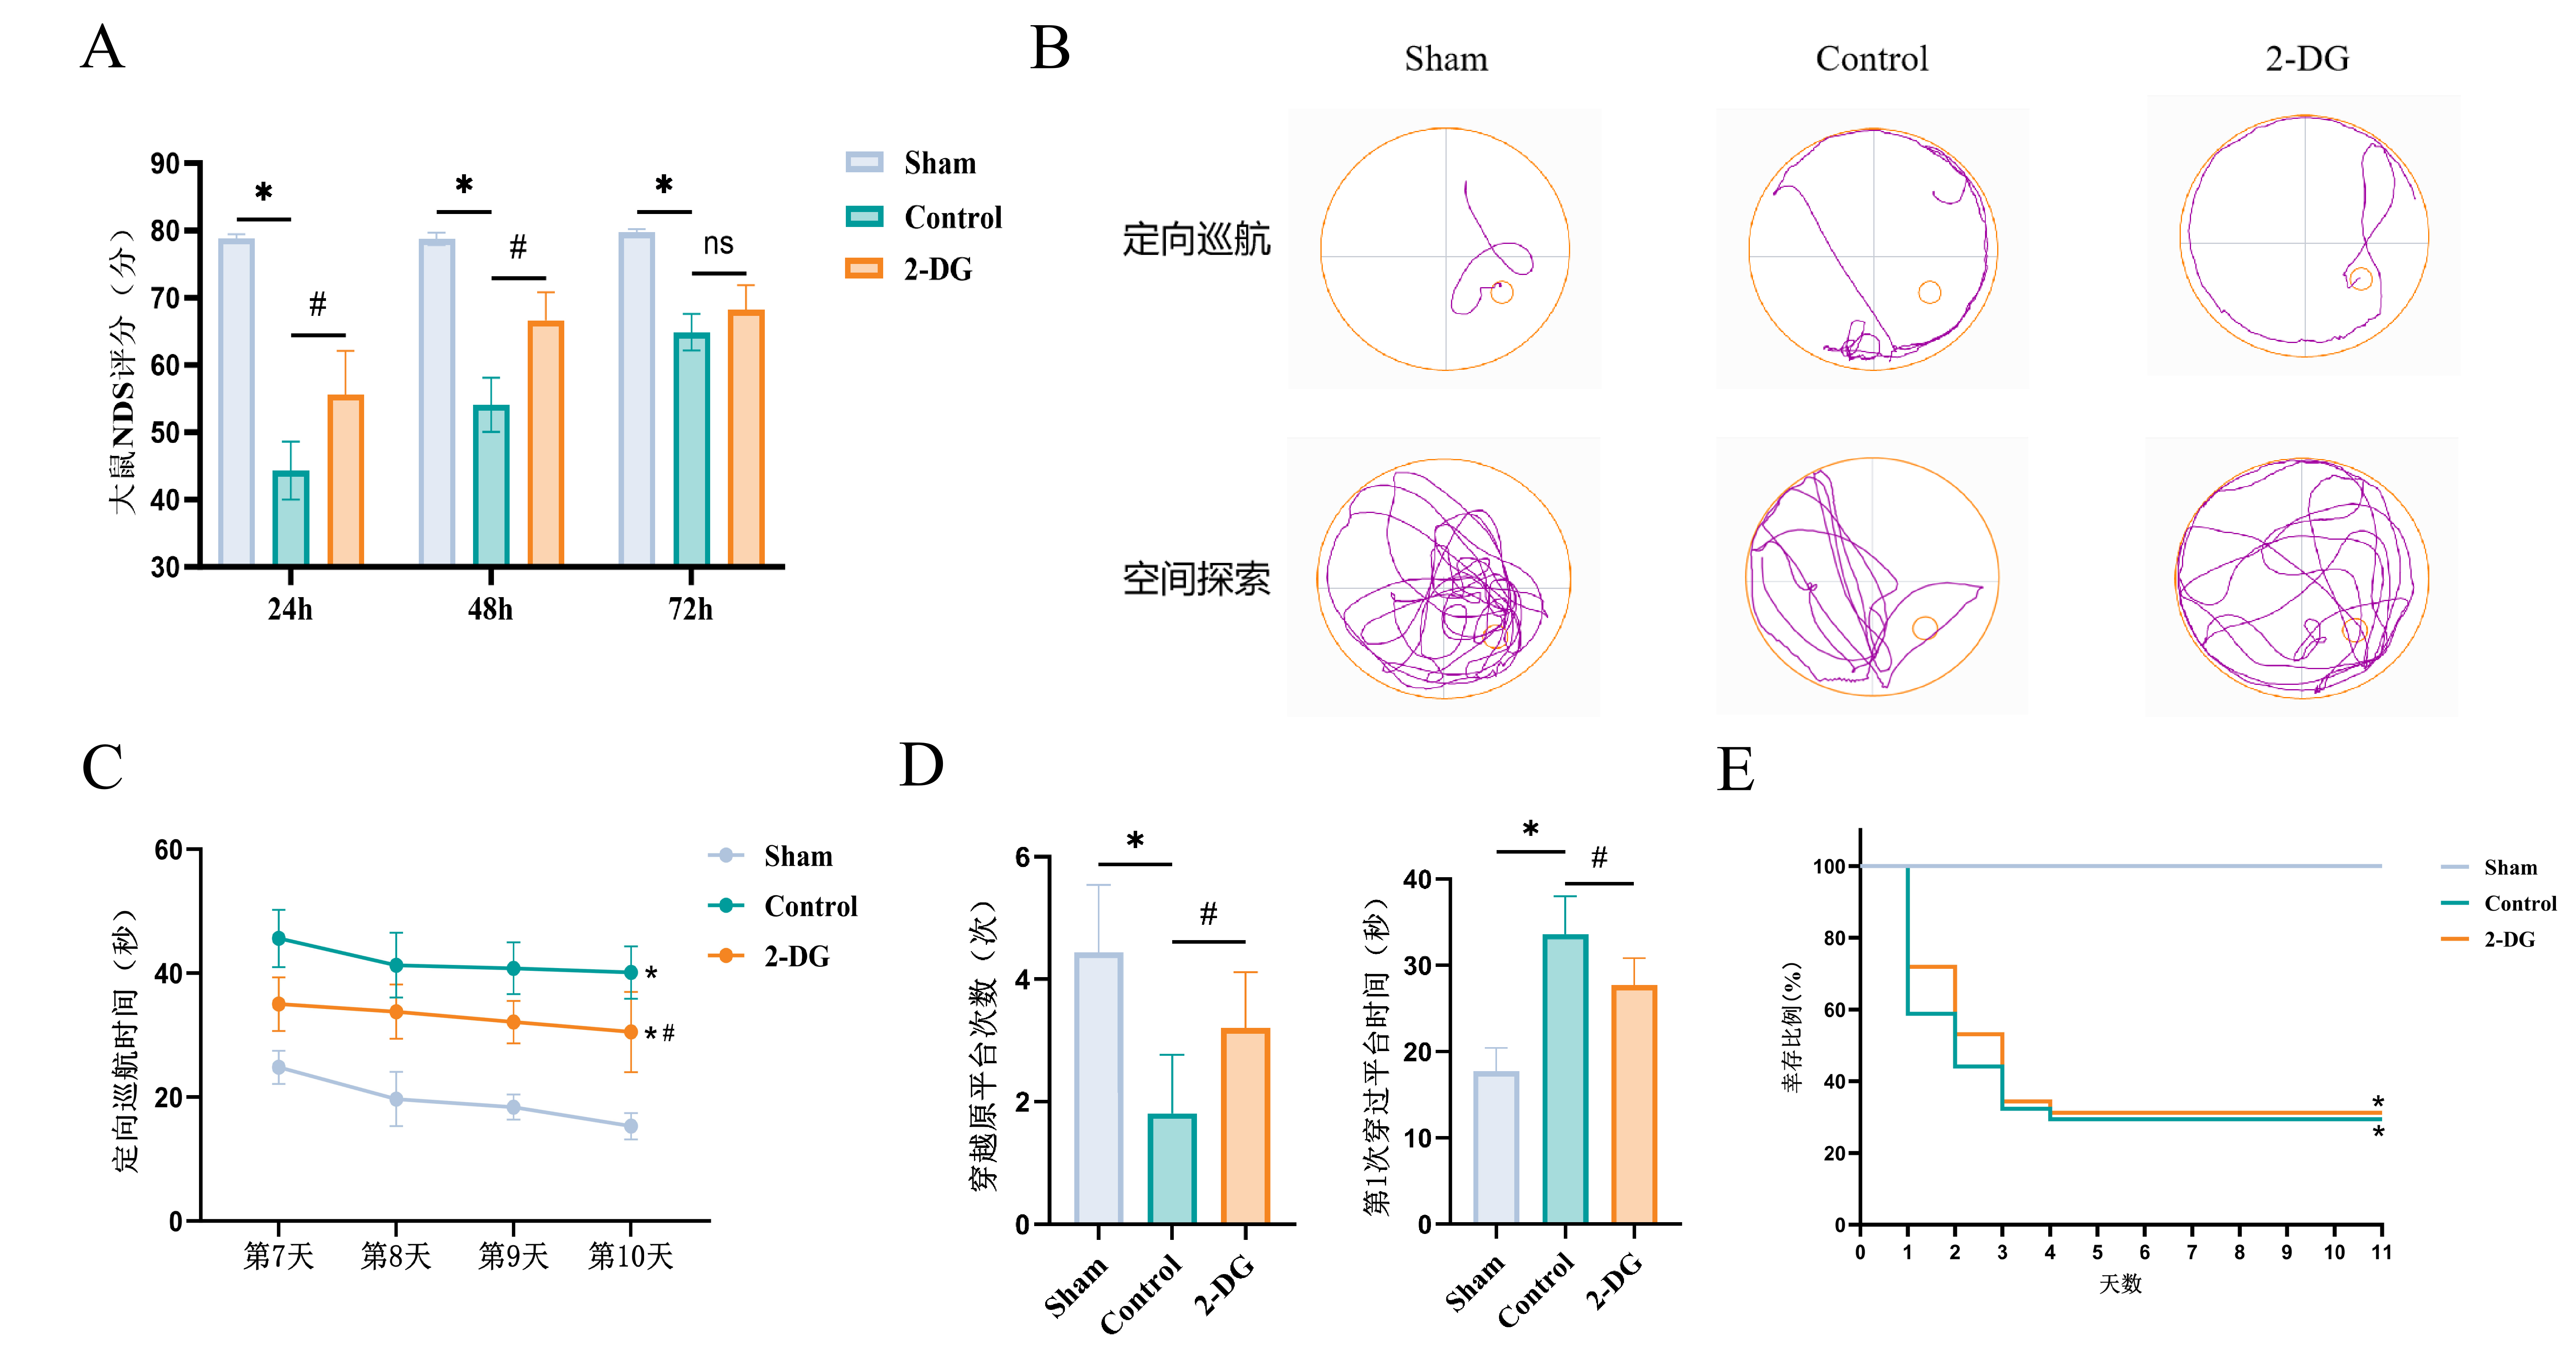
进一步评估抑制蛋白乳酸化对CA后大鼠神经功能的影响。与Control组相比,2-DG组ROSC后24 h [(55.56±6.24) vs. (40.56±5.68),P < 0.05]及48 h [(66.67±4.24) vs. (54.11±3.82),P < 0.05]NDS评分明显升高(图 4A)。Morris水迷宫测试显示,ROSC后第7–11天,2-DG组逃避潜伏期缩短[(30.50±6.42) vs. (40.10±4.25),P < 0.05]、穿越原平台位置次数增加[(3.20±0.92) vs. (1.81±0.94),P < 0.05]、首次穿过平台时间提前[(27.70±3.40) vs. (33.60±4.50),P < 0.05](图 4B-D)。但2-DG并未改善11 d生存率(32.26% vs. 31.25%,P> 0.05)(图 4E)。
|
| 注:A为大鼠ROSC后24 h、48 h、72 h的NDS评分;B为大鼠水迷宫轨迹图;C为大鼠水迷宫定向巡航时间统计分析;D为大鼠水迷宫穿越平台次数以及首次穿越平台的时间统计分析。E为Sham组、Control组、2-DG组大鼠的生存曲线。与sham组比较, aP < 0.05,与Control组比较,bP < 0.05 图 4 2-脱氧-D-葡萄糖干预对大鼠心脏骤停后神经功能恢复及生存率的影响 Fig 4 Effects of 2-Deoxy-D-Glucose Intervention on Neurological Recovery and Survival Rate After Cardiac Arrest in Rats |
|
|
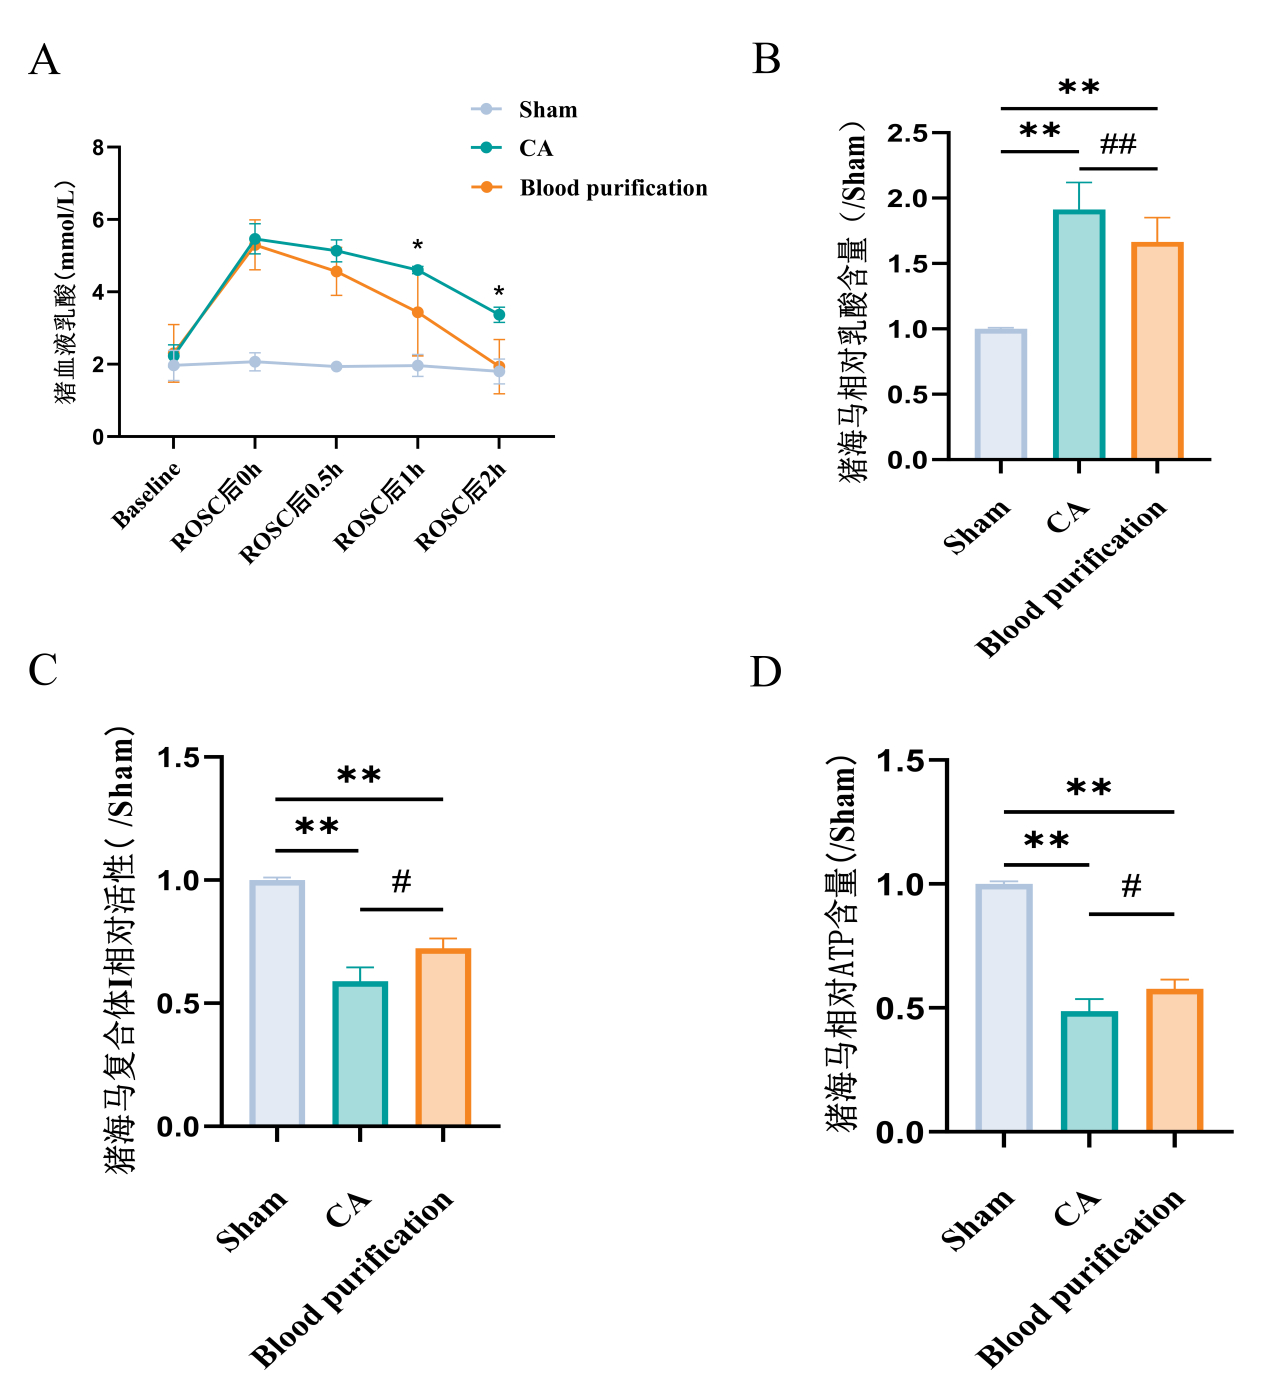
为探索临床潜在干预策略,利用猪CA模型评估ROSC后早期血液净化对蛋白乳酸化的影响。结果显示,血液净化可显著降低血乳酸[(1.93±0.75) vs. (3.37±0.21),P < 0.01]、促进海马CA1区组织乳酸清除[(1.54±0.08) vs. (1.95±0.18),P < 0.01],并改善线粒体复合物Ⅰ活性[(0.72±0.04)vs. (0.59±0.06),P < 0.05]及ATP水平[(0.58±0.04) vs. (0.49±0.05),P < 0.05]。见图 5。
|
| 注:A为猪心脏骤停复苏后的血乳酸水平;B为猪的海马CA1区脑组织相对乳酸水平;C为猪的海马CA1区线粒体复合体Ⅰ相对活性;D为猪的海马CA1区脑组织相对ATP含量。与sham组比较, aP < 0.05,与sham组比较, bP < 0.01,与CA组比较, cP < 0.05,dP < 0.01 图 5 血液净化对心脏骤停复苏后猪的血液及海马CA1区乳酸含量及线粒体功能的影响 Fig 5 Effects of Blood Purification on Lactate Levels and Mitochondrial Function in Blood and Hippocampal CA1 Region After Cardiac Arrest and Resuscitation in Swine |
|
|
CA后神经功能障碍严重影响长期预后,机制涉及缺血-再灌注损伤、能量代谢紊乱及神经炎症 [5, 18]。本研究聚焦蛋白质乳酸化,首次揭示大鼠CA后海马CA1区蛋白乳酸化谱,证实线粒体复合物Ⅰ亚基Ndufv1乳酸化在神经功能障碍中的关键作用及干预潜力。研究发现,CA后海马蛋白乳酸化于ROSC 1 h达峰,且特异度富集于CA1区神经元,这与CA期糖酵解增强、乳酸大量生成及脑内乳酸清除延迟密切相关 [19],表明脑内乳酸“蓄积效应”是蛋白乳酸化持续升高的物质基础。线粒体呼吸链功能障碍是CA后能量代谢衰竭的核心,复合物Ⅰ作为电子传递链起始复合体,其活性直接决定ATP生成效率 [20]。本研究通过质谱与免疫共沉淀证实,CA后复合物Ⅰ亚基Ndufv1乳酸化显著升高,与复合物Ⅰ活性下降及ATP减少呈时空一致性。该发现与室颤法CA后海马区复合物Ⅰ活性及ATP含量降低的既往报道 [21]高度吻合,提示乳酸不仅是无氧代谢的“终产物”[22],更可通过翻译后修饰直接调控线粒体功能。
研究[23-24]表明翻译后修饰可调控复合体Ⅰ功能,但该功能改变是否源于其亚基构象变化,目前尚无直接实验证据证实。笔者推测,Ndufv1赖氨酸残基乳酸化修饰可能通过改变局部电荷环境或产生空间位阻,干扰其关键构象、削弱与邻近亚基的相互作用,进而影响复合体Ⅰ整体功能,该机制仍需进一步验证。既往有研究证实,在缺血缺氧模型中,乳酸可作为一种替代能量物质[25]。因此,在本试验中考虑到利用2-DG抑制乳酸生成有可能会降低大鼠ROSC率及11 d的生存率。但本研究的结果表明,在CA模型中抑制糖酵解并未降低ROSC率及11 d的生存率。可能的解释是,在高质量CPR开始后,脑组织得到了重新供血供氧,不再需要乳酸作为替代能量。因此,在脑卒中模型中,乳酸可在缺血半暗带区域为神经元供能,发挥神经保护作用;而在心脏骤停模型中,ROSC后的高乳酸状态主要通过诱导蛋白质乳酸化而呈现有害效应。而2-DG干预未能显著改善11 d生存率的原因,可能与样本量不足以及CA后死亡涉及多因素共同作用有关(复苏后早期心功能障碍、炎症风暴等),未来需进一步扩大样本量以及探索在不同实验条件下其对生存率的影响。
考虑到2-DG可能会导致全身能量代谢失调,本研究在猪CA模型中进一步探索了血液净化这一临床可行的干预手段。结果显示,ROSC后早期血液净化可加速海马乳酸清除,伴随线粒体复合物Ⅰ活性及ATP水平恢复。本研究首次证实其可通过减少脑内乳酸蓄积减轻蛋白质乳酸化修饰,为优化CA后血液净化策略提供新的理论依据。本研究结果提示,对于ROSC后的患者,应在早期尽早启动血液净化治疗,并通过优化治疗参数强化溶质清除,以实现乳酸的快速下降。但ROSC后患者常伴随血流动力学不稳定,过早启动血液净化或采用过高血流量,可能存在进一步恶化血流动力学状态的风险。因此,ROSC后血液净化的最佳启动时机、具体参数设置及潜在风险,仍有待进一步深入研究予以明确。
本研究仍存在一定局限性:①CA模型虽能模拟缺血-再灌注过程,但无法完全复刻人类CA后的多器官功能障碍及基础疾病影响;②未明确Ndufv1乳酸化位点及修饰后的构象变化,需进一步探索乳酸化修饰后的Ndufv1与其他亚基的相互作用;③未探索其他乳酸化蛋白在CA后神经损伤中的作用;④长期预后数据不足;⑤血液净化组的样本量较少,需要通过扩大样本量进一步验证。⑥血液净化是一种非特异度的治疗,未来研究可以设计更具针对性的实验,例如使用高选择性乳酸吸附柱,以更好地排除其他因素的干扰。
利益冲突 所有作者声明无利益冲突
作者贡献声明 孙晨:动物模型构建、分子生物学实验、行为学检测、统计分析、论文撰写;裴天、朱胜云、李谋谋:动物模型构建;庄伟、杨红宁:质谱分析、行为学检测;胡书群、燕宪亮:论文修改;苏成磊:课题设计、研究指导、数据质量控制、论文修改与最终定稿;赵宁军:研究指导、论文修改
| [1] | Zhang D, Tang ZY, Huang H, et al. Metabolic regulation of gene expression by histone lactylation[J]. Nature, 2019, 574(7779): 575-580. DOI:10.1038/s41586-019-1678-1. |
| [2] | Hagihara H, Shoji H, Otabi H, et al. Protein lactylation induced by neural excitation[J]. Cell Rep, 2021, 37(2): 109820. DOI:10.1016/j.celrep.2021.109820 |
| [3] | Ji XC, Lu J, Wang K, et al. Lactylation in ischemic brain injury: metabolic mechanisms, neuroinflammation, and therapeutic targets: a review[J]. Biomol Biomed, 2025, 26(4): 525-536. DOI:10.17305/bb.2025.12955 |
| [4] | Liu SJ, Yang T, Jiang QS, et al. Lactate and lactylation in sepsis: a comprehensive review[J]. J Inflamm Res, 2024, 17: 4405-4417. DOI:10.2147/jir.s459185 |
| [5] | Nolan JP, Neumar RW, Adrie C, et al. Post-cardiac arrest syndrome: Epidemiology, pathophysiology, treatment, and prognostication[J]. Resuscitation, 2008, 79(3): 350-379. DOI:10.1016/j.resuscitation.2008.09.017 |
| [6] | Kim S, Yang H, Rhee B, et al. Predicting survival outcomes in post-cardiac arrest syndrome: the impact of combined sequential organ failure assessment score and serum lactate measurement[J]. Med Sci Monit, 2023, 29: e942119. DOI:10.12659/msm.942119 |
| [7] | Choudhary RC, Shoaib M, Hayashida K, et al. Multi-drug cocktail therapy improves survival and neurological function after asphyxial cardiac arrest in rodents[J]. Cells, 2023, 12(11): 1548. DOI:10.3390/cells12111548 |
| [8] | 姜骏, 李旷怡, 常瑞明, 等. 大鼠窒息法心搏骤停脑复苏模型的建立与评价[J]. 中华急诊医学杂志, 2014, 23(3): 283-288. DOI:10.3760/cma.j.issn.1671-0282.2014.03.011 |
| [9] | 孙占朋, 廖晓星. 心脏骤停动物模型研究进展[J]. 中国急救医学, 2018, 38(6): 548-552. DOI:10.3969/j.issn.1002-1949.2018.06.019 |
| [10] | Jia XF, Koenig MA, Nickl R, et al. Early electrophysiologic markers predict functional outcome associated with temperature manipulation after cardiac arrest in rats[J]. Crit Care Med, 2008, 36(6): 1909-1916. DOI:10.1097/ccm.0b013e3181760eb5 |
| [11] | 曹光立, 高贵锋, 徐杰丰, 等. 按压自主同步通气模式对猪心肺复苏效果影响的研究[J]. 中华急诊医学杂志, 2024, 33(9): 1257-1264. DOI:10.3760/cma.j.issn.1671-0282.2024.09.007 |
| [12] | 文才, 李恒, 翟小竹, 等. 长时程电诱发心室纤颤致心搏骤停与心肺复苏家猪模型的建立[J]. 中华危重病急救医学, 2017, 29(6): 536-541. DOI:10.3760/cma.j.issn.2095-4352.2017.06.012 |
| [13] | Idris AHAH, Becker LANB, Ornato JP, et al. Utstein-style guidelines for uniform reporting of laboratory CPR research[J]. Resuscitation, 1996, 33(1): 69-84. DOI:10.1016/s0300-9572(96)01055-6 |
| [14] | Guo Y, Gharibani P, Agarwal P, et al. Hyperacute autonomic and cortical function recovery following cardiac arrest resuscitation in a rodent model[J]. Ann Clin Transl Neurol, 2023, 10(12): 2223-2237. DOI:10.1002/acn3.51907 |
| [15] | 翟恒, 王吉慧, 陈习, 等. 远端缺血适应外泌体对大鼠心脏骤停后脑损伤的保护作用[J]. 中华急诊医学杂志, 2024, 33(7): 991-998. DOI:10.3760/cma.j.issn.1671-0282.2024.07.018 |
| [16] | Li XZ, He X, Wang H, et al. Loss of AZIN2 splice variant facilitates endogenous cardiac regeneration[J]. Cardiovasc Res, 2018, 114(12): 1642-1655. DOI:10.1093/cvr/cvy075 |
| [17] | Li X, Xu MX, Yang JY, et al. Nasal vaccination of triple-RBD scaffold protein with flagellin elicits long-term protection against SARS-CoV-2 variants including JN.1[J]. Sig Transduct Target Ther, 2024, 9: 114. DOI:10.1038/s41392-024-01822-3 |
| [18] | Kadenbach B. Intrinsic and extrinsic uncoupling of oxidative phosphorylation[J]. Biochim Biophys Acta BBA Bioenerg, 2003, 1604(2): 77-94. DOI:10.1016/s0005-2728(03)00027-6 |
| [19] | Biros MH, Dimlich RVW. Brain lactate during partial global ischemia and reperfusion: Effect of pretreatment with dichloroacetate in a rat model[J]. Am J Emerg Med, 1987, 5(4): 271-277. DOI:10.1016/0735-6757(87)90349-4 |
| [20] | Hroudová J, Fišar Z. Control mechanisms in mitochondrial oxidative phosphorylation[J/OL]. Neural Regeneration Research, 2013, 8(4): 363-375. DOI: 10.3969/j.issn.1673-5374.2013.04.009. |
| [21] | Su CL, Xiao Y, Zhang GZ, et al. Exogenous nicotinamide adenine dinucleotide attenuates postresuscitation myocardial and neurologic dysfunction in a rat model of cardiac arrest[J]. Crit Care Med, 2022, 50(2): e189-e198. DOI:10.1097/ccm.0000000000005268 |
| [22] | Brooks GA. Lactate shuttles in nature[J]. Biochem Soc Trans, 2002, 30(2): 258-264. DOI:10.1042/bst0300258 |
| [23] | Wang XK, Li H, Li JR, et al. Berberine dissociates mitochondrial complex Ⅰ by SIRT3-dependent deacetylation of NDUFS1 to improve hepatocellular glucose and lipid metabolism[J]. Sci China Life Sci, 2025, 68(9): 2676-2696. DOI:10.1007/s11427-024-2834-8 |
| [24] | Srinivas Bharath MM. Post-translational oxidative modifications of mitochondrial complex Ⅰ (NADH: ubiquinone oxidoreductase): implications for pathogenesis and therapeutics in human diseases[J]. J Alzheimers Dis, 2017, 60(s1): S69-S86. DOI:10.3233/jad-170117 |
| [25] | Bélanger M, Allaman I, Magistretti PJ. Brain energy metabolism: focus on astrocyte-neuron metabolic cooperation[J]. Cell Metab, 2011, 14(6): 724-738. DOI:10.1016/j.cmet.2011.08.016 |