 2026, Vol. 35


引用本文 |


2. 浙江大学医学院邵逸夫医院急诊科, 杭州 310000
2. Department of Emergency Medicine, Sir Run Run Shaw Hospital, Zhejiang University School of Medicine, Hangzhou 310000, China
脓毒症是由宿主对感染反应失调引发的危及生命的器官功能障碍综合征[1]。作为所有感染患者潜在的严重并发症,脓毒症在住院患者中的发病率约为1%~2%[2]。因其持续高发的发病率和病死率,已成为全球重大的公共卫生问题[3]。该病发病机制复杂,至今尚未完全阐明,且临床缺乏特异性早期诊断标志物与靶向治疗药物,导致急诊快速识别、精准干预手段有限[4]。因此,探寻适配急诊快速筛查、免疫调控机制清晰的脓毒症特异性生物标志物,对于改善患者早期分层管理、降低病死率具有重要临床意义。
T细胞作为适应性免疫系统的核心,在免疫应答调节及抗体生成等过程中发挥关键作用[5-6]。脓毒症诱导的获得性免疫功能障碍,以T细胞数量减少与功能紊乱为主要特征。研究表明,脓毒症患者CD4+ T淋巴细胞显著凋亡,且其水平与预后相关[7]。同时,CD4+ T细胞亚群的比例及功能亦出现失衡[8]。CD4+与CD8+ T细胞的耗竭可导致淋巴细胞超敏反应、异常非典型克隆扩增,并增加病毒再激活风险[9]。在脓毒症的小鼠模型及患者中,均观察到CD4+和CD8+ T细胞耗竭加剧,导致免疫抑制状态[10]。调节性T细胞(regulatory T cells, Tregs)在维持免疫耐受中起抑制作用,脓毒症可致其功能失调,影响效应T细胞的及时活化与增殖[11-12]。上述证据共同揭示了T细胞在脓毒症病理生理过程中的关键地位。
现有脓毒症标志物研究多数仅依托批量转录组单一组学开展筛选,难以区分差异基因的细胞来源;多数研究缺少独立外部队列验证,也未系统解析标志物免疫调控通路、挖掘潜在靶向药物,研究结论难以落地于急诊临床转化[13]。单细胞转录组学技术的兴起,为从细胞亚群层面精准解析脓毒症免疫紊乱特征提供了可靠工具。基于此,本研究整合多中心急诊临床批量转录组样本与公共单细胞转录组数据集,联合加权基因共表达网络分析(weighted gene co-expression network analysis, WGCNA)与多重机器学习算法交叉筛选生物标志物;从单细胞层面明确基因表达细胞类型、解析关键免疫调控通路,构建经内外队列双重验证的高诊断效能预测模型,并预测潜在靶向小分子药物,旨在筛选与T细胞功能密切相关的脓毒症特征基因,探讨其与免疫抑制相关的潜在分子机制,为脓毒症早期快速识别、免疫靶向干预提供新的分子依据。
1 资料与方法 1.1 临床样本和测序分析本研究依托中国脓毒症多组学研究协作组(Chinese Multi-Omics Advances In Sepsis, CMAISE)于2020年11月至2021年12月在中国17家医院开展,研究方案已在中国临床试验注册中心完成注册(注册号:ChiCTR2000040446)。
纳入急诊科就诊、符合Sepsis-3.0诊断标准[1]的脓毒症患者,存在以下任一情况予以排除:(1)Child-Pugh C级终末期肝硬化;(2)合并恶性肿瘤、自身免疫性疾病;(3)签署放弃抢救医嘱;(4)妊娠期患者;(5)脓毒症发病超过48 h,或外院转诊至本协作中心时已接受相关治疗;(6)存在免疫抑制状态,包括长期使用免疫抑制剂、放化疗、激素治疗、HIV感染等;(7)合并急性心肌梗死、肺栓塞;(8)既往慢性肾脏病[14]。方案经浙江大学医学院附属邵逸夫医院伦理委员会批准(批准号:20201014-39),患者家属均签署知情同意书。收集患者入院首日外周血样本作为疾病组,以金华中心医院健康受试者(JH_H)样本为对照。
采用Ficoll-Paque Plus密度梯度离心分离外周血单个核细胞,经PBS洗涤后,用GEXSCOPE®红细胞裂解缓冲液(Singleron)于25℃裂解10 min。通过离心获取细胞沉淀,重悬于PBS制成单细胞悬液。用TRIzol试剂(Invitrogen,美国)提取总RNA。样本送杭州联川生物技术股份有限公司进行建库、质检,并在Illumina NovaSeqTM 6000平台上双端测序。对数据进行质控后,将测序读段比对到Ensembl v96数据库中智人的参考基因组,并最终计算出FPKM值。
1.2 公共数据集获取从GEO数据库(https://www.ncbi.nlm.nih.gov/geo)获取验证集GSE65682(GPL13667,脓毒症∶对照=760∶42,血液)和单细胞数据集GSE167363(GPL24676,脓毒症∶对照=10∶2,血液)。使用Seurat包的IntegrateData函数校正批次效应。
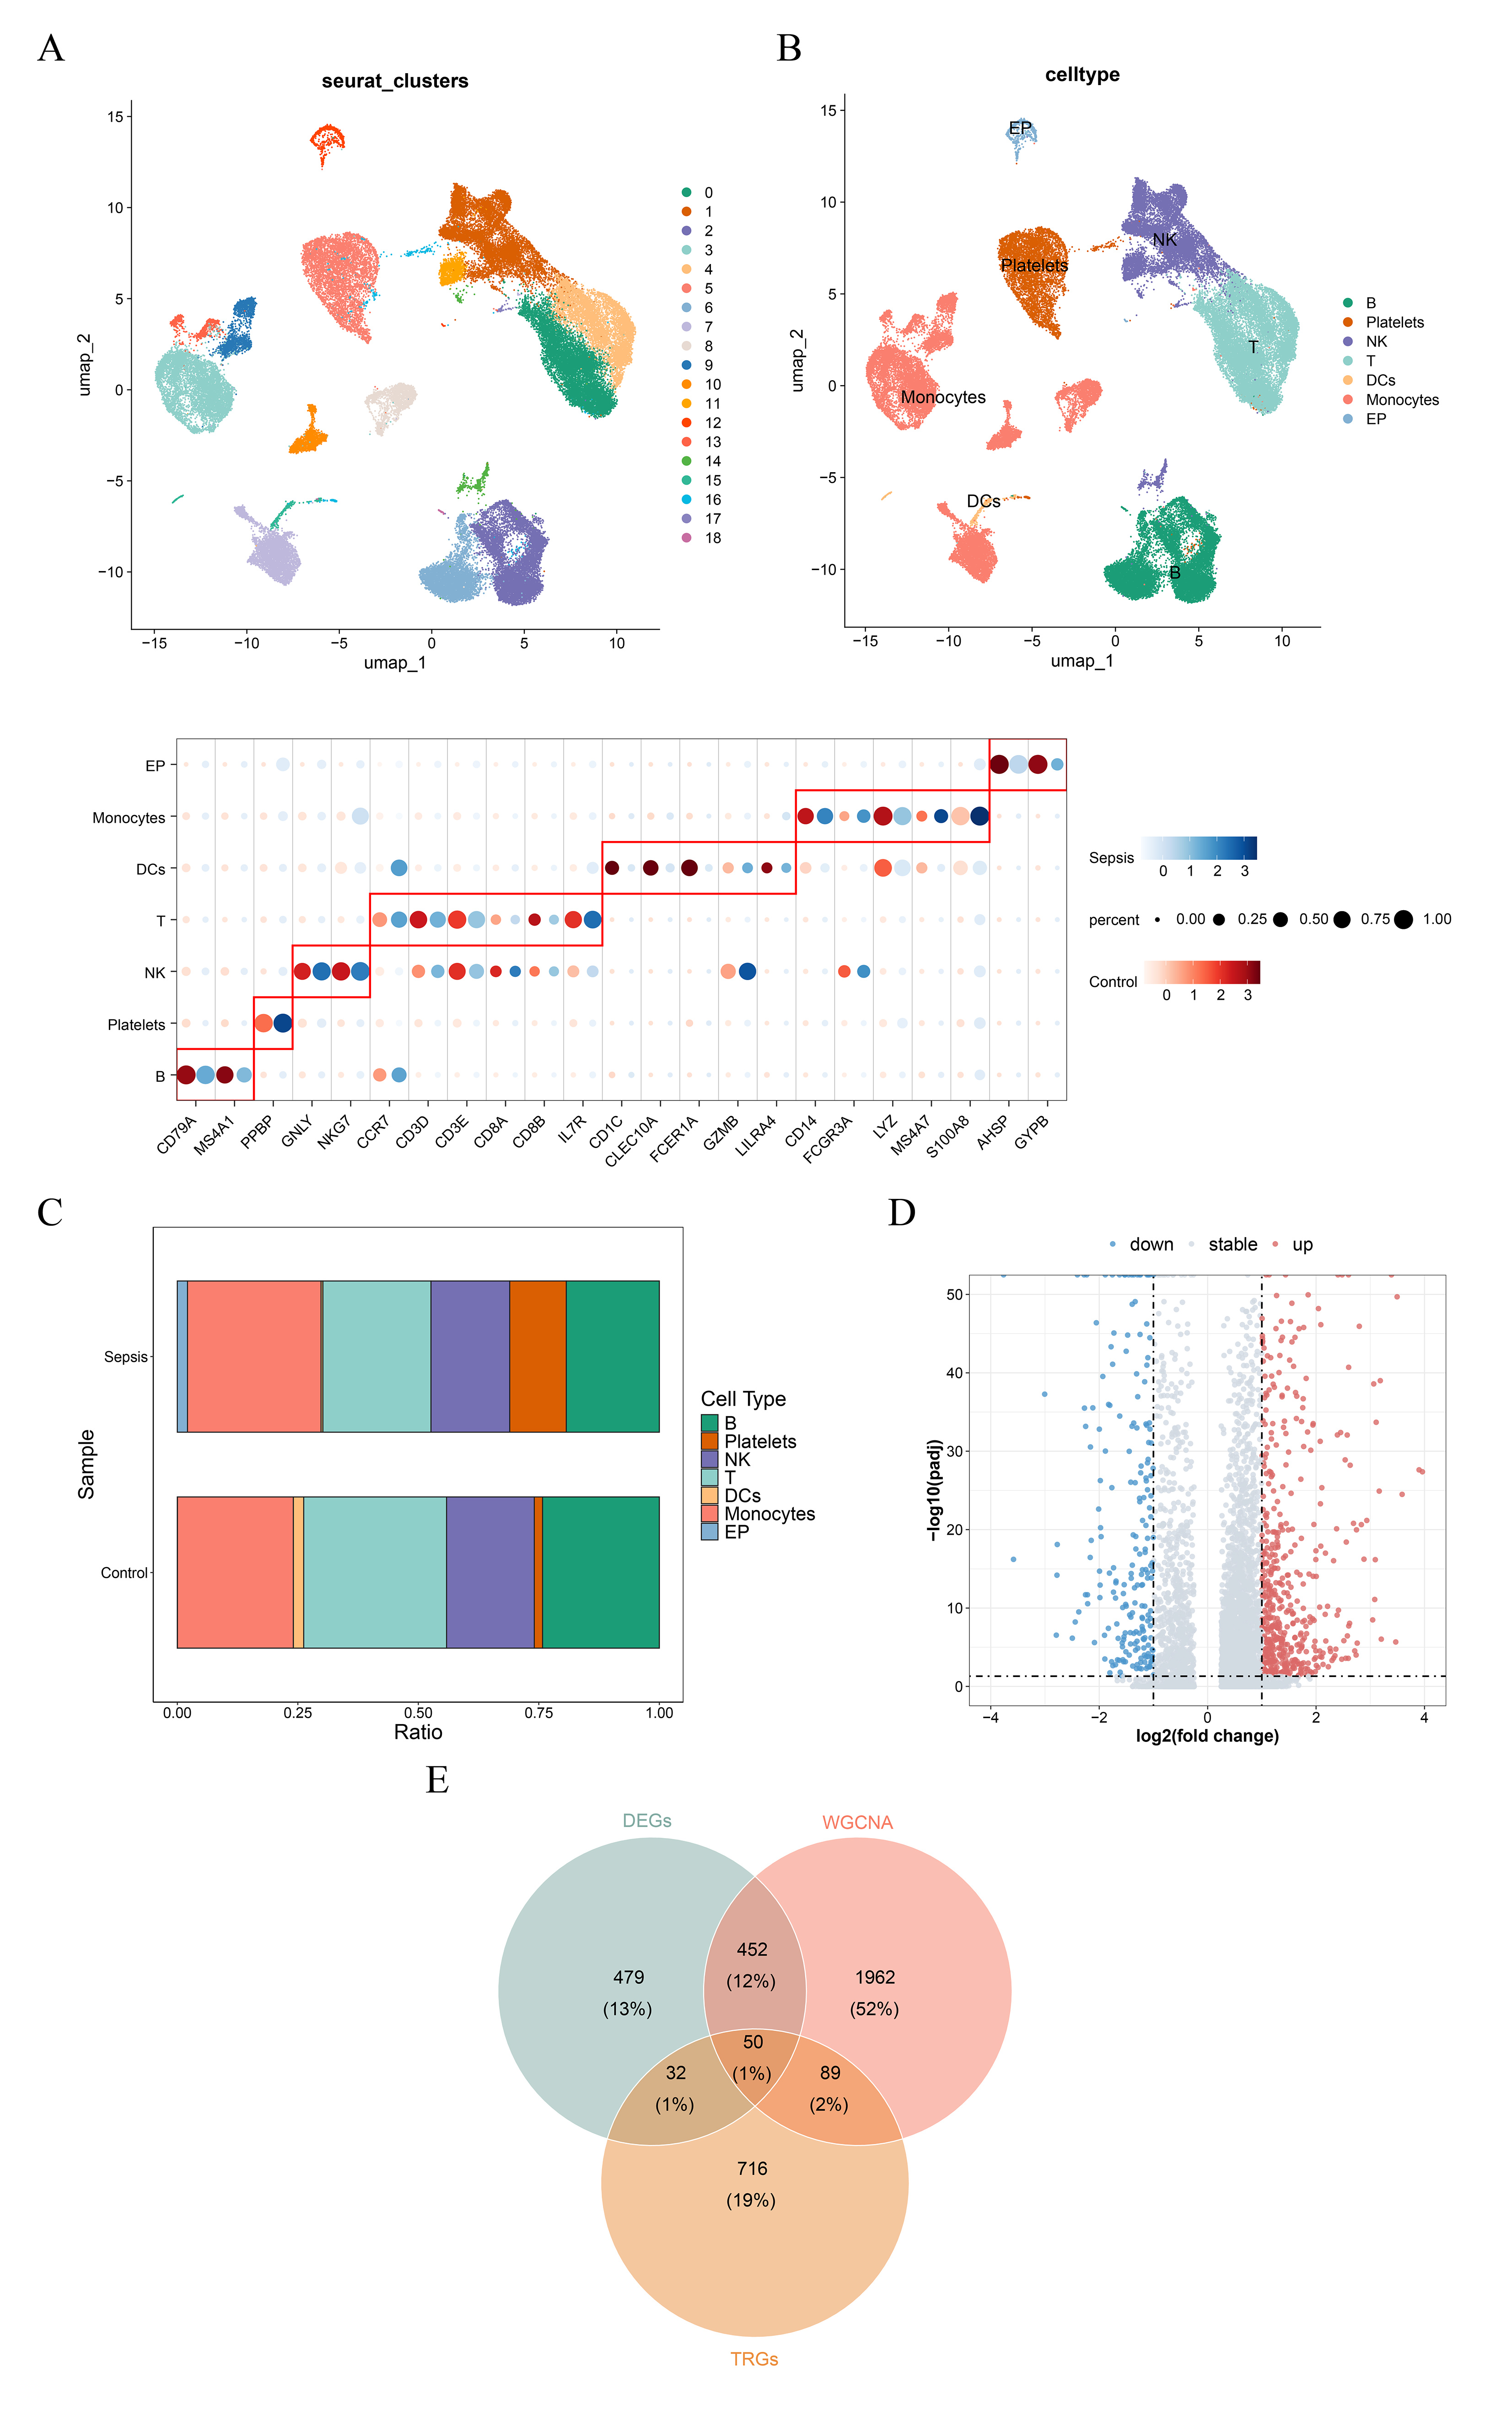
1.3 单细胞分析使用Seurat包对GSE167363进行质控:过滤少于200个基因的细胞和少于3个细胞覆盖的基因,同时过滤掉线粒体基因含量 > 20%的细胞,去除基因数≥3 500的细胞,以及计数≤200和≥20 000的基因。用FindVariableFeatures的vst识别前2 000个高变基因。进行主成分分析降维,基于前30个主成分,以FindNeighbors和FindClusters(分辨率=0.3)聚类。参考文献[15]的标志基因注释细胞簇。采用Wilcoxon检验比较脓毒症与对照组间细胞类型比例(经BH校正后P<0.05为显著)。使用CellChat分析细胞通讯。
1.4 差异表达分析使用DESeq2鉴定训练队列脓毒症与对照间的差异表达基因(Differentially expressed genes1, DEGs1),阈值adj. P<0.05且|log2FC| > 2。利用Seurat的FindMarkers提取T细胞亚群的DEGs2(|log2FC| > 1且adj. P<0.05)。
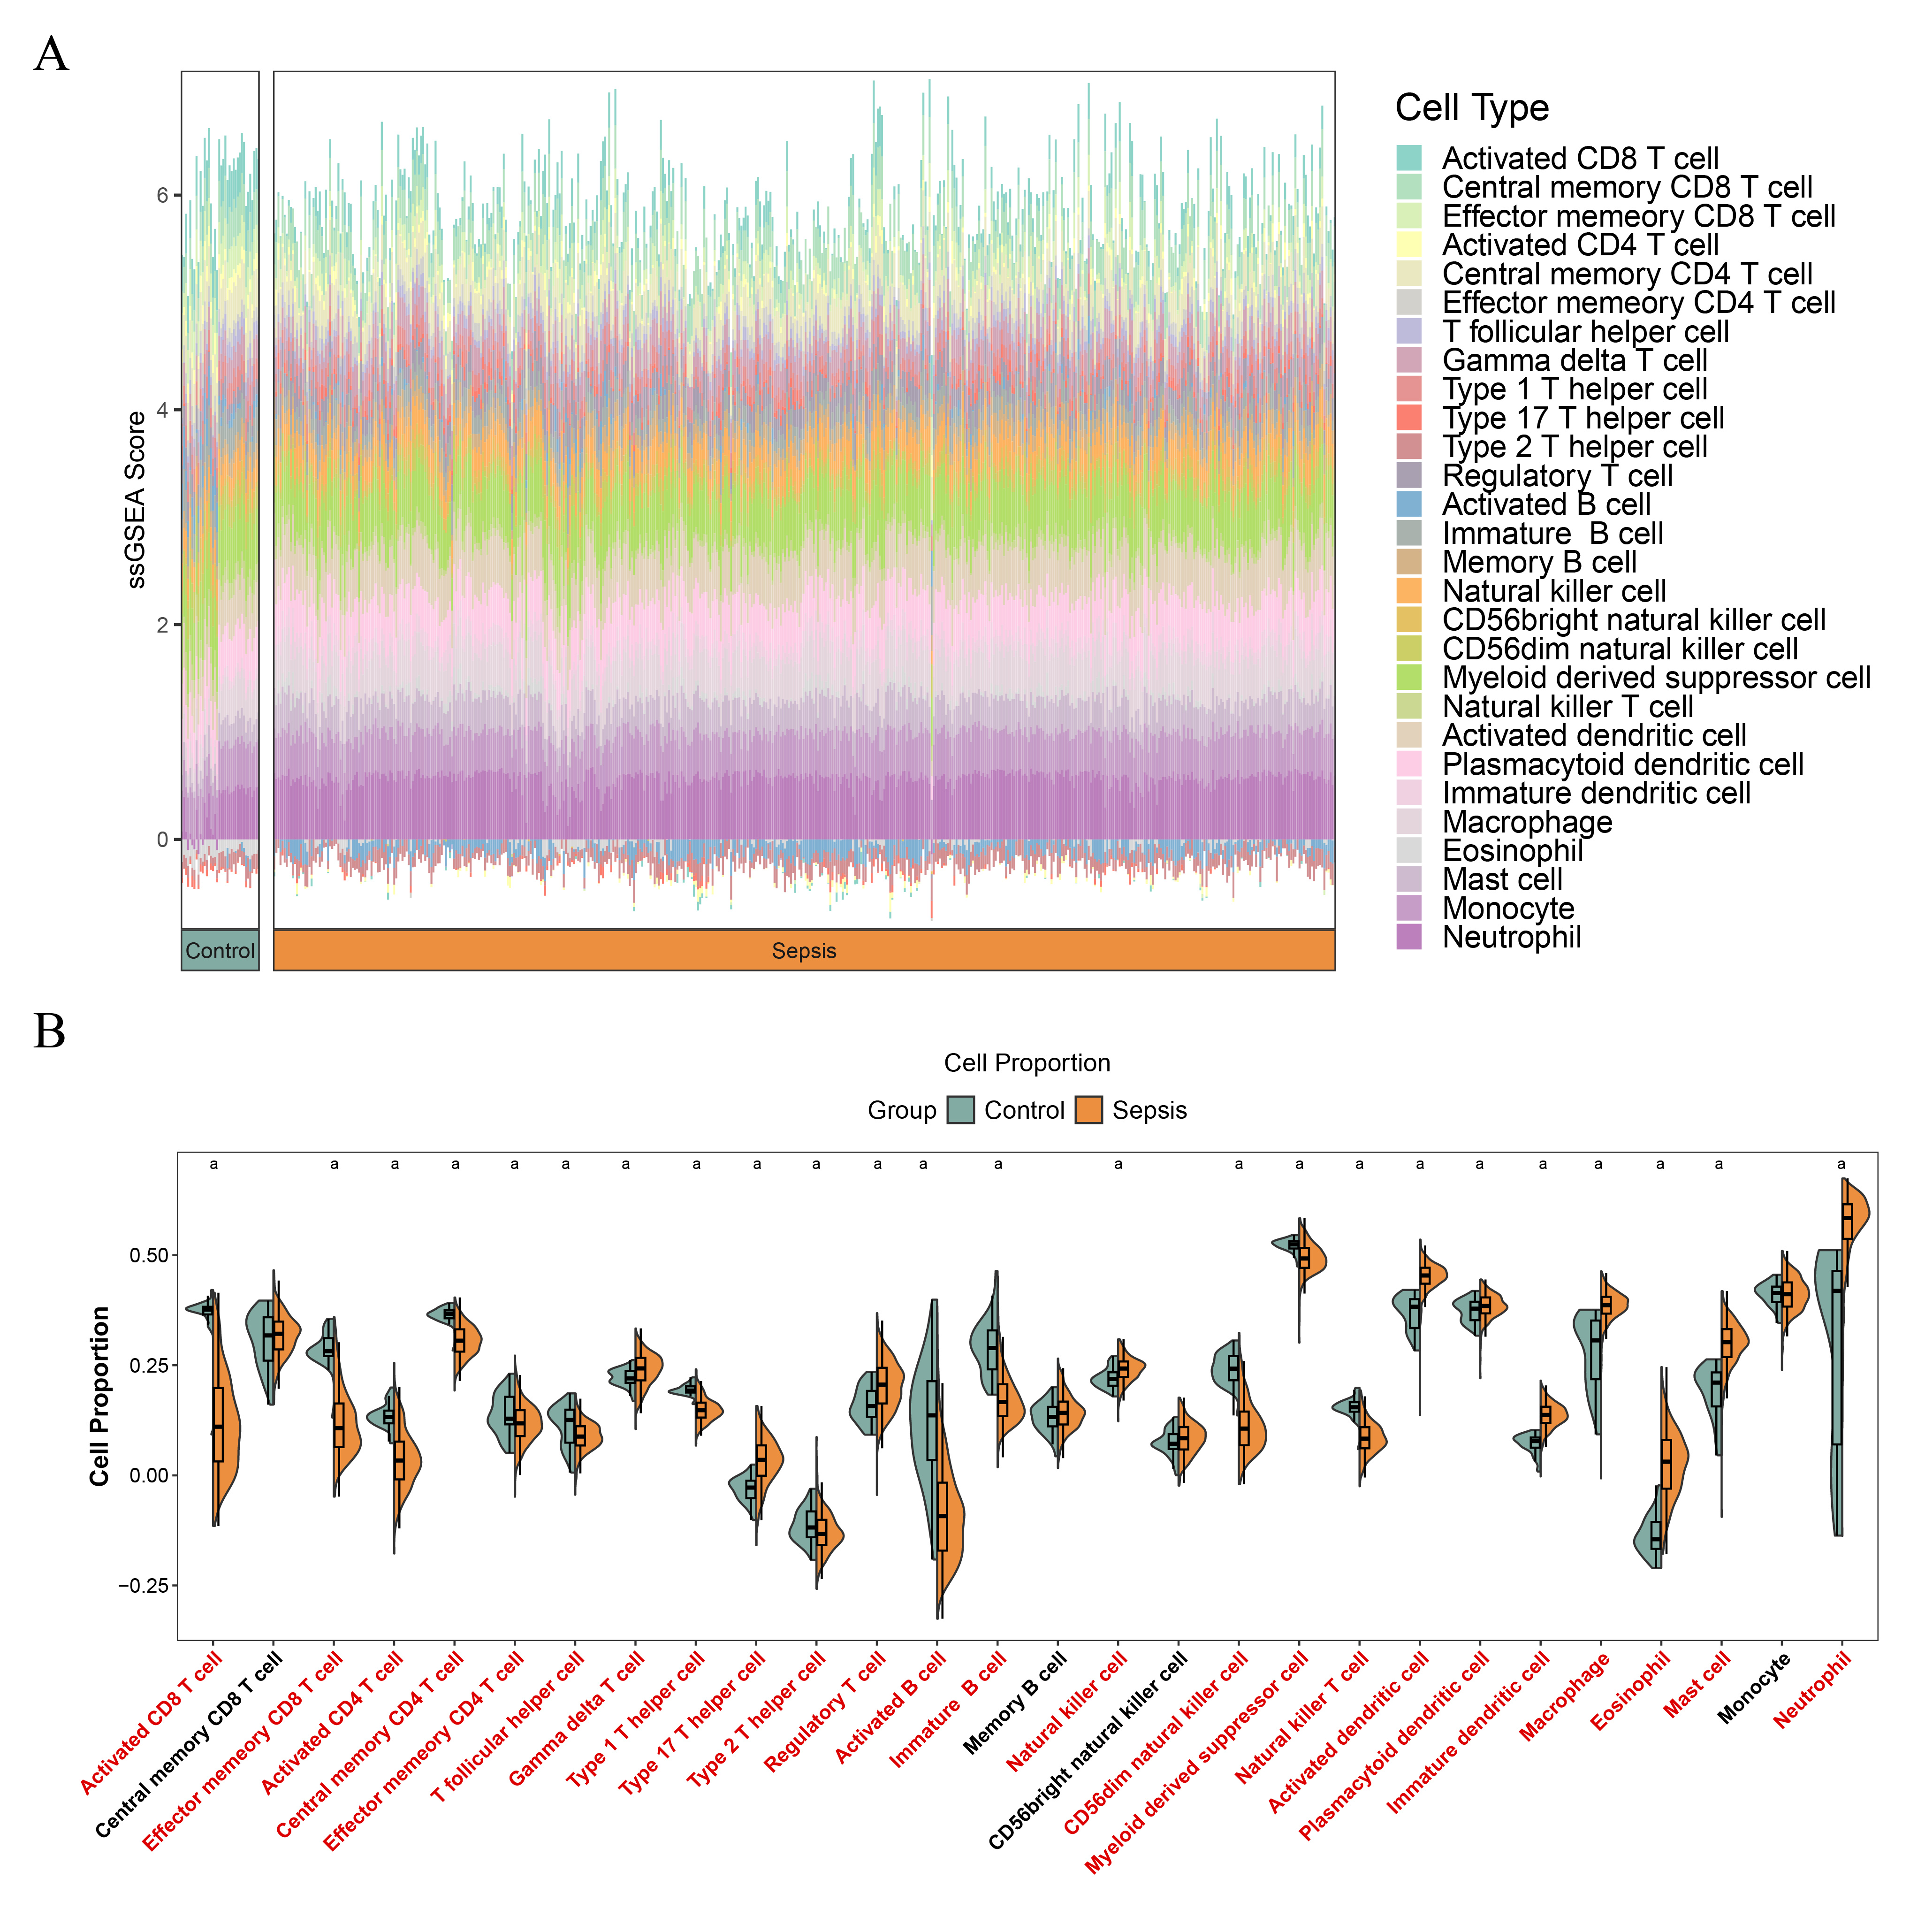
1.5 免疫浸润分析与WGCNA使用ssGSEA计算28种免疫细胞浸润评分。采用Wilcoxon检验比较组间差异,选择差异最显著的T细胞亚型进行后续分析。用WGCNA构建共表达网络:先聚类样本剔除离群值,选择软阈值功率(R2 > 0.9)确保无标度拓扑。通过动态树剪将基因聚类为模块(每模块≥200基因)。计算模块与目标T细胞亚型的Pearson相关系数,筛选相关性最强的关键模块并提取基因(P<0.05)。
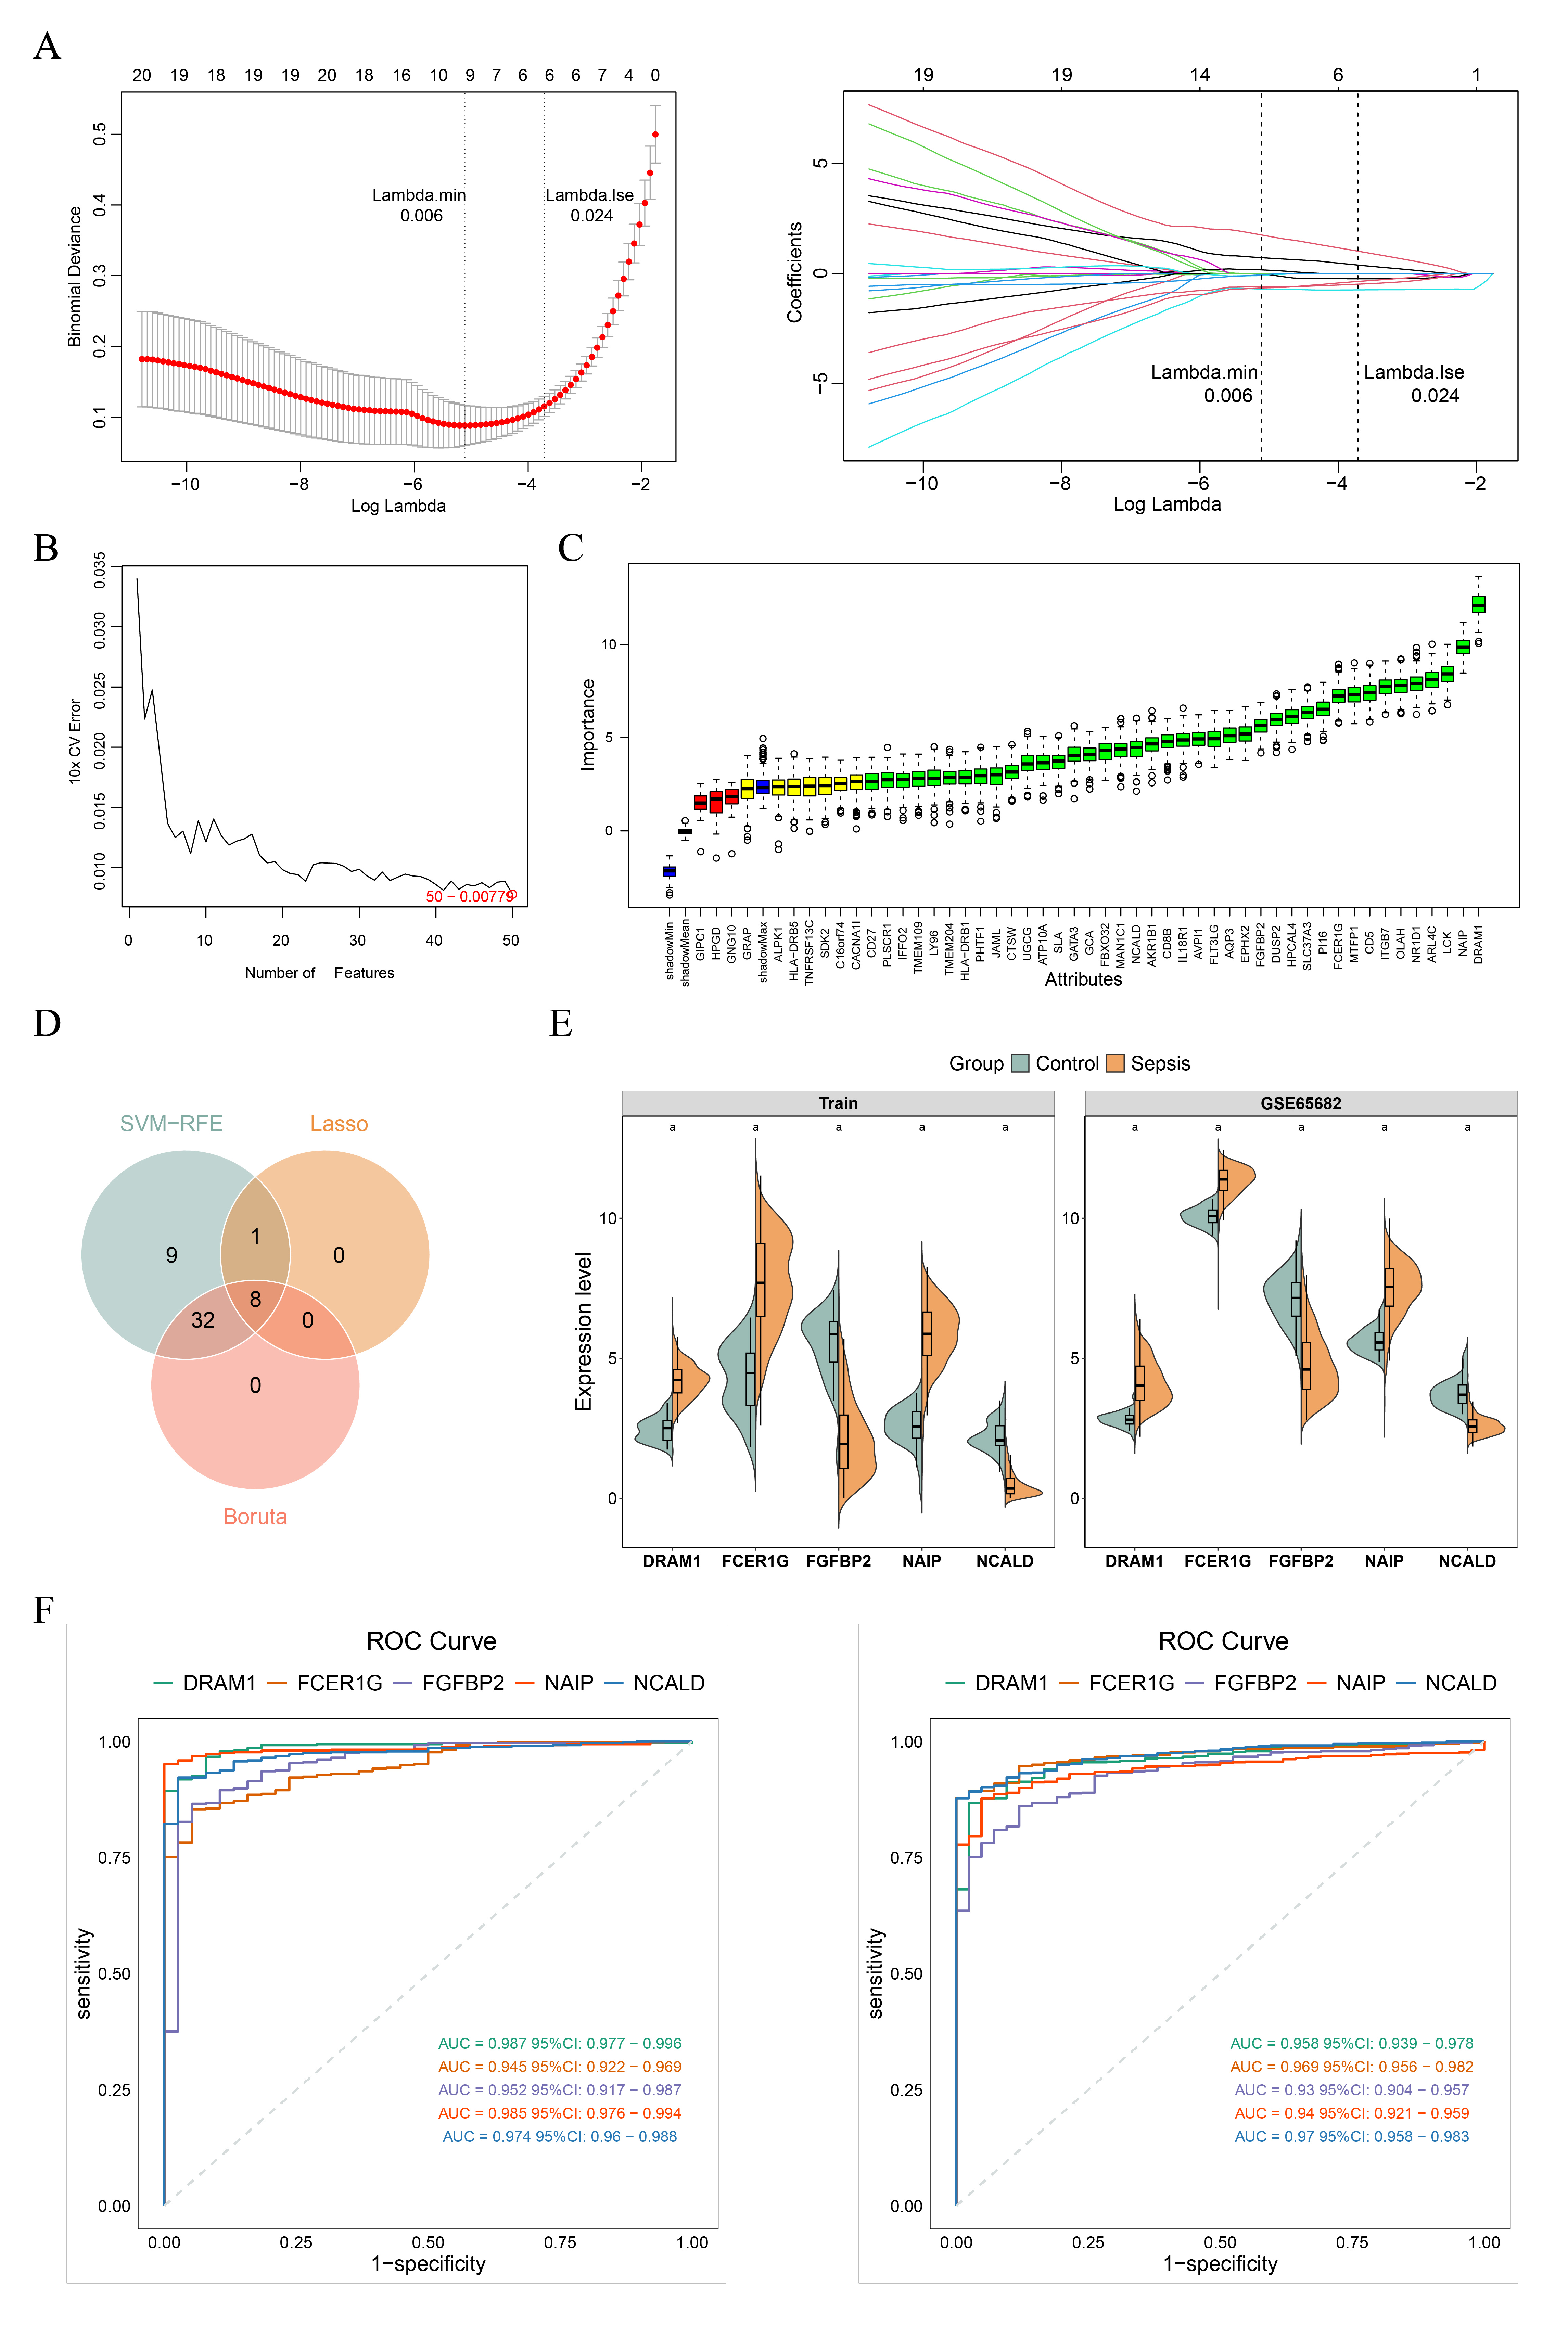
1.6 机器学习筛选生物标志物取DEGs1、DEGs2及关键模块基因的交集作为候选基因。应用glmnet、Boruta、e1071包进行LASSO、Boruta、SVM-RFE分析并通过5折交叉验证。整合三种算法的交集基因作为候选生物标志物。筛选生物标志物标准为在训练集与验证集中组间差异显著、表达趋势一致,且AUC值> 0.7。
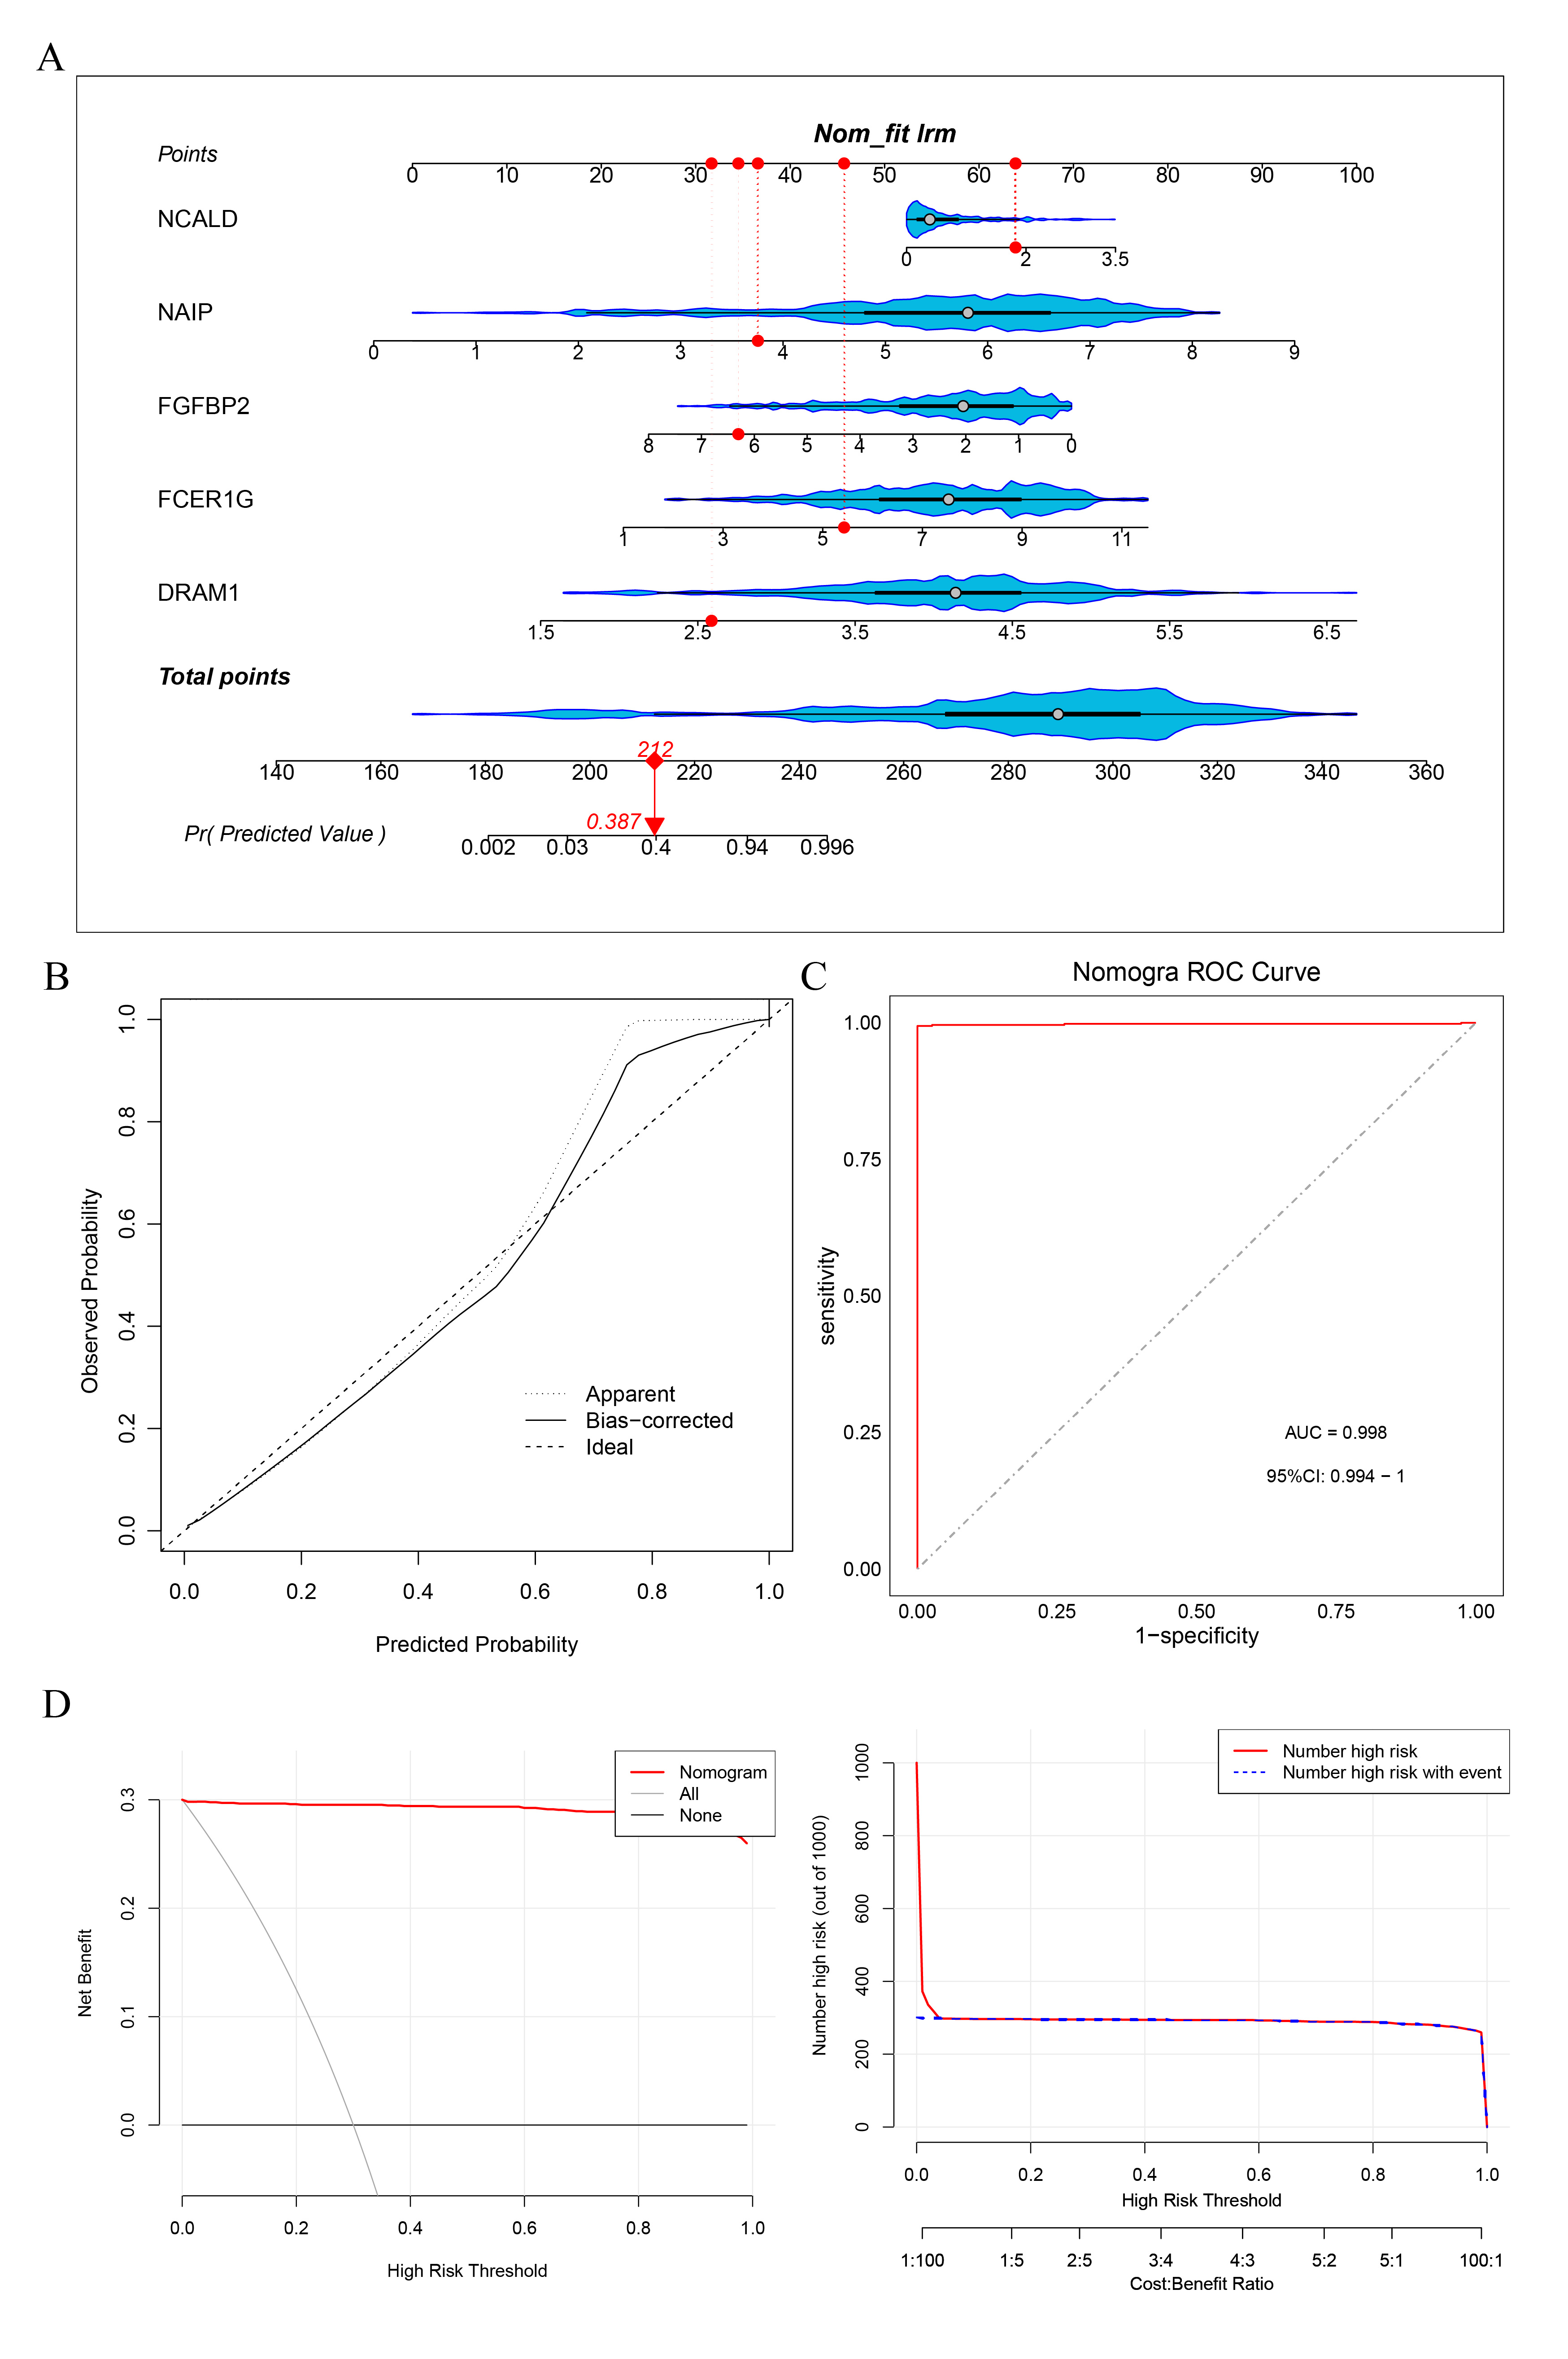
1.7 构建列线图基于生物标志物表达,使用rms包构建预测脓毒症风险的列线图。绘制校准曲线和ROC曲线评估区分能力。决策曲线和临床影响曲线评估临床净获益。
1.8 基因集富集分析(Gene set enrichment analysis,GSEA)基于MSigDB数据库的c2.cp.kegg.v2023.2.Hs.symbols,计算各生物标志物与所有基因的Spearman相关系数,排序后行GSEA(|NES| > 1,P<0.05)。同时,用ssGSEA计算训练集样本中186条通路的富集分数,分析生物标志物表达与通路富集分数(|r| > 0.3且P<0.001)及免疫细胞浸润的相关性。
1.9 调控网络与药物预测通过miRDB数据库(https://mirdb.org/cgi-bin/search.cgi,评分 > 60)预测靶向生物标志物的miRNAs,用Starbase数据库(https://rnasysu.com/encori/,clipExpNum > 20)识别miRNA-lncRNA关系。通过DSIGDB(https://dsigdb.tanlab.org/DSigDBv1.0/)和DGIDB(https://dgidb.org/about)预测靶向生物标志物的药物。用Cytoscape可视化mRNA-miRNA-lncRNA及药物-生物标志物网络。对综合评分靠前且毒性较低的潜在药物进行分子对接。药物和靶点结构分别从PubChem(https://pubchem.ncbi.nlm.nih.gov/)和UniProt(https://www.uniprot.org)下载。使用AutoDock Vina对接,PyMOL可视化。
1.10 统计学方法所有分析在R软件(v4.2.1)中完成。符合正态分布的计量资料以均数±标准差(x±s)表示,两组间比较采用独立样本t检验;不符合正态分布的计量资料以中位数(四分位数)[M(Q1, Q3)]表示,两组间比较采用非参数秩和检验。计数资料采用卡方检验。经FDR校正后adj. P<0.05为有统计学意义。
2 结果本研究最终建模训练集样本共552例, 因部分病例缺乏完整实验结果,仅380例脓毒症患者与38例对照组病历资料可供分析。两组基线资料对比可见,脓毒症组年龄水平更高,体重水平更低;各类慢性基础疾病合并比例高于对照组。实验室指标结果显示,脓毒症组C反应蛋白、白细胞、血清白蛋白、红细胞压积、血肌酐、总胆红素、血小板计数、凝血酶时间组间比较差异均存在统计学意义。器官功能评分方面,脓毒症组器官衰竭评分高于对照组。两组全部基线临床资料见表 1。
| 指标 | 对照组(n=38) | 脓毒症组(n=380) | χ2/Z值 | P值 |
| 年龄a | 66.0 (53.0, 70.0) | 71.0 (61.0, 81.0) | 12.84 | <0.001 |
| 性别b | ||||
| 男性 | 23 (60.5) | 234 (61.6) | 0.16 | NA |
| 女性 | 15 (39.5) | 146 (38.4) | 0.16 | NA |
| 身高a | 162.0 (160.0, 168.0) | 165.0 (158.0, 171.0) | 0.47 | 0.493 |
| 体重a | 72.0 (62.0, 81.0) | 60.0 (55.0, 70.0) | 6.65 | 0.010 |
| 基础疾病史b | ||||
| 高血压 | 2 (5.3) | 168 (44.2) | 278.00 | <0.001 |
| 糖尿病 | 0 (0.0) | 96 (25.3) | 290.00 | <0.001 |
| 心肌梗死 | 0 (0.0) | 15 (3.9) | 289.00 | <0.001 |
| 心力衰竭 | 1 (2.6) | 37 (9.7) | 289.00 | <0.001 |
| 脑血管疾病 | 1 (2.6) | 63 (16.6) | 289.00 | <0.001 |
| 痴呆 | 0 (0.0) | 26 (6.8) | 289.00 | <0.001 |
| 慢阻肺 | 0 (0.0) | 29 (7.6) | 277.00 | <0.001 |
| 瘫痪 | 0 (0.0) | 19 (5.0) | 277.00 | <0.001 |
| 肾功能衰竭 | 1 (2.6) | 34 (8.9) | 105.00 | <0.001 |
| 机械通气时间(d)a | NA | 3.0 (0.0, 8.0) | NA | NA |
| ICU住院时间(d)a | NA | 13.5 (9.0, 24.0) | NA | NA |
| 院内死亡b | 0 (0.0) | 51 (13.4) | - | <0.001 |
| 实验室指标a | ||||
| SaO2 | NA | 97.0 (94.1, 98.8) | NA | NA |
| PCT | 0.1 (0.1, 0.1) | 24.0 (4.7, 87.2) | 2.75 | 0.097 |
| BUN | 5.4 (4.4, 6.4) | 11.4 (8.1, 16.3) | 16.81 | <0.001 |
| ALB | 39.1 (37.9, 43.4) | 28.9 (25.4, 32.6) | 25.34 | <0.001 |
| CR | 74.0 (67.0, 98.0) | 132.7 (87.0, 209.0) | 9.10 | 0.003 |
| TBIL | 13.9 (9.6, 18.7) | 19.8 (11.4, 33.2) | 4.10 | 0.043 |
| CRP | 1.0 (0.6, 2.2) | 147.3 (70.5, 219.7) | 31.54 | <0.001 |
| WBC | 5.7 (5.1, 6.6) | 12.6 (7.8, 18.6) | 14.34 | <0.001 |
| HCT | 41.2 (36.5, 46.7) | 35.3 (30.1, 40.3) | 8.32 | 0.004 |
| PLT | 207.0 (172.0, 255.0) | 139.0 (82.0, 202.0) | 5.83 | 0.016 |
| APTT | 29.4 (27.2, 34.5) | 33.4 (29.1, 41.1) | 3.48 | 0.062 |
| TT | 11.8 (11.4, 11.9) | 16.2 (14.9, 17.3) | 28.91 | <0.001 |
| SOFA | 1.0 (1.0, 1.0) | 9.0 (6.0, 11.0) | 100.00 | <0.001 |
| 注:SaO2为血氧饱和度,PCT为降钙素原,BUN为血尿素氮,ALB为血清白蛋白,CR为血肌酐,TBIL为总胆红素,CRP为C反应蛋白,WBC为白细胞,HCT为红细胞,PLT为血小板,APTT为活化部分凝血活酶时间,TT为凝血酶时间,SOFA为总SOFA评分;a为M(Q1,Q3);b为(例,%) | ||||
为阐明脓毒症的免疫微环境,分析了28种免疫细胞的浸润水平,脓毒症与对照组间有24种细胞评分差异显著(图 1)。脓毒症患者Tregs和中性粒细胞等浸润升高,活化的CD8+ T细胞及CD4+ T细胞等减少。
|
| 注:A为脓毒症与对照组免疫细胞评分的累积分布;B为两组间免疫细胞浸润差异;aP<0.05 图 1 免疫浸润分析 Fig 1 Immune infiltration analysis |
|
|
训练队列脓毒症和对照间鉴定出1 013个DEGs1(612个上调,401个下调)(附图1A~B)。以差异最显著的效应记忆CD8+ T细胞为WGCNA目标性状,获得2 553个关键模块基因(附图1C~F)。单细胞分析鉴定出19个细胞簇(图 2A),注释为B细胞、血小板、NK细胞、T细胞、树突状细胞、单核细胞和红系祖细胞(图 2B)。脓毒症组T细胞比例下降(图 2C)。T细胞亚群脓毒症和对照间获得887个DEGs2(上调609个,下调278个)(图 2D)。最终取DEGs1、关键模块基因和DEGs2的交集,得到50个候选基因(图 2E)。
|
| 注:A为细胞聚类;B为细胞类型注释;C为脓毒症与对照组细胞类型的比例;D为T细胞DEGs2的火山图(脓毒症vs. 对照);E为DEGs1、关键模块基因和DEGs2交叉得到候选基因 图 2 单细胞分析和候选基因的筛选 Fig 2 Single-cell analysis and acquisition of candidate genes |
|
|
LASSO、SVM-RFE和Boruta分别筛选出9、50和40个特征基因(图 3A~C)。取交集得到8个候选生物标志物(图 3D)。其中5个基因(DRAM1、FCER1G、NAIP、FGFBP2、NCALD)在训练集和验证集(GSE65682)中表达趋势一致且差异显著(图 3E):DRAM1、FCER1G和NAIP在脓毒症中上调,FGFBP2和NCALD下调。这5个基因在训练和验证集中的AUC值均 > 0.9(图 3F),故确定为最终的生物标志物。
|
| 注:A为LASSO分析;B为SVM-RFE分析;C为Boruta算法;D为算法得到基因的交叉为候选生物标志物;E为训练和验证集中对照和脓毒症样本间候选生物标志物的表达差异;F为训练集和验证集候选生物标志物的ROC曲线;aP<0.05 图 3 生物标志物的鉴定 Fig 3 Identification of biomarkers |
|
|
GSEA显示T细胞受体信号通路与FGFBP2和NCALD相关;NAIP、FGFBP2和NCALD集富集于核糖体、DNA复制等代谢通路;DRAM1和FCER1G则与FcγR介导的吞噬作用通路相关(附图2)。相关性分析显示生物标志物表达与NOD样受体信号通路和DNA复制通路显著相关(附图3)。在免疫层面,FCER1G和NAIP与肥大细胞、中性粒细胞高度相关;NCALD和FGFBP2与活化的CD8+ T细胞、NK T细胞等多种淋巴细胞广泛相关。
2.5 构建并验证脓毒症风险预测列线图基于生物标志物构建列线图预测个体风险(图 4A,附图4A)。校准曲线显示预测概率与实际风险高度一致(图 4B,附图4B),训练集和验证集AUC分别为0.998和0.989(图 4C,附图4C)。决策曲线与临床影响曲线表明该模型在广泛阈值范围内具有临床净获益(图 4D,附图4D),展现出良好的应用潜力。
|
| 注:A为列线图、B为校正曲线;C为ROC曲线;D为决策曲线和临床影响曲线 图 4 列线图的构建(训练集) Fig 4 Construction of the nomogram (training set) |
|
|
药物预测识别出57种可能靶向生物标志物的药物,其中NCALD对应候选药物最多(46种)(图 5A)。分子对接显示姜黄素与DRAM1、氯氮平与FGFBP2、IB-MECA与NAIP的结合能均低于-5 kcal/mol(1 kcal=4.184 KJ),提示结合稳定(表 2,图 5C~G)。调控网络预测了71个相关miRNAs和43对miRNA-lncRNA关系(图 5B),例如hsa-miR-181a-5p/hsa-miR-181d-5p可能通过NEAT1调控NAIP,hsa-miR-224-5p可能同时靶向FGFBP2和NCALD。
|
| 注:A为生物标志物-药物网络;B为DRAM1与姜黄素分子对接结果;C为FCER1G和乙酰水杨酸(阿司匹林)分子对接结果;D为FGFBP2与氯氮平分子对接结果;E为NAIP和N6-(3-碘苄基)-腺苷-5′-n-甲基脲酰胺(IB-MECA)分子对接结果;F为NCALD和三氟吡啶分子对接结果;G为生物标志物-miRNA-lncRNAs网络 图 5 药物预测与分子对接 Fig 5 Drug prediction and molecular docking |
|
|
| 基因 | 蛋白质名称 | 蛋白质结构 | 药物名称 | 化合物标识符 | 能量(kcal/mol) | 氢键数量 |
| DRAM1 | Q8N682 | AF-Q8N682-F1 | 姜黄素 | CID969516 | -5.51 | 1 |
| FCER1G | P30273 | AF-P30273-F1 | 乙酰水杨酸(阿司匹林) | CID2244 | -3.87 | 4 |
| FGFBP2 | Q9BYJ0 | AF-Q9BYJ0-F1 | 氯氮平 | CID135398737 | -6.16 | 1 |
| NAIP | Q13075 | 2VM5 | 腺苷A3受体激动剂 | CID123683 | -5.83 | 5 |
| NCALD | P61601 | AF-P61601-F1 | 三氟尿苷 | CID6256 | -4.21 | 4 |
单细胞表达分析显示,FGFBP2和NCALD主要在NK细胞中高表达;FCER1G广泛表达于单核细胞、树突状细胞、血小板和NK细胞;NAIP和DRAM1主要表达于单核细胞、树突状细胞和B细胞(图 6A)。脓毒症组中,这些生物标志物在NK细胞和T细胞中的表达水平显著改变(图 6B)。细胞通讯分析表明,脓毒症组血小板与T细胞间的相互作用数量增加(图 6C)。
|
| 注:A为生物标志物在细胞类型中的分布;B为脓毒症和对照组间细胞类型的生物标志物表达差异;C为细胞通讯;aP<0.05 图 6 单细胞水平上生物标志物的表达和细胞通讯 Fig 6 Analysis of biomarker expression and cell communication at the single-cell level |
|
|
脓毒症患者经历慢性免疫抑制,导致对通常由T细胞控制的感染的易感性增加[16]。因此,深入探究T细胞在脓毒症中的作用对于发现新的治疗靶点至关重要。本研究通过整合多组学数据与生物信息学方法,成功鉴定出5个与T细胞功能密切相关的生物标志物(DRAM1、FCER1G、NAIP、FGFBP2和NCALD),为脓毒症的早期诊断提供了新的工具和思路。
DRAM1是调控p53依赖性细胞凋亡和自噬的关键因子。研究表明,DRAM1在大肠杆菌感染和脓毒症模型中表达上调,可能通过影响细胞自噬和糖酵解过程参与疾病进程[17-18]。FCER1G(FcεRⅠγ链)是参与多种免疫受体信号转导的先天免疫基因。在脓毒症背景下,FcRγ可能发挥有害作用:FcRγ基因敲除小鼠表现出更强的细菌清除能力和更高的存活率[19],其保护机制可能与干扰TLR4信号通路有关[20],提示FcRγ可能是潜在的治疗靶点。NAIP作为NLRC4炎症小体的组分,可感知胞内细菌蛋白并激活抗菌免疫,已有研究提出其作为脓毒症相关细胞焦亡的标志物[21]。FGFBP2特异性地表达于具有细胞毒性的Th1型CD4+ T细胞、效应CD8+ T细胞及CD16+ NK细胞[22],其在脓毒症中的作用尚不明确。NCALD属于神经元钙传感蛋白家族,在脓毒症大鼠模型中受miR-181b调控而下调[23],其具体功能有待研究。
GSEA分析显示,NAIP、FGFBP2和NCALD相关基因显著富集于抗原处理与呈递通路,该通路连接先天与适应性免疫,其功能障碍是脓毒症免疫麻痹的重要机制之一[24]。同时,这些生物标志物也与NOD样受体信号通路显著相关。NLR炎症小体的过度激活可促进IL-1β和IL-18等促炎因子的释放,加剧脓毒症相关的全身炎症反应[25]。
分子对接提示姜黄素(靶向DRAM1)、氯氮平(靶向FGFBP2)和IB-MECA(靶向NAIP)与相应靶点具有较好的结合亲和力。然而,其药理作用在脓毒症背景下可能迥异:姜黄素以其抗炎、抗氧化特性著称,可能形成抑制炎症、缓解病情的良性循环[26];而抗精神病药氯氮平有临床报道提示可能增加严重感染风险[27];A3AR激动剂IB-MECA则可能通过激活促炎通路加剧脓毒症相关损伤[28]。这些预测需要在后续的实验中予以验证。
本研究存在以下局限性:首先,本研究建模训练集共纳入514例脓毒症患者与38例健康对照,受回顾性病历记录完整度限制,仅380例脓毒症患者具备完整临床信息,基线组间比较仅统计基资料完善的亚组,全部训练样本未能同步完成基线特征统计,可能对基线特征整体代表性造成轻微影响;病例对照比例约13.5∶1,样本分布失衡可能增加Ⅰ类错误、削弱统计结果稳健性。本研究通过严格差异基因筛选阈值、非参数检验、机器学习5折交叉验证及GSE65682外部队列验证缓解该偏倚;但受入组标准限制,健康志愿者招募数量有限,后续需配比均衡队列再次验证标志物。其次,本研究仅采集入院单次外周血开展横断面分析,未设置纵向时序采样。脓毒症病程呈动态变化,基因表达、免疫细胞比例存在时序波动与昼夜节律干扰,单时点样本仅能反映入院瞬时分子特征,无法区分组间差异源于疾病本身或采血时间,也难以证实本研究基因是脓毒症早期特异性信号。此外,已有纵向转录组研究证实,多时点采样可检出单一时点样本遗漏的动态免疫特征 [29]。本模型仅适用于急诊入院快速筛查,无法监测病程演变,后续将构建纵向队列解析标志物动态表达规律。
综上所述,本研究以临床样本和单细胞转录组数据为基础,综合运用生物信息学方法,鉴定出5个与脓毒症T细胞功能障碍相关的生物标志物(DRAM1、FCER1G、NAIP、FGFBP2和NCALD),并构建了具有高区分效能的诊断列线图。药物预测提示姜黄素等分子可能通过调控特定靶点发挥治疗潜力。在临床层面,这5个生物标志物适配急诊入院单次采血场景,可为脓毒症患者快速分层、免疫抑制状态早期识别提供分子依据;在基础研究中,本研究从单细胞亚群层面明确了5个生物标志物在T细胞、固有免疫细胞中的异常表达模式,阐明了标志物调控T细胞受体、NOD样受体等关键通路的分子机制,为脓毒症免疫紊乱机制解析、新型免疫干预靶点开发提供了新的研究思路。后续本团队将开展细胞与动物体内功能实验验证5个基因的免疫调控功能,并依托多中心纵向队列验证模型的动态诊断价值,进一步推动本研究成果向脓毒症临床精准诊疗转化。
利益冲突 所有作者声明无利益冲突
作者贡献声明 苗岩松、章仲恒:论文撰写;胡黎、章仲恒、李虎、丁琼、洪玉才:数据收集及整理、统计学分析;苗岩松、章仲恒:研究设计、论文修改
本文附件请登录中华急诊网(www.cem.org.cn)浏览(Html格式全文)
| [1] | Singer M, Deutschman CS, Seymour CW, et al. The third international consensus definitions for sepsis and septic shock (sepsis-3)[J]. JAMA, 2016, 315(8): 801-810. DOI:10.1001/jama.2016.0287 |
| [2] | Huang M, Cai SL, Su JQ. The pathogenesis of sepsis and potential therapeutic targets[J]. IJMS, 2019, 20(21): 5376. DOI:10.3390/ijms20215376 |
| [3] | Rudd KE, Johnson SC, Agesa KM, et al. Global, regional, and national sepsis incidence and mortality, 1990-2017: analysis for the Global Burden of Disease Study[J]. Lancet, 2020, 395(10219): 200-211. DOI:10.1016/S0140-6736(19)32989-7 |
| [4] | Haak BW, Prescott HC, Wiersinga WJ. Therapeutic potential of the gut microbiota in the prevention and treatment of sepsis[J]. Front Immunol, 2018, 9: 2042. DOI:10.3389/fimmu.2018.02042 |
| [5] | Juno JA, van Bockel D, Kent SJ, et al. Cytotoxic CD4 T cells-friend or foe during viral infection?[J]. Front Immunol, 2017, 8: 19. DOI:10.3389/fimmu.2017.00019 |
| [6] | Figueiredo MM, Costa PAC, Diniz SQ, et al. T follicular helper cells regulate the activation of B lymphocytes and antibody production during Plasmodium vivax infection[J]. PLoS Pathog, 2017, 13(7): e1006484. DOI:10.1371/journal.ppat.1006484 |
| [7] | Venet F, Monneret G. Advances in the understanding and treatment of sepsis-induced immunosuppression[J]. Nat Rev Nephrol, 2018, 14(2): 121-137. DOI:10.1038/nrneph.2017.165 |
| [8] | Cabrera-Perez J, Condotta SA, Badovinac VP, et al. Impact of sepsis on CD4 T cell immunity[J]. J Leukoc Biol, 2014, 96(5): 767-777. DOI:10.1189/jlb.5MR0114-067R |
| [9] | Drewry AM, Samra N, Skrupky LP, et al. Persistent lymphopenia after diagnosis of sepsis predicts mortality[J]. Shock, 2014, 42(5): 383-391. DOI:10.1097/SHK.0000000000000234 |
| [10] | Hotchkiss RS, Swanson PE, Freeman BD, et al. Apoptotic cell death in patients with sepsis, shock, and multiple organ dysfunction[J]. Crit Care Med, 1999, 27(7): 1230-1251. DOI:10.1097/00003246-199907000-00002 |
| [11] | Li L, Huang HX, Wang HX, et al. DGKα and ζ deficiency causes regulatory T-cell dysregulation, destabilization, and conversion to pathogenic T-follicular helper cells to trigger IgG1-predominant autoimmunity[J]. bioRxiv, 2025: 2024. DOI:10.1101/2024.11.26.625360 |
| [12] | Venet F, Pachot A, Debard AL, et al. Human CD4+CD25+ regulatory T lymphocytes inhibit lipopolysaccharide-induced monocyte survival through a Fas/Fas ligand-dependent mechanism[J]. J Immunol, 2006, 177(9): 6540-6547. DOI:10.4049/jimmunol.177.9.6540 |
| [13] | He RR, Yue GL, Dong ML, et al. Sepsis biomarkers: advancements and clinical applications-a narrative review[J]. Int J Mol Sci, 2024, 25(16): 9010. DOI:10.3390/ijms25169010 |
| [14] | Zhang ZH, Chen L, Liu HH, et al. Gene signature for the prediction of the trajectories of sepsis-induced acute kidney injury[J]. Crit Care, 2022, 26(1): 398. DOI:10.1186/s13054-022-04234-3 |
| [15] | Qiu XR, Li J, Bonenfant J, et al. Dynamic changes in human single-cell transcriptional signatures during fatal sepsis[J]. J Leukoc Biol, 2021, 110(6): 1253-1268. DOI:10.1002/jlb.5ma0721-825r |
| [16] | Danahy DB, Strother RK, Badovinac VP, et al. Clinical and experimental sepsis impairs CD8 T-cell-mediated immunity[J]. Crit Rev Immunol, 2016, 36(1): 57-74. DOI:10.1615/CritRevImmunol.2016017098 |
| [17] | Sun P, Cui MT, Jing JJ, et al. Deciphering the molecular and cellular atlas of immune cells in septic patients with different bacterial infections[J]. J Transl Med, 2023, 21(1): 777. DOI:10.1186/s12967-023-04631-4 |
| [18] | Di C, Du YY, Zhang R, et al. Identification of autophagy-related genes and immune cell infiltration characteristics in sepsis via bioinformatic analysis[J]. J Thorac Dis, 2023, 15(4): 1770-1784. DOI:10.21037/jtd-23-312 |
| [19] | Pinheiro da Silva F, Aloulou M, Skurnik D, et al. CD16 promotes Escherichia coli sepsis through an FcR gamma inhibitory pathway that prevents phagocytosis and facilitates inflammation[J]. Nat Med, 2007, 13(11): 1368-1374. DOI:10.1038/nm1665 |
| [20] | Wei ZM, Wang Z, Wan XJ, et al. FcRγ deficiency improves survival in experimental sepsis by down-regulating TLR4 signaling pathway[J]. Immunol Res, 2019, 67(1): 77-83. DOI:10.1007/s12026-018-9039-y |
| [21] | Wang XS, Guo Z, Wang ZY, et al. Diagnostic and predictive values of pyroptosis-related genes in sepsis[J]. Front Immunol, 2023, 14: 1105399. DOI:10.3389/fimmu.2023.1105399 |
| [22] | Ogawa K, Tanaka K, Ishii A, et al. A novel serum protein that is selectively produced by cytotoxic lymphocytes[J]. J Immunol, 2001, 166(10): 6404-6412. DOI:10.4049/jimmunol.166.10.6404 |
| [23] | Chen SL, Cai GX, Ding HG, et al. JAK/STAT signaling pathway-mediated microRNA-181b promoted blood-brain barrier impairment by targeting sphingosine-1-phosphate receptor 1 in septic rats[J]. Ann Transl Med, 2020, 8(21): 1458. DOI:10.21037/atm-20-7024 |
| [24] | Landelle C, Lepape A, Voirin N, et al. Low monocyte human leukocyte antigen-DR is independently associated with nosocomial infections after septic shock[J]. Intensive Care Med, 2010, 36(11): 1859-1866. DOI:10.1007/s00134-010-1962-x |
| [25] | Pétrilli V, Dostert C, Muruve DA, et al. The inflammasome: a danger sensing complex triggering innate immunity[J]. Curr Opin Immunol, 2007, 19(6): 615-622. DOI:10.1016/j.coi.2007.09.002 |
| [26] | Karimi A, Ghodsi R, Kooshki F, et al. Therapeutic effects of curcumin on sepsis and mechanisms of action: a systematic review of preclinical studies[J]. Phytother Res, 2019, 33(11): 2798-2820. DOI:10.1002/ptr.6467 |
| [27] | Chang CW, Chen WY, Chen PY, et al. Antipsychotic medications and severe sepsis in schizophrenia: a nested case-control study[J]. Aust N Z J Psychiatry, 2024, 58(10): 892-903. DOI:10.1177/00048674241258028 |
| [28] | El-Naggar AE, Helmy MM, El-Gowilly SM, et al. The cholinergic amelioration of sepsis-induced baroreflex dysfunction and brainstem inflammation is negated by central adenosine A3 receptors[J]. Pharmaceuticals (Basel), 2025, 18(3): 388. DOI:10.3390/ph18030388 |
| [29] | Gong QY, Sharma M, Glass MC, et al. Multi-omic profiling reveals age-related immune dynamics in healthy adults[J]. Nature, 2025, 648(8094): 696-706. DOI:10.1038/s41586-025-09686-5 |