 2026, Vol. 35


引用本文 |


2. 丰县人民医院重症医学科, 徐州 221700;
3. 徐州医科大学第一临床医学院急诊医学实验室, 徐州 221000;
4. 徐州医科大学第一临床医学院, 徐州 221000
2. Department of Critical Care Medicine, Fengxian People's Hospital, Xuzhou 221700, China;
3. Laboratory of Emergency Medicine, The First Clinical Medical College, Xuzhou Medical University, Xuzhou 221000, China;
4. The First Clinical Medical College, Xuzhou Medical University, Xuzhou 221000, China
急性肺损伤(acute lung injury, ALI)及急性呼吸窘迫综合征(acute respiratory distress syndrome, ARDS)以弥漫性肺泡-毛细血管屏障破坏、顽固性低氧血症和双侧肺浸润为核心病理特征,病死率高达30%~40%,是危重症医学领域亟待攻克的重大临床难题[1-2]。ALI的病因高度异质,不同病因导致的ALI在发病机制、免疫特征及临床预后上存在显著差异,这是ALI临床表型异质性的根本来源,也是以往常规治疗策略屡遭失败的核心原因[3]。2023年发布的ARDS新全球定义进一步将接受经鼻高流量氧疗(流速≥30 L/min)的非插管患者纳入诊断范畴,允许在缺乏动脉血气时以脉搏血氧饱和度与吸入氧浓度比值[SpO2/FiO2 < 315 mmHg(1 mmHg=0.133 kPa),且SpO2≤97%]识别低氧血症,并接受肺部超声作为影像学判定手段[4],这为进一步区分ALI异质性提供了新的指南。
有机磷类化合物(organophosphate, OP)中毒是全球最常见的急性中毒类型之一,每年发生300余万例,死亡约25万人,在我国农村地区尤为突出[5-6]。有机磷中毒相关ALI(organophosphate poisoning-associated ALI, PALI)与其他病因ALI在临床表现上高度重叠,因其鉴别诊断困难,导致靶向治疗匮乏、高病死率[7]。毒物暴露亦可直接导致ARDS合并肺泡出血等严重呼吸系统并发症[8]。既往研究表明,农药中毒患者早期危险因素的识别对预后判断具有重要价值[9]。
外周血单个核细胞(peripheral blood mononuclear cells, PBMCs)涵盖T细胞、B细胞、单核细胞、自然杀伤细胞等主要免疫亚群,是发现疾病特异性生物标志物的理想来源[10-11]。串联质量标签(tandem mass tag, TMT)定量蛋白质组学已成为阐明ALI/ARDS分子机制的重要利器[12-14]。然而,目前尚无研究系统比较PALI与其他病因ALI患者PBMCs在蛋白质组层面的差异,PALI特有的免疫分子特征至今仍未阐明。基于此,本研究以TMT10标记联合液相色谱-串联质谱(liquid chromatography-tandem mass spectrometry, LC-MS/MS)技术对PALI患者、其他病因ALI患者及健康对照者(healthy control, HC)的PBMCs进行蛋白质组学分析,系统揭示PALI区别于其他病因ALI的特征性蛋白质组差异,为探索针对PALI干预靶点提供理论基础。
1 资料与方法 1.1 研究对象与分组本研究为前瞻性队列研究,连续纳入2024年1月至2025年6月徐州医科大学附属医院急诊医学科收治的ALI患者,并于同期纳入本院健康体检者作为对照。
纳入标准:(1)年龄18~70岁;(2)发病至入组时间≤24 h;(3)临床与实验室资料完整,PBMCs样本质量合格(蛋白浓度≥1 mg/mL且降解评分≤2);(4)患者本人或家属签署知情同意书。
排除标准:(1)合并其他部位活动性感染或自身免疫病;(2)妊娠或哺乳;(3)近3个月接受免疫抑制治疗;(4)既往明确的慢性呼吸或心血管疾病;(5)样本质量不合格(蛋白浓度 < 1 mg/mL或降解评分 > 2分)。
分组标准如下:(1)PALI组:具有明确的有机磷农药接触史,血清AChE活性≤正常参考值下限的50%,且符合下述ALI诊断标准;(2)ALI组:符合同一ALI诊断标准,但经病史采集、毒物筛查与实验室检查明确排除有机磷及其他毒物中毒;(3)HC组:无急慢性疾病史的健康体检者。
ALI的诊断依据2012年ARDS柏林定义[3],即在明确诱因后1周内急性起病,胸部影像学示双肺浸润影且不能完全由心力衰竭或容量负荷过多解释,在呼气末正压或持续气道正压≥5 cmH2O(1 cmH2O=0.098 kPa)条件下氧合指数(PaO2/FiO2)≤300 mmHg。本研究在数据分析阶段依据2023年ARDS新全球定义[4]及2023年欧洲重症医学会ARDS指南[15],对全部患者进行了回顾性再判定:对接受经鼻高流量氧疗(流速≥30 L/min)而未行气管插管者,以SpO2/FiO2 < 315(SpO2≤97%)作为低氧血症的替代判定指标;影像学证据接受胸部X线片、CT或肺部超声。据此按氧合指数将患者分为轻度(200 mmHg < PaO2/FiO2≤300 mmHg)、中度(100 mmHg < PaO2/FiO2≤200 mmHg)与重度(PaO2/FiO2≤100 mmHg)三个层次。再判定后,全部患者均满足新全球定义的ARDS诊断标准,无病例因诊断标准变更而被剔除或改组,亦未改变原有的PALI组与ALI组归属。
本研究经徐州医科大学附属医院伦理委员会批准(批准号:XYFY2024-KL483-01),全部受试者本人或其法定代理人均于入组前签署书面知情同意书,研究实施过程遵循《赫尔辛基宣言》的各项原则。
1.2 血标本采集PALI组与ALI组患者于确诊并入组后即刻采集外周静脉血,采集时点均在发病后48 h内,且统一于首剂特异性治疗(PALI组为阿托品联合肟类胆碱酯酶复能剂,ALI组为针对原发病的病因治疗)开始后0.5~1 h内完成。HC组于健康体检当日06:30-08:00晨起空腹状态下采集。三组均采集外周静脉血10 mL,置于乙二胺四乙酸(ethylene diamine tetraacetic acid, EDTA)抗凝管中,4 ℃保存并于1 h内完成PBMCs分离,以最大限度降低离体时间对蛋白质组的影响。
1.3 PBMC分离与蛋白质提取采集各组受试者外周静脉血10 mL(EDTA抗凝管),置于4℃保存,1 h内完成处理。采用Ficoll-Paque密度梯度离心法(Cytiva公司,美国)分离PBMCs,离心条件为400 g,30 min,室温;经PBS洗涤3次后以台盼蓝排斥法鉴定细胞活力(> 95%)。裂解液(8 mol/L尿素、2 mmol/L EDTA、10 mmol/L DTT)冰上超声裂解,13 000 g离心20 min,取上清液经BCA蛋白定量试剂盒(Thermo Fisher Scientific公司,美国)定量测定蛋白浓度,每样本提取蛋白100 μg用于后续分析。
1.4 TMT标记与LC-MS/MS分析蛋白质依次经二硫苏糖醇还原(10 mmol/L,56℃,30 min)和碘乙酰胺(IAA,50 mmol/L,室温避光,30 min)烷基化,加入测序列级胰蛋白酶(Promega公司,美国)按蛋白与酶质量比50∶1,37℃情况下酶切16 h,C18固相萃取脱盐,TMT10plex TM标记(Thermo Scientific,美国)在三乙基碳酸氢铵缓冲液(pH 8.0)中室温标记2 h,羟胺终止后三组样本等量混合。混合样品经高pH反相色谱分为12个馏分。各馏分溶于0.1%甲酸水溶液,采用EASY-nLC 1200纳升液相色谱系统联合Orbitrap Fusion Lumos质谱仪(Thermo Fisher Scientific公司,美国)进行分析。液相分离采用100 min线性梯度,流速300 nL/min;一级质谱分辨率60 000,自动增益控制目标值4×10⁵;以同步前体选择三级质谱(SPS-MS3)模式采集TMT报告离子信号,三级质谱分辨率50 000。三组样本在同一批次TMT实验中完成检测,以消除批次效应对组间比较的干扰。
1.5 数据库检索与蛋白质定量原始质谱数据经Proteome Discoverer 2.4软件(Thermo Fisher Scientific公司,美国)处理,搜索UniProt人类数据库(2023年2月,2, 0319条目),Mascot引擎参数:母离子10 ppm,碎片离子10 mmu;固定修饰:Cys烷基化(+57.021 Da)及N端/Lys TMT标记(+229.163 Da);可变修饰:Met氧化(+15.995 Da);蛋白质及肽段水平FDR均 < 1%。TMT定量基于MS3报告离子强度中位数,内标池归一化。三组间多重比较后,以PALI组与ALI组的FC≥1.2(或≤1/1.2)且Benjamini-Hochberg校正P<0.05为DAPs筛选阈值,“上调”指PALI相对ALI蛋白丰度升高,“下调”反之。
1.6 生物信息学分析以全蛋白质组(16 671个蛋白质)进行GO三维富集分析,涵盖生物过程(biological process, BP)、细胞组分(cellular component, CC)与分子功能(molecular function, MF)三个维度,并整合人类蛋白质图谱与UniProt注释完成亚细胞定位分析。对PALI组与ALI组间筛选出的869个DAPs进行KEGG通路富集分析,采用差异丰度评分(differential abundance score, DA-Score)定量各通路的整体调控方向,其计算公式为DA-Score=(通路内上调蛋白质数-下调蛋白质数)/该通路注释蛋白质总数,取值范围为-1至+1;同时对DAPs进行亚细胞定位分析,并与全蛋白质组的定位分布进行对照。数据可视化采用R软件(4.2.2版)的ggplot2(3.4.2版)与ComplexHeatmap(2.14.0版)程序包完成。
1.7 统计学方法采用SPSS 26.0软件请核实实际使用的统计软件及版本进行统计学分析。计量资料的正态性采用Shapiro-Wilk检验,方差齐性采用Levene检验,符合正态分布的计量资料以均数±标准差(x±s)表示:PALI组与ALI组间的氧合指数、SpO2/FiO2、呼气末正压水平、急性生理学与慢性健康状况评分Ⅱ(Acute Physiology and Chronic Health Evaluation Ⅱ, APACHE Ⅱ)及序贯器官衰竭评估(Sequential Organ Failure Assessment, SOFA)评分等两组比较采用独立样本t检验;三组间的年龄、体质指数等比较采用单因素方差分析,组间两两比较采用Bonferroni法校正。不符合正态分布者以中位数(四分位数间距)[M(Q1, Q3)]表示,两组间比较采用Mann-Whitney U检验,三组间比较采用Kruskal-Wallis H检验。计数资料以例数表示;鉴于本研究各组例数属小样本,故不以百分率进行统计推断,性别构成、ARDS严重程度分层、呼吸支持方式、有创机械通气例数及28 d死亡例数等计数资料的组间比较一律采用Fisher确切概率法。所有比较均先报告具体统计量(F值、t值),再报告相应的P值,以双侧P<0.05为差异有统计学意义。
2 结果 2.1 三组研究对象基线特征比较本研究纳入患者按病因分为PALI组(12例)与ALI组(12例),同期纳入健康体检者12例为HC组。三组年龄(F=0.38,P=0.689),性别构成(Fisher确切概率法,P=1.000)差异无统计学意义,基线具备可比性。PALI组与ALI组在氧合指数(P=0.825)、APACHE Ⅱ评分(P=0.766)、有创机械通气例数(PALI组8例、ALI组7例,P=1.000)及28 d死亡例数(P=1.000)方面差异均无统计学意义,提示两组疾病严重程度基本均衡(表 1)。
| 组别 | 例数 | 氧合指数(mmHg, x±s) | ARDS严重程度(轻/中/重,例) | 呼吸支持方式(经鼻高流量氧疗/无创通气/有创通气,例) | APACHE Ⅱ评分(分,x±s) | 28 d死亡(例) |
| PALI组 | 12 | 158.4±42.3 | 1/7/4 | 1/3/8 | 19.0±7.2 | 3 |
| ALI组 | 12 | 162.1±38.7 | 2/7/3 | 2/3/7 | 19.8±5.7 | 2 |
| 统计量 | -0.22 | - | - | -0.30 | - | |
| P值 | 0.825 | 0.555 | 0.638 | 0.766 | 1.000a | |
| 注:a计数资料组间比较采用Fisher确切概率法;ARDS为急性呼吸窘迫综合征,PALI为有机磷中毒相关急性肺损伤,ALI为急性肺损伤 | ||||||
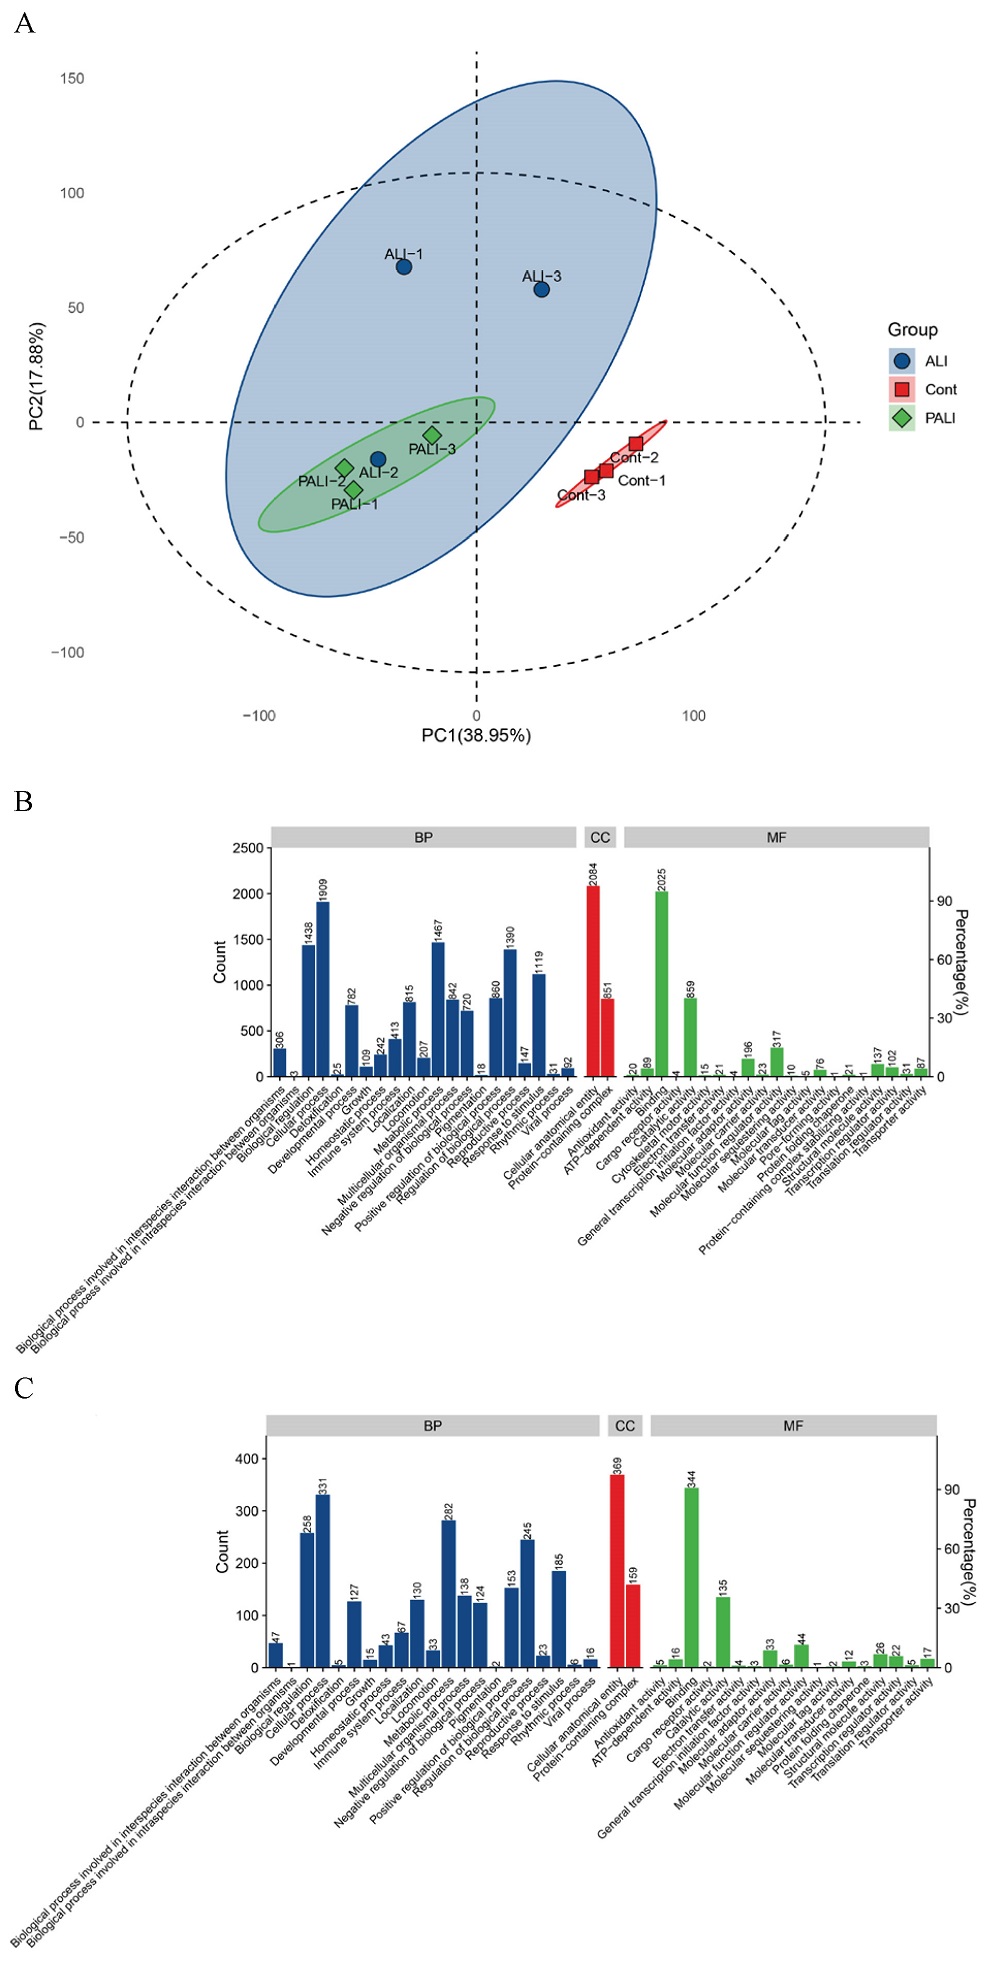
三组共36例样本经LC-MS/MS共鉴定蛋白质16 671个,肽段水平FDR < 1%,蛋白质水平FDR < 1%,质控指标符合高可信度蛋白质组数据标准。主成分分析结果显示(图 1A),HC组、ALI组与PALI组各自聚为独立簇,组间分离明显而组内离散度较小,表明三组PBMCs蛋白质组表达谱存在实质性差异。全蛋白质组GO富集柱状图(图 1B)从三个维度揭示了所鉴定蛋白质的功能覆盖全貌。在BP维度,细胞组分组织与生物发生及有机物质代谢过程条目富集蛋白质数量最多且富集百分比最高,囊泡介导的转运与胞内转运亦显著富集。在CC维度,细胞质类条目富集蛋白质数量最高。在MF维度,蛋白质结合呈主导性富集,催化活性与核苷酸结合次之。PALI与ALI两组差异丰度蛋白质(DAPs)的GO富集柱状图显示(图 1C),在BP维度,有机物质代谢过程与细胞氮化合物代谢过程为富集蛋白质数量最多的条目,表明PALI相对于ALI的蛋白质组差异集中体现在代谢重编程层面;在CC维度,细胞质与膜结构仍为主要富集区室,但胞外区蛋白占比相对全蛋白质组有所升高;在MF维度,蛋白质结合与催化活性仍居前列,提示DAPs广泛参与免疫信号传导与酶促反应调控。
|
| 注:A为三组样本PCA分析;B为全蛋白质组GO富集柱状图;C为差异丰度蛋白质GO富集柱状图 图 1 三组样本蛋白质组学PCA分析与GO富集分析 Fig 1 Principal component analysis and Gene Ontology enrichment analysis of the proteomes in the three groups |
|
|
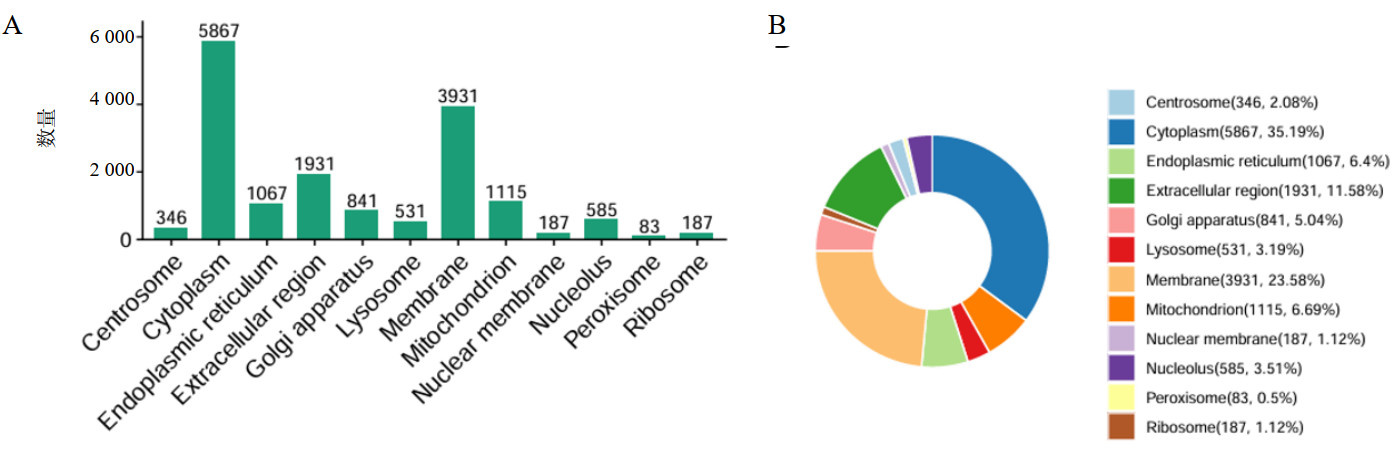
对16 671个鉴定蛋白质进行亚细胞定位。柱状图(图 2A)显示,细胞质蛋白(5 867个)占比最高(35.19%),膜蛋白(3 931个,23.58%)居第二位,胞外区蛋白(1 931个,11.58%)位列第三;线粒体蛋白、内质网蛋白、高尔基体蛋白、溶酶体蛋白等各区室蛋白质均有充分覆盖。环形图(图 2B)直观呈现各区室蛋白质的相对比例。上述分布模式符合免疫效应细胞的生理特征-高丰度的分泌途径蛋白与表面受体蛋白(膜蛋白)共同支撑PBMCs的免疫识别与效应功能。
|
| 注:A为全蛋白亚细胞定位柱状图;B为环状图 图 2 三组比较全蛋白亚细胞定位 Fig 2 Subcellular localization analysis of the global proteome |
|
|
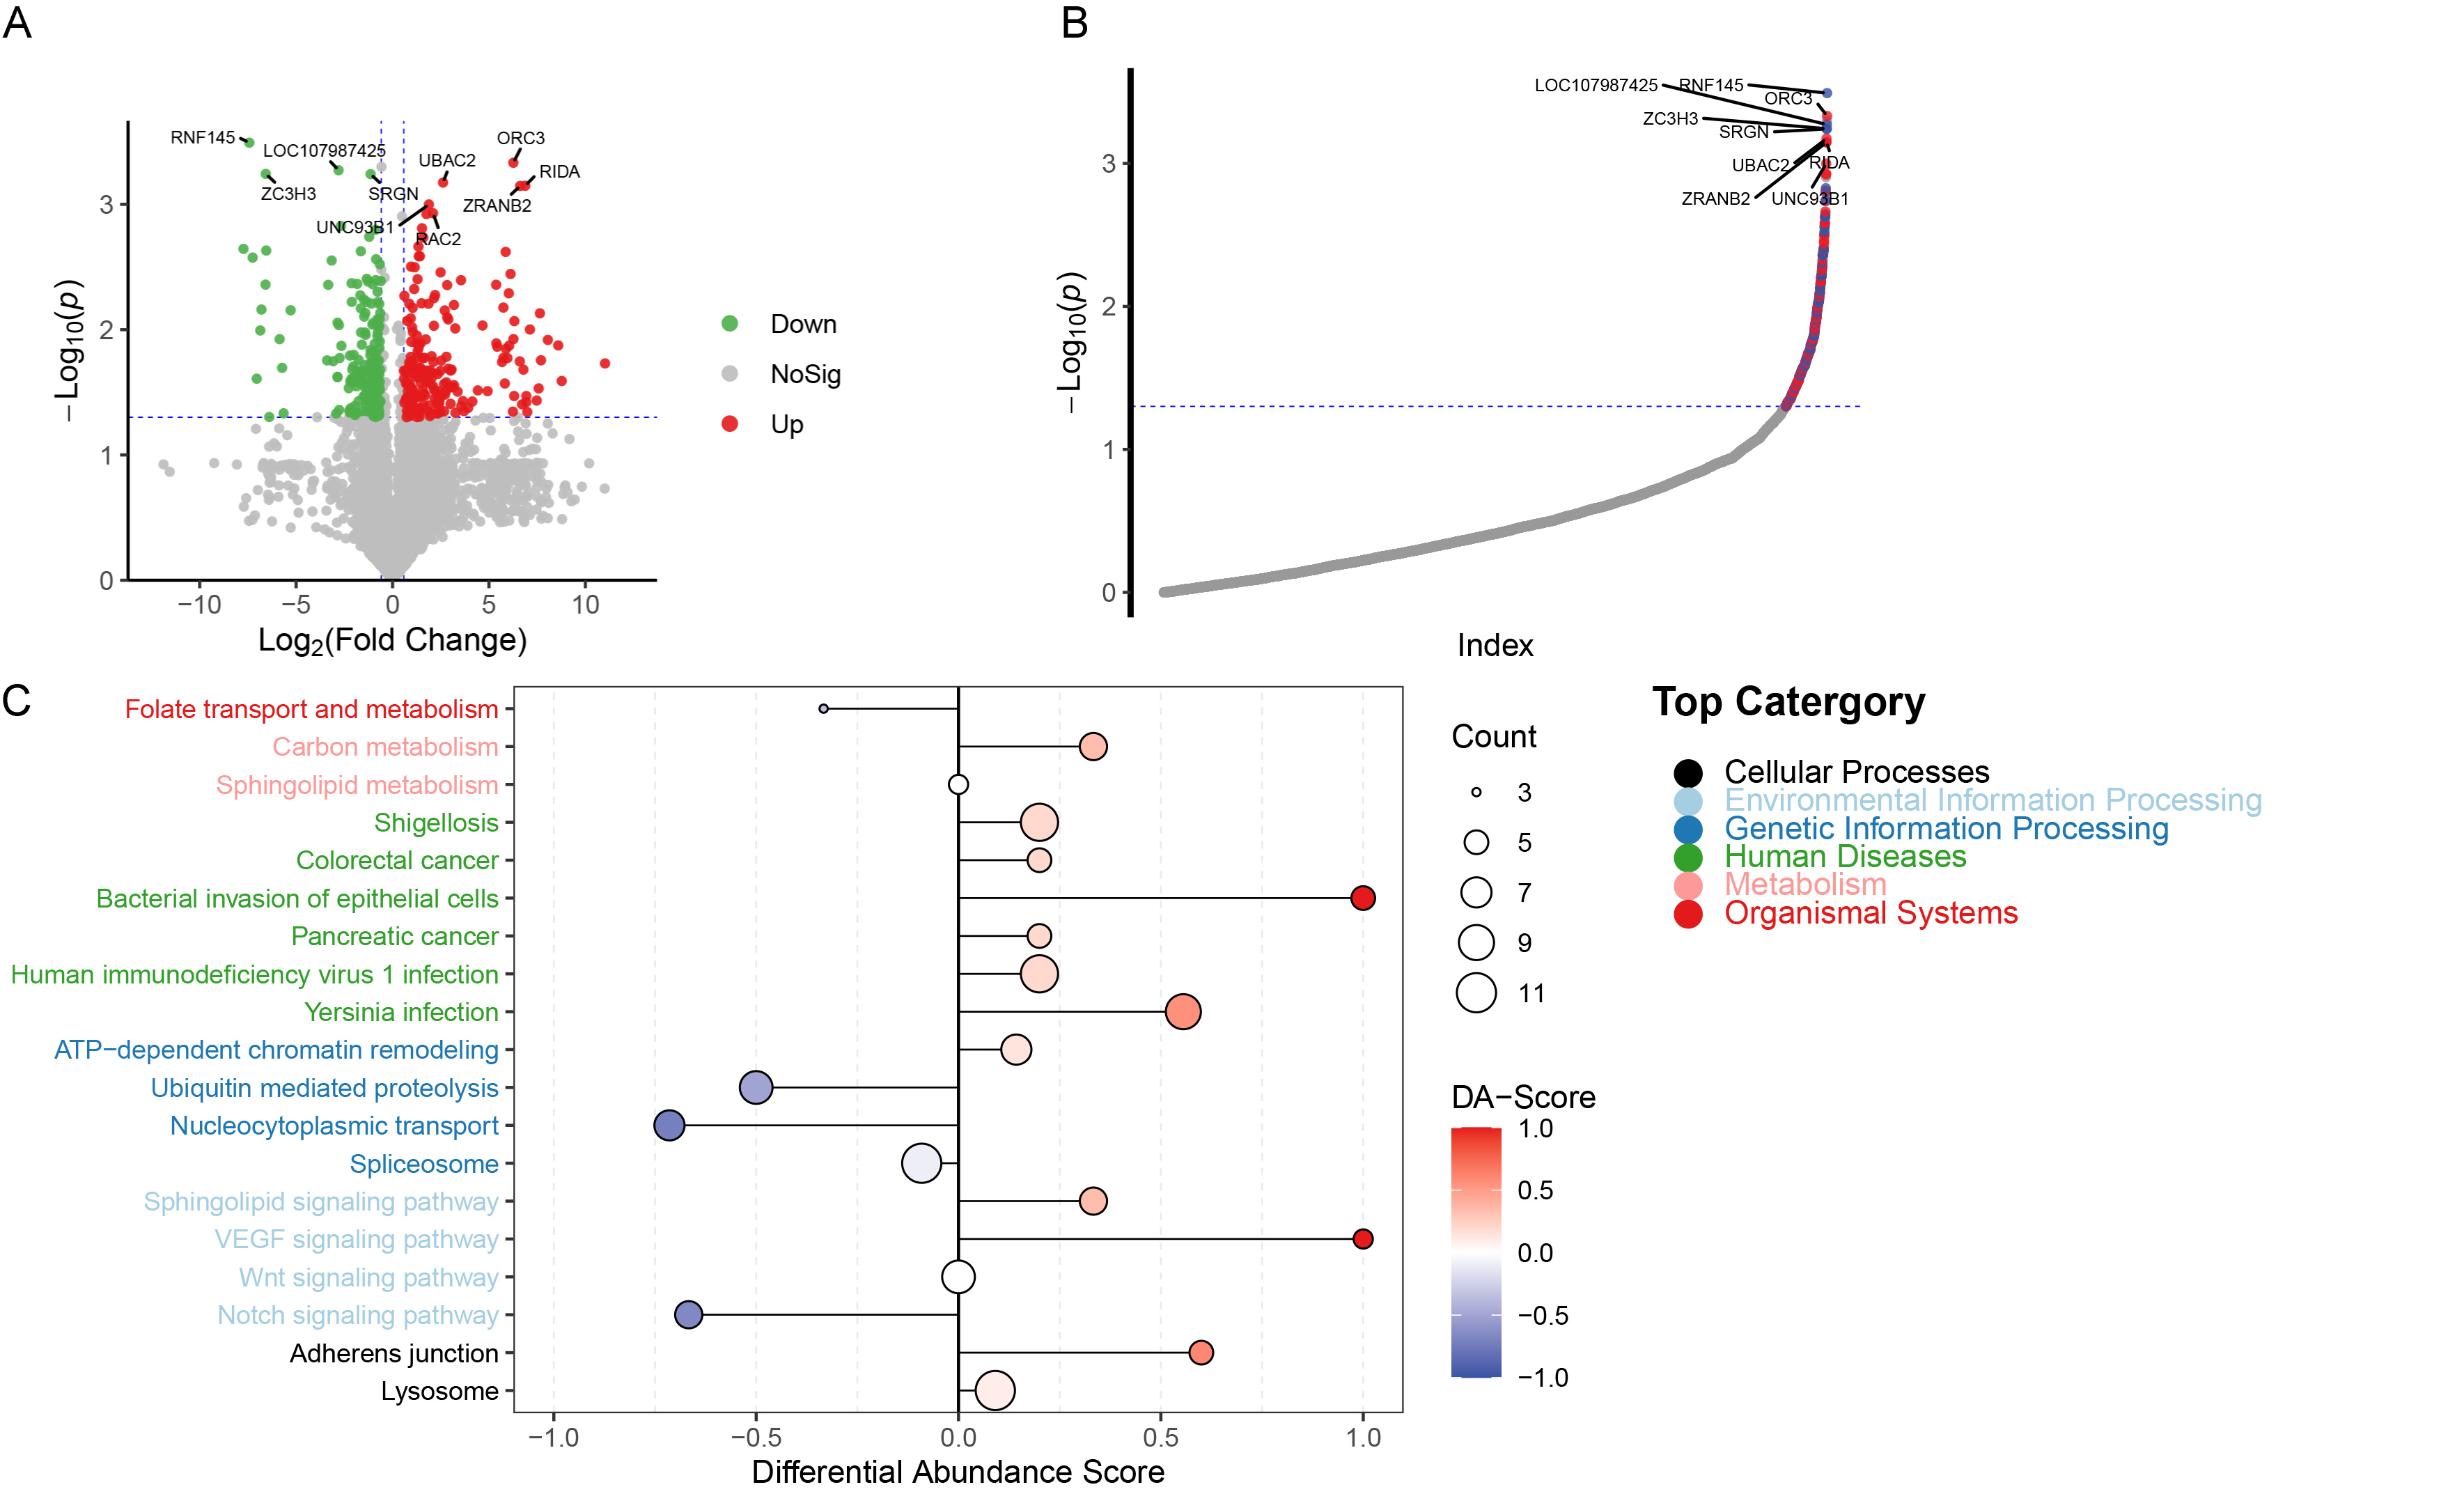
对PALI与ALI两组患者蛋白质进行的火山图分析共筛选出869个DAPs(上调521个,下调348个,P<0.05)(图 3A)。显著性排名图按-Log10P由大到小排列所有蛋白质,在PALI相对ALI显著上调的蛋白质中ORC3(参与DNA复制起始与染色质稳定)、RAC2(NADPH氧化酶NOX2的核心激活亚基)及RIDA(参与嘧啶前体去毒代谢)居最高位[16](图 3B)。在PALI组显著下调的蛋白质中,RNF145(ER相关降解途径E3泛素连接酶)、UNC93B1(TLR3/7/9内体转运调节蛋白)、SRGN(造血细胞分泌颗粒核心蛋白聚糖)、UBAC2及ZRANB2(ZRNA剪接调控蛋白)位于最显著下调区域,具有重要的免疫病理意义。
|
| 注:A为火山图;B为排名图;C为KEGG结果图 图 3 PALI与ALI两组蛋白质差异丰度 Fig 3 Analysis of differentially abundant proteins between the PALI and ALI groups |
|
|
图 3C的KEGG通路DA-Score气泡图结果显示:在PALI特异性上调通路方面:细菌侵入上皮细胞呈现最高且富集蛋白质数量最多;耶尔森菌感染通路亦显著正向激活,与细菌侵入通路共享RAC2、UBAC2等关键效应蛋白节点;碳代谢、VEGF信号通路和黏附连接通路正向激活。在PALI特异性下调通路方面:叶酸转运与代谢呈现最强,泛素介导蛋白质水解、核质转运和Notch信号通路显著下调。
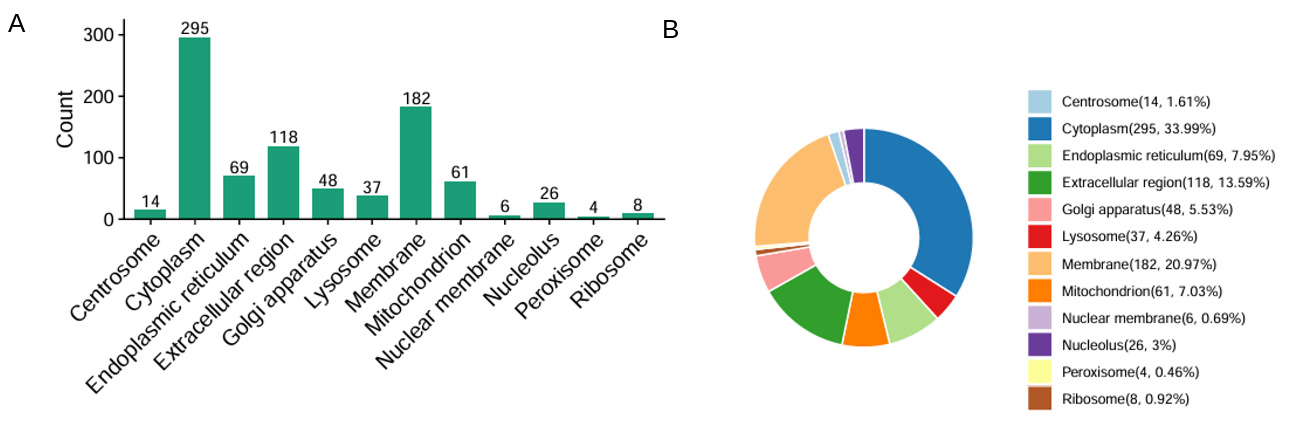
2.5 差异丰度蛋白质亚细胞定位分析对869个PALI vs. ALI DAPs进行亚细胞定位,与全蛋白质组分布对比,揭示差异蛋白的区室偏好性。柱状图(图 4A)显示,细胞质蛋白比例较全蛋白质组(33.99% vs. 35.19%)略有下降;胞外区蛋白占比明显升高,内质网蛋白比例升高,线粒体蛋白DAP占比高于全蛋白质组,溶酶体蛋白比例升高。环形图(图 4B)直观显示上述分布格局。
|
| 注:A为PALI与ALI两组全蛋白亚细胞定位柱状图;B为环状图 图 4 PALI与ALI两组全蛋白亚细胞定位 Fig 4 Subcellular localization analysis of differentially abundant proteins |
|
|
本研究采用TMT定量蛋白质组学结合多维度生物信息学分析,系统比较了PALI、其他病因ALI与HC三组PBMCs在蛋白质组层面的差异,共鉴定差异蛋白质16 671个,主成分分析中三组组间分离显著而组内离散度较小。生物过程层面,细胞组分与生物发生、有机物质代谢过程以及囊泡介导的转运占据富集明显;分子功能层面以蛋白质结合为主,催化活性与核苷酸结合;亚细胞定位中,胞外区蛋白在DAPs中的占比明显升高,内质网蛋白比例升高与泛素-蛋白酶体系统(ubiquitin-proteasome system, UPS)及内质网相关降解(endoplasmic reticulum-associated degradation, ERAD)通路下调、持续性未折叠蛋白应答激活的判断相一致[17-20],而线粒体蛋白差异占比的增加则进一步支持了有机磷对线粒体复合物Ⅰ的直接毒性效应,这一变化趋势与既往报道相符[21-22]。相比之下,细胞质蛋白比例的轻微下降表明PALI呈现向特定细胞器与分泌通路倾斜的选择性重塑模式,这一空间分布特征为后续对具体通路与关键靶点的机制解析奠定了基础。
3.1 PALI特异性固有免疫超激活,呈现类病原感染信号的异常触发KEGG DA-Score分析中,细菌侵入上皮细胞通路在PALI组呈现最强且富集蛋白数量最多的正向调控。这说明PALI患者并无细菌感染却仍启动了高度模拟细菌入侵的免疫应答程序。RAC2作为该通路的核心节点在PALI中特异性上调,可驱动产生大量超氧阴离子,进而诱导肺内皮细胞氧化应激与屏障通透性增加[16],形成PALI所特有的炎症恶性循环。此外,黏附连接通路的正向激活与VEGF信号上调共同加剧对血管内皮完整性的破坏,这一机制体系与其他病因ALI(尤其是脓毒症相关ALI)中更偏向Toll样受体4-核因子κB轴及PI3K/AKT通路驱动的炎症应答具有本质差异[23-24],这为PALI的精准诊断提供了潜在的免疫分子标志。
3.2 PALI特异性代谢重塑,表现为叶酸代谢崩溃与碳代谢代偿的并存叶酸转运与代谢通路在PALI中下调最为显著,这是本研究的另一项重要发现。叶酸代谢障碍削弱了淋巴细胞及单核细胞的增殖能力,导致免疫应答强度随时间推移而减弱,这与临床观察到的PALI患者在早期过度炎症反应后迅速出现免疫耗竭的现象高度吻合[25]。但在ALI组未见叶酸通路发生同等程度的变化,这提示叶酸代谢相关酶(如FOLR1、MTHFR)可作为PALI鉴别诊断的候选生物标志物。而碳代谢通路在PALI中呈正向调控,表明细胞在叶酸通路受损时可能启动了替代性碳代谢补偿机制。显著性排名图中RIDA的特异性上调进一步支持了嘧啶前体去毒代谢应激负荷增加的判断,提示PALI细胞在核苷酸合成受限的同时亦面临代谢副产物清除的压力。目前已有研究表明血清蛋白标志物可有效预测脓毒症相关ARDS患者的预后[26],这为PALI特异性分子分型提供了参照方法。
3.3 PALI特异性蛋白质稳态紊乱,集中体现为UPS-ERAD轴的双重失守泛素介导的蛋白质水解通路在PALI中显著负向调控,提示UPS功能障碍可能是PALI的一项特征性分子病理改变。RNF145作为ERAD途径中的E3泛素连接酶,其特异性下调意味着PALI中错误折叠蛋白质在内质网的清除能力严重受损;UBAC2作为泛素受体蛋白,下调进一步削弱了底物蛋白向蛋白酶体的转运效率[19]。这种双重功能缺陷将持续激活未折叠蛋白质应答,并向CHOP依赖的细胞凋亡通路转换,加重单核细胞与淋巴细胞功能障碍。值得关注的是,DAPs亚细胞定位中线粒体蛋白的相对富集与上述现象相互印证:有机磷化合物对线粒体复合物Ⅰ的抑制效应可导致线粒体功能障碍与线粒体DNA损伤,进而触发“线粒体应激—UPS超载—蛋白质稳态崩溃”的级联效应,而线粒体自噬功能的完整性对肺上皮代谢适应与损伤修复具有决定性影响[27],这构成了PALI区别于其他病因ALI的独特分子特征。
3.4 PALI特异性修复抑制,呈现多通路协同压制下的修复受损Notch通路是ALI后肺泡上皮修复的核心调控轴,其下调将导致肺泡上皮修复延迟并促进纤维化进展[28-29],这可能是PALI患者较其他病因ALI更易进展为持续性ARDS乃至肺纤维化的分子基础[30-31]。Wnt信号通路与Notch抑制相协同,进一步削弱了肺干细胞的自我更新能力[32]。UNC93B1的PALI特异性下调揭示了有机磷中毒对固有免疫的另一层影响:该蛋白作为内质网驻留蛋白,负责核酸识别型Toll样受体(TLR3/7/9)从内质网向内体的转运,对抗病毒与抗细菌核酸模式的固有免疫信号触发不可或缺[33],其下调提示PALI患者内体TLR通路选择性受损,可能是PALI患者继发肺部病毒性及细菌性感染风险增加的重要机制之一。
3.5 本研究的局限性本研究存在以下局限性。其一,样本量偏小,三组各12例,在ALI本身异质性较大的背景下组内均质性受限,可能削弱PALI特异性信号的稳健性,后续需在多中心、更大样本并按病因分层的验证队列中加以确认;其二,本研究仅纳入发病48 h内的患者,未关注PALI不同时间点的蛋白质组演变规律,尤其是免疫超激活向免疫耗竭过渡的时间动力学。其三,本研究主要以临床患者PBMCs为主要研究对象,并未对研究结果进行相应的动物实验验证,后续将以临床结果为依据开展动物研究。
综上,本研究通过TMT定量蛋白质组学与多维度生物信息学分析,系统描绘了PALI患者PBMCs区别于其他病因ALI的特征性蛋白质组重塑图谱,其核心特征表现为RAC2-NADPH氧化酶轴驱动的固有免疫超激活、叶酸代谢的特异性下降、UPS-ERAD双重蛋白质稳态障碍以及Notch/Wnt修复轴的协同压制,共同构成“损伤激活—代谢与稳态崩溃—修复受阻”的病理模式。这些发现深化了对PALI发病机制的分子层面理解,也为临床建立PALI与其他病因ALI的精准鉴别诊断及探索针对性干预靶点提供了科学依据。
利益冲突 所有作者声明无利益冲突
作者贡献声明 庄慧捷:设计实验、实施研究、采集数据、样本处理与实验操作、分析/解释数据、起草文章;徐国轩:实施研究、临床资料采集与整理、统计分析;江咏欣:采集数据、生物信息学分析、图表制作;庄伟:技术支持、蛋白质组学数据解释;苏成磊:病例筛选与临床评估;燕宪亮:获取研究经费、行政与材料支持、指导;许铁:设计实验、研究指导、论文修改与最终定稿
| [1] | Bos LDJ, Ware LB. Acute respiratory distress syndrome: causes, pathophysiology, and phenotypes[J]. Lancet, 2022, 400(10358): 1145-1156. DOI:10.1016/S0140-6736(22)01485-4 |
| [2] | Wick KD, Ware LB, Matthay MA. Acute respiratory distress syndrome[J]. BMJ, 2024, 387: e076612. DOI:10.1136/bmj-2023-076612 |
| [3] | ARDS Definition Task Force, Ranieri VM, Rubenfeld GD, et al. Acute respiratory distress syndrome: the Berlin Definition[J]. JAMA, 2012, 307(23): 2526-2533. DOI:10.1001/jama.2012.5669 |
| [4] | Matthay MA, Arabi Y, Arroliga AC, et al. A new global definition of acute respiratory distress syndrome[J]. Am J Respir Crit Care Med, 2024, 209(1): 37-47. DOI:10.1164/rccm.202303-0558WS |
| [5] | Ma W, Tang SL, Yao P, et al. Advances in acute respiratory distress syndrome: focusing on heterogeneity, pathophysiology, and therapeutic strategies[J]. Sig Transduct Target Ther, 2025, 10(1): 75. DOI:10.1038/s41392-025-02127-9 |
| [6] | Ramadori GP. Organophosphorus poisoning: acute respiratory distress syndrome (ARDS) and cardiac failure as cause of death in hospitalized patients[J]. Int J Mol Sci, 2023, 24(7): 6658. DOI:10.3390/ijms24076658 |
| [7] | Zoofaghari S, Maghami-Mehr A, Abdolrazaghnejad A. Organophosphate poisoning: review of prognosis and management[J]. Adv Biomed Res, 2024, 13(1): 82. DOI:10.4103/abr.abr_393_22 |
| [8] | Deniz İlgün J, Çövüt Y, Tuna C, et al. Acute phencyclidine inhalation injury in the emergency department: a rare cause of acute respiratory distress syndrome and alveolar haemorrhage[J]. World J Emerg Med, 2025, 16(3): 292-294. DOI:10.5847/wjem.j.1920-8642.2025.059 |
| [9] | 张晓凡, 谷玉雷, 朱志强, 等. 敌草快中毒早期危险因素筛选及对预后的预测[J]. 中华急诊医学杂志, 2024, 33(3): 286-290. DOI:10.3760/cma.j.issn.1671-0282.2024.03.004 |
| [10] | Alexovič M, Uličná C, Sabo J, et al. Human peripheral blood mononuclear cells as a valuable source of disease-related biomarkers: Evidence from comparative proteomics studies[J]. Proteomics Clin Appl, 2024, 18(2): e2300072. DOI:10.1002/prca.202300072 |
| [11] | Figueirêdo Leite GG, Colo Brunialti MK, Peçanha-Pietrobom PM, et al. Understanding COVID-19 progression with longitudinal peripheral blood mononuclear cell proteomics: Changes in the cellular proteome over time[J]. iScience, 2023, 26(10): 107824. DOI:10.1016/j.isci.2023.107824 |
| [12] | Lin MN, Xu FX, Sun J, et al. Integrative multi-omics analysis unravels the host response landscape and reveals a serum protein panel for early prognosis prediction for ARDS[J]. Crit Care, 2024, 28(1): 213. DOI:10.1186/s13054-024-05000-3 |
| [13] | Hartman E, Scott AM, Karlsson C, et al. Interpreting biologically informed neural networks for enhanced proteomic biomarker discovery and pathway analysis[J]. Nat Commun, 2023, 14(1): 5359. DOI:10.1038/s41467-023-41146-4 |
| [14] | 郑武洪, 朱凌云, 肖鹏, 等. 基于非靶向代谢组学探索参苏饮对急性肺损伤的作用和机制[J]. 中华急诊医学杂志, 2025, 34(4): 567-575. DOI:10.3760/cma.j.issn.1671-0282.2025.04.017 |
| [15] | Grasselli G, Calfee CS, Camporota L, et al. ESICM guidelines on acute respiratory distress syndrome: definition, phenotyping and respiratory support strategies[J]. Intensive Care Med, 2023, 49(7): 727-759. DOI:10.1007/s00134-023-07050-7 |
| [16] | Huang QR, Le Y, Li SS, et al. Signaling pathways and potential therapeutic targets in acute respiratory distress syndrome (ARDS)[J]. Respir Res, 2024, 25(1): 30. DOI:10.1186/s12931-024-02678-5 |
| [17] | Beitler JR, Thompson BT, Baron RM, et al. Advancing precision medicine for acute respiratory distress syndrome[J]. Lancet Respir Med, 2022, 10(1): 107-120. DOI:10.1016/S2213-2600(21)00157-0 |
| [18] | Sinha P, Calfee CS, Cherian S, et al. Prevalence of phenotypes of acute respiratory distress syndrome in critically ill patients with COVID-19: a prospective observational study[J]. Lancet Respir Med, 2020, 8(12): 1209-1218. DOI:10.1016/S2213-2600(20)30366-0 |
| [19] | Gong R, Luo H, Long GY, et al. Integrative proteomic profiling of lung tissues and blood in acute respiratory distress syndrome[J]. Front Immunol, 2023, 14: 1158951. DOI:10.3389/fimmu.2023.1158951 |
| [20] | Magnani ND, Dada LA, Sznajder JI. Ubiquitin-proteasome signaling in lung injury[J]. Transl Res, 2018, 198: 29-39. DOI:10.1016/j.trsl.2018.04.003 |
| [21] | Tang XJ, Zhong LC, Tian X, et al. RUNX1 promotes mitophagy and alleviates pulmonary inflammation during acute lung injury[J]. Sig Transduct Target Ther, 2023, 8(1): 288. DOI:10.1038/s41392-023-01520-6 |
| [22] | Eddleston M, Buckley NA, Eyer P, et al. Management of acute organophosphorus pesticide poisoning[J]. Lancet, 2008, 371(9612): 597-607. DOI:10.1016/S0140-6736(07)61202-1 |
| [23] | Duijvelaar E, Gisby J, Peters JE, et al. Longitudinal plasma proteomics reveals biomarkers of alveolar-capillary barrier disruption in critically ill COVID-19 patients[J]. Nat Commun, 2024, 15(1): 744. DOI:10.1038/s41467-024-44986-w |
| [24] | 黄鹏, 刘春鹤, 郑丽丽, 等. 1型胰岛素样生长因子通过下调PI3K/AKT通路改善脓毒症小鼠急性肺损伤[J]. 中华急诊医学杂志, 2025, 34(1): 33-39. DOI:10.3760/cma.j.issn.1671-0282.2025.01.006 |
| [25] | 孙才智, 谢永鹏, 朱晨晨, 等. 血清骨髓相关蛋白8/14在脓毒症急性呼吸窘迫综合征患者预后中的预测价值[J]. 中华急诊医学杂志, 2025, 34(1): 78-83. DOI:10.3760/cma.j.issn.1671-0282.2025.01.012 |
| [26] | Camacho-Pérez MR, Covantes-Rosales CE, Toledo-Ibarra GA, et al. Organophosphorus pesticides as modulating substances of inflammation through the cholinergic pathway[J]. Int J Mol Sci, 2022, 23(9): 4523. DOI:10.3390/ijms23094523 |
| [27] | Wu P, Chen JW, Liu L, et al. Mitophagy promotes lung repair and regeneration by restoring epithelial metabolic fitness[J]. Nat Commun, 2026, 17(1): 5170. DOI:10.1038/s41467-026-71728-x |
| [28] | Finn J, Sottoriva K, Pajcini KV, et al. Dlk1-mediated temporal regulation of Notch signaling is required for differentiation of alveolar type Ⅱ to type Ⅰ cells during repair[J]. Cell Rep, 2019, 26(11): 2942-2954.e5. DOI:10.1016/j.celrep.2019.02.046 |
| [29] | Ng B, Huang KY, Pua CJ, et al. Interleukin-11 causes alveolar type 2 cell dysfunction and prevents alveolar regeneration[J]. Nat Commun, 2024, 15(1): 8530. DOI:10.1038/s41467-024-52810-8 |
| [30] | Kim B, Huang YJ, Ko KP, et al. PCLAF-DREAM drives alveolar cell plasticity for lung regeneration[J]. Nat Commun, 2024, 15(1): 9169. DOI:10.1038/s41467-024-53330-1 |
| [31] | Wang YX, Wang L, Ma SC, et al. Repair and regeneration of the alveolar epithelium in lung injury[J]. FASEB J, 2024, 38(8): e23612. DOI:10.1096/fj.202400088r |
| [32] | Aros CJ, Pantoja CJ, Gomperts BN. Wnt signaling in lung development, regeneration, and disease progression[J]. Commun Biol, 2021, 4(1): 601. DOI:10.1038/s42003-021-02118-w |
| [33] | Kim YM, Brinkmann MM, Paquet ME, et al. UNC93B1 delivers nucleotide-sensing toll-like receptors to endolysosomes[J]. Nature, 2008, 452(7184): 234-238. DOI:10.1038/nature06726 |