 2026, Vol. 35


引用本文 |


2. 浙江大学医学院附属第二医院急诊医学科,杭州 310009
急性肺损伤(acute lung injury, ALI)及其重症形式急性呼吸窘迫综合征(acute respiratory distress syndrome, ARDS)是以肺部炎症驱动的急性低氧性呼吸衰竭综合征[1]。其主要病理基础为弥漫性肺泡上皮细胞和肺毛细血管内皮细胞损伤,进而引起肺血管通透性增加、肺水肿、肺泡塌陷及肺顺应性下降[2-3]。肺内诱因包括肺炎、误吸、肺挫伤和吸入性损伤等;肺外诱因则主要包括脓毒症、严重创伤、失血性休克和急性胰腺炎等[4]。ARDS约占重症监护室患者的10%,在接受气管插管的患者中比例可达23%[5]。尽管机械通气、俯卧位通气和体外膜肺氧合等支持治疗不断进步,ARDS病死率仍高达30%~40%[6]。这一严峻现状表明,ARDS的关键发病机制仍未完全阐明,尤其是驱动肺内过度炎症和组织损伤的分子通路亟待深入解析。
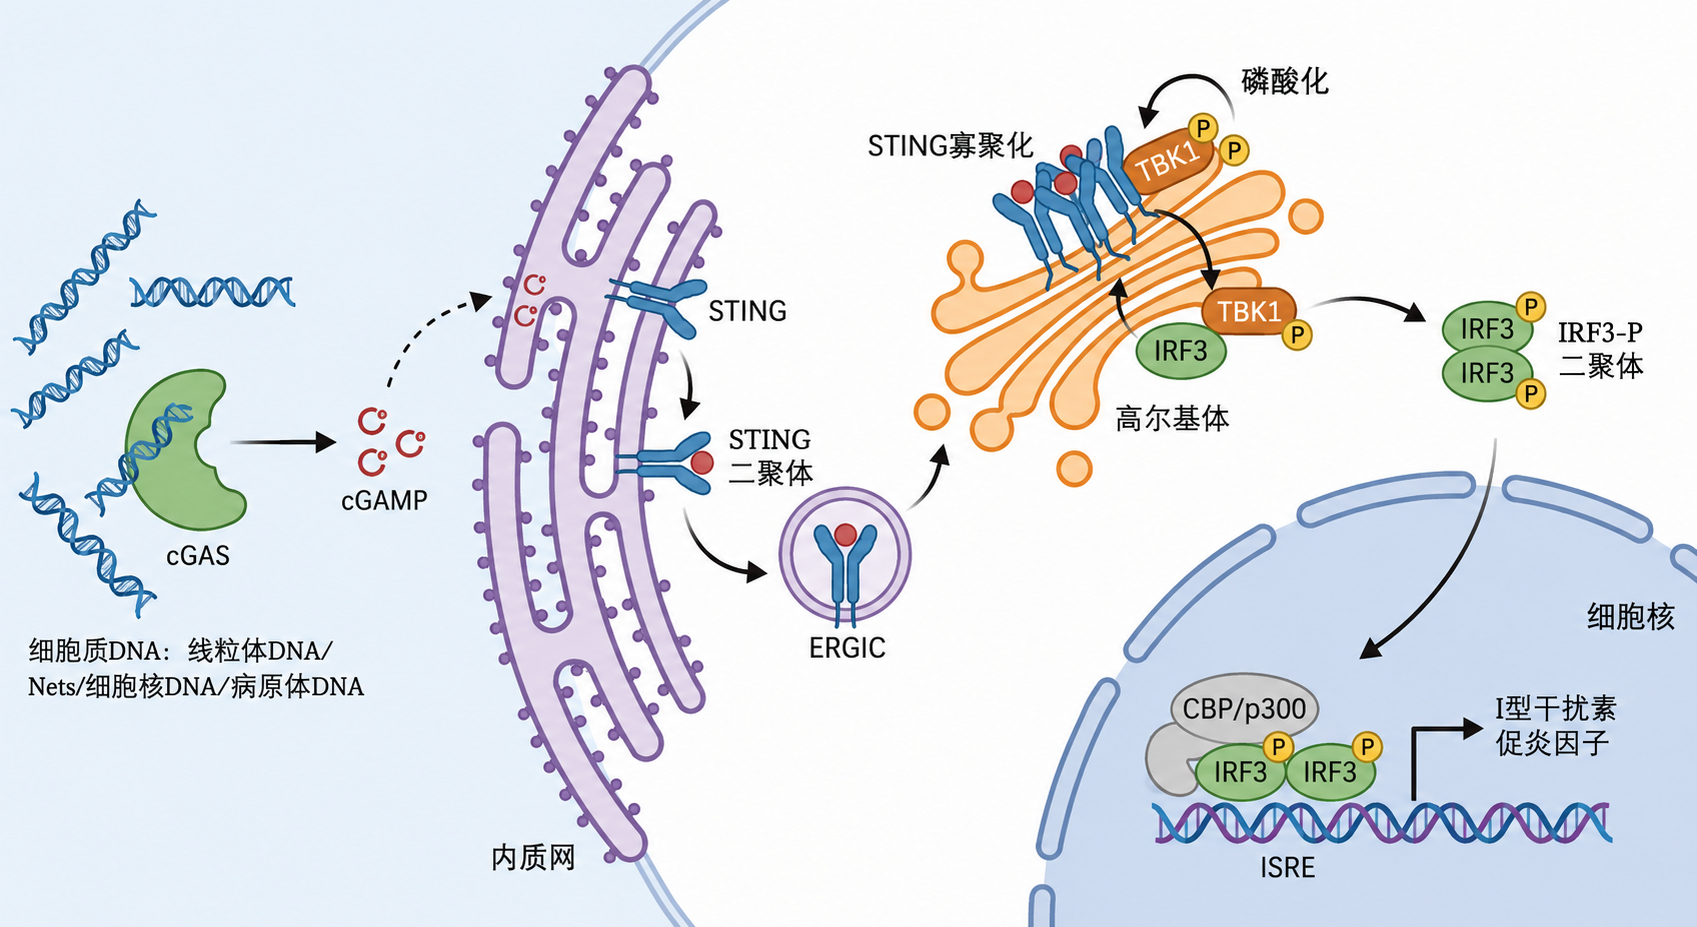
环鸟苷酸-腺苷酸合成酶-干扰素基因刺激蛋白(cyclic GMP-AMP synthase-stimulator of interferon genes, cGAS-STING)通路是哺乳动物固有免疫中的关键DNA感知通路,在炎症反应和细胞应激调控中具有核心作用[7]。该通路可识别异常定位于胞质的DNA,包括线粒体DNA(mitochondrial DNA, mtDNA)、细菌DNA、病毒DNA及细胞核来源的自身DNA等[8]。静息状态下,cGAS主要定位于细胞核,并通过与核小体结合限制其异常激活。胞质DNA出现后,cGAS被激活并催化生成第二信使环鸟苷酸-腺苷酸(cyclic GMP-AMP, cGAMP)[9-10]。cGAMP随后结合内质网跨膜蛋白STING,诱导其构象改变、二聚化,并促使其由内质网转运至内质网-高尔基中间区(endoplasmic reticulum-Golgi intermediate compartment, ERGIC)及高尔基体[11]。在高尔基体膜上,STING二聚体进一步寡聚化,并通过其CTT尾招募TANK结合激酶1(TANK-binding kinase 1, TBK1),促进TBK1自磷酸化和反式磷酸化,从而实现充分激活。同时,转录因子干扰素调节因子3(interferon regulatory factor 3, IRF3)被招募至该复合物并发生磷酸化,随后二聚化并进入细胞核[12]。入核后的IRF3二聚体与共激活因子CREB结合蛋白(CREB-binding protein, CBP)/p300结合,识别干扰素刺激反应元件(interferon-stimulated response element, ISRE)特异度DNA序列,并与活化的核因子κB(Nuclear Factor Kappa-B, NF-κB)协同,诱导Ⅰ型干扰素(type Ⅰ interferons, IFN-Ⅰ)及多种炎症因子表达。cGAS-STING通路在抗感染免疫中具有保护作用;然而,在细胞损伤背景下,mtDNA或细胞核DNA泄漏可导致该通路持续、过度激活,进而引发自身组织损伤,并参与自身免疫性疾病、神经退行性疾病和骨关节炎等疾病进程。此外,cGAS-STING通路还参与自噬、代谢调控、细胞衰老和细胞死亡等多种细胞功能的调节[13]。
然而,关于cGAS-STING通路在ALI/ARDS中如何响应多源性损伤信号、驱动下游病理进程及其靶向干预价值,仍缺乏系统梳理。本文将概述cGAS-STING通路在ALI/ARDS中的激活机制及关键驱动因素,解析其在疾病进展中的作用,并总结相关干预策略的研究进展,以期为阐明ALI/ARDS发病机制和开发新型治疗方案提供依据。
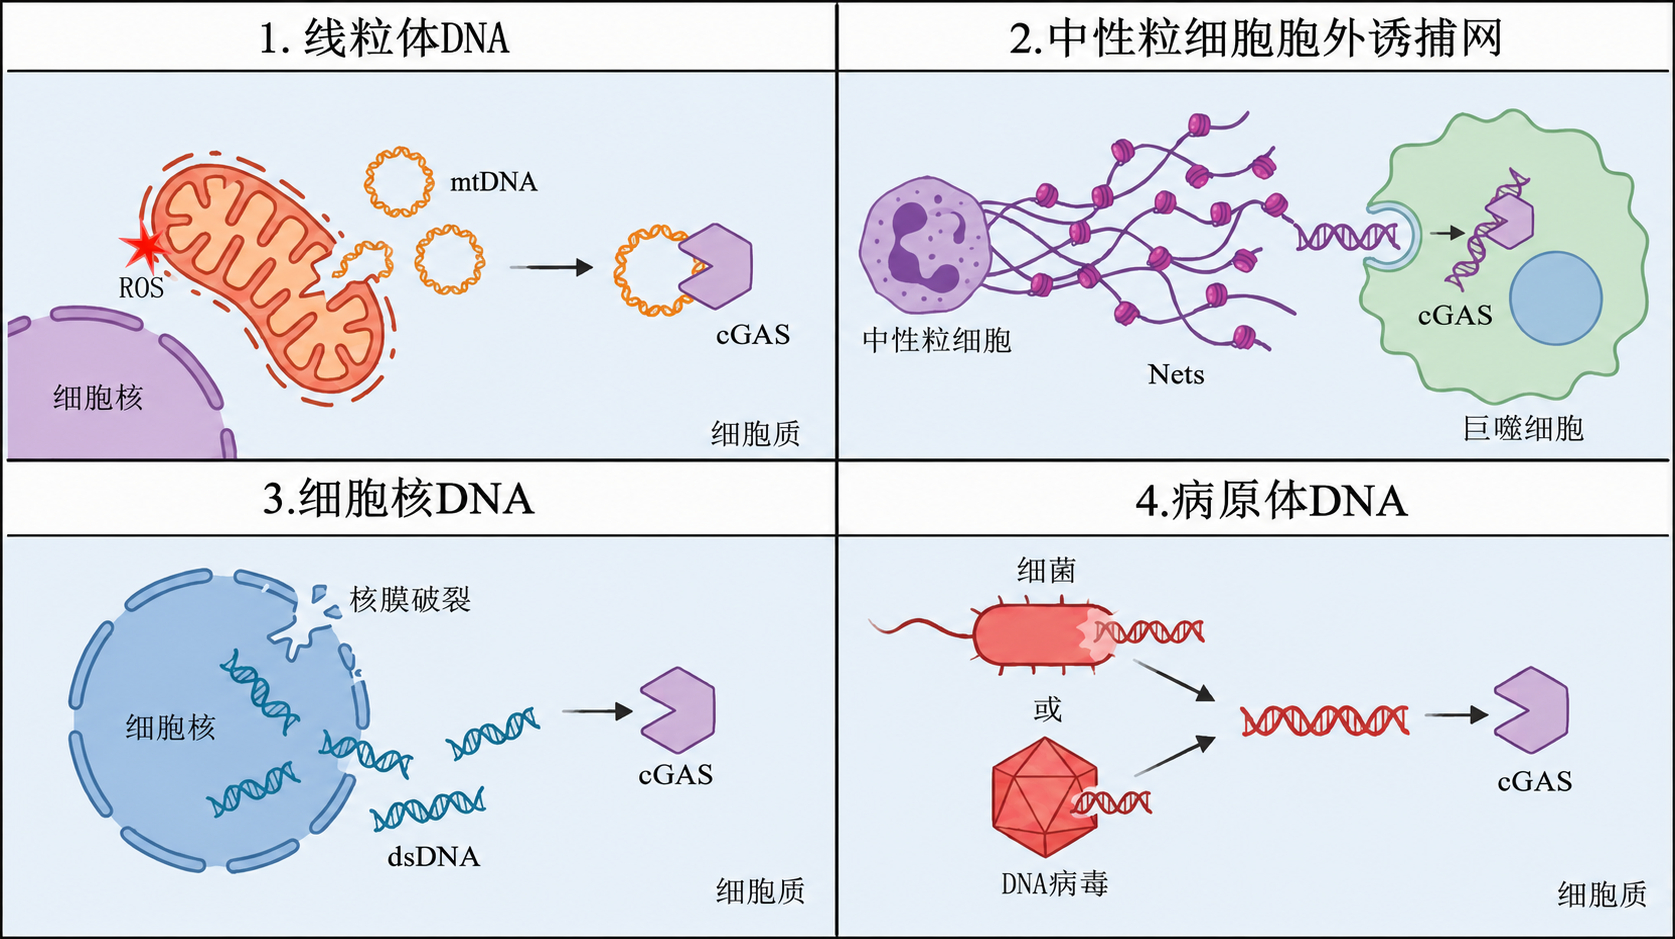
1 cGAS-STING通路在ALI中的激活信号 1.1 线粒体DNA在ALI中,线粒体损伤及mtDNA异常释放是激活cGAS-STING通路的关键信号。辐射、缺血/再灌注、重金属镉暴露和脓毒症等损伤因素可破坏线粒体结构与功能,诱导活性氧(reactive oxygen species, ROS)积累、线粒体膜电位下降及线粒体膜通透性转换孔(mitochondrial permeability transition pore, mPTP)开放[14-15]。随后,mtDNA可经电压依赖性阴离子通道1(voltage-dependent anion channel 1, VDAC1)寡聚化孔道或线粒体外膜透化(mitochondrial outer membrane permeabilization, MOMP)释放至胞质[16]。博来霉素诱导的肺损伤中,肺泡巨噬细胞来源外泌体可将纤维胶凝蛋白B(Ficolin B)递送至肺泡上皮细胞,激活cGAS-STING通路,并诱导线粒体功能障碍和铁死亡[17]。胞质mtDNA,尤其是氧化形式的mtDNA(oxidized mitochondrial DNA, ox-mtDNA),可作为损伤相关分子模式(damage-associated molecular pattern, DAMP)激活cGAS-STING通路,促进IFN-Ⅰ、白细胞介素-1β(interleukin-1 beta, IL-1β)和肿瘤坏死因子-α(tumor necrosis factor-alpha, TNF-α)等促炎因子表达,进而加重肺泡上皮和血管内皮损伤。值得注意的是,线粒体功能障碍与cGAS-STING激活可形成正反馈:通路激活后的炎症微环境进一步加剧细胞和线粒体损伤,促使更多mtDNA释放,从而放大并延续肺损伤信号[18]。见图 1。
|
| 注:cGAS为环鸟苷酸-腺苷酸合成酶;STING为干扰素基因刺激蛋白;cGAMP为环鸟苷酸-腺苷酸;Nets为中性粒细胞胞外诱捕网;ERGIC为内质网-高尔基中间区;TBK1为TANK结合激酶1;IRF3为转录因子干扰素调节因子3;CBP为CREB结合蛋白;ISRE为干扰素刺激反应元件 图 1 cGAS-STING通路激活机制示意图 |
|
|
中性粒细胞胞外诱捕网(neutrophil extracellular traps, NETs)是激活cGAS-STING通路的另一重要来源,尤其参与感染性或无菌性炎症相关ALI。NETs由活化中性粒细胞释放,主要包含染色质DNA、组蛋白和颗粒蛋白。研究显示,NETs或其胞外DNA可被肺泡上皮细胞(alveolar epithelial cells, AECs)内吞,或经消皮素D(gasdermin D, GSDMD)形成的质膜孔洞进入胞质[19]。胞质内NETs衍生DNA可直接作为cGAS配体,触发STING依赖性信号传导,诱导AECs发生坏死性凋亡、焦亡等程序性死亡,破坏肺泡-毛细血管屏障完整性。此外,NETs中的蛋白组分,如髓过氧化物酶和中性粒细胞弹性蛋白酶,可直接损伤肺泡上皮并激活巨噬细胞。后者发生M1型极化,并伴随线粒体损伤和mtDNA释放,进一步放大cGAS-STING信号,形成中性粒细胞、巨噬细胞和上皮细胞共同参与的炎症网络[20]。相应地,抑制NETs形成(如使用GSDMD抑制剂二硫仑)或促进NETs降解(如使用DNase Ⅰ)可显著减弱cGAS-STING通路激活及后续肺组织损伤,从而支持NETs在该通路驱动中的关键作用。见图 1。
1.3 细胞核DNA在辐射、氧化应激或毒性物质作用下,肺泡上皮细胞、内皮细胞等肺内实质细胞可发生严重DNA损伤或程序性死亡,导致核膜完整性受损,并使细胞核DNA泄漏至胞质[21]。胞质中的双链DNA(double-stranded DNA, dsDNA)片段可被cGAS识别,进而启动STING依赖性信号级联。例如,在辐射性肺损伤模型中,电离辐射可诱导肺细胞DNA双链断裂,产生的核DNA片段进入胞质后,成为激活cGAS-STING通路并驱动炎症反应和细胞焦亡的关键信号[22]。此外,凋亡或坏死过程中未被完全降解的核DNA也可被邻近免疫细胞,如巨噬细胞和树突状细胞吞噬,从而激活其胞内cGAS-STING通路并放大炎症反应[23]。见图 1。
1.4 病原体DNA病原体DNA是重要的病原体相关分子模式(pathogen-associated molecular patterns, PAMPs),可被cGAS-STING通路识别并激活固有免疫应答。细菌或DNA病毒侵入肺组织后,其释放的dsDNA可被宿主免疫细胞胞质中的cGAS直接感知。例如,耐碳青霉烯类鲍曼不动杆菌可通过外膜囊泡(outer membrane vesicles, OMVs)将外膜蛋白OMP38递送至宿主细胞线粒体,诱导mtDNA释放至胞质;同时,细菌自身DNA也可进入胞质。二者分别作为DAMPs和PAMPs,依赖cGAS-STING通路激活IFN-Ⅰ应答,进而加重肺部炎症[24]。见图 1。
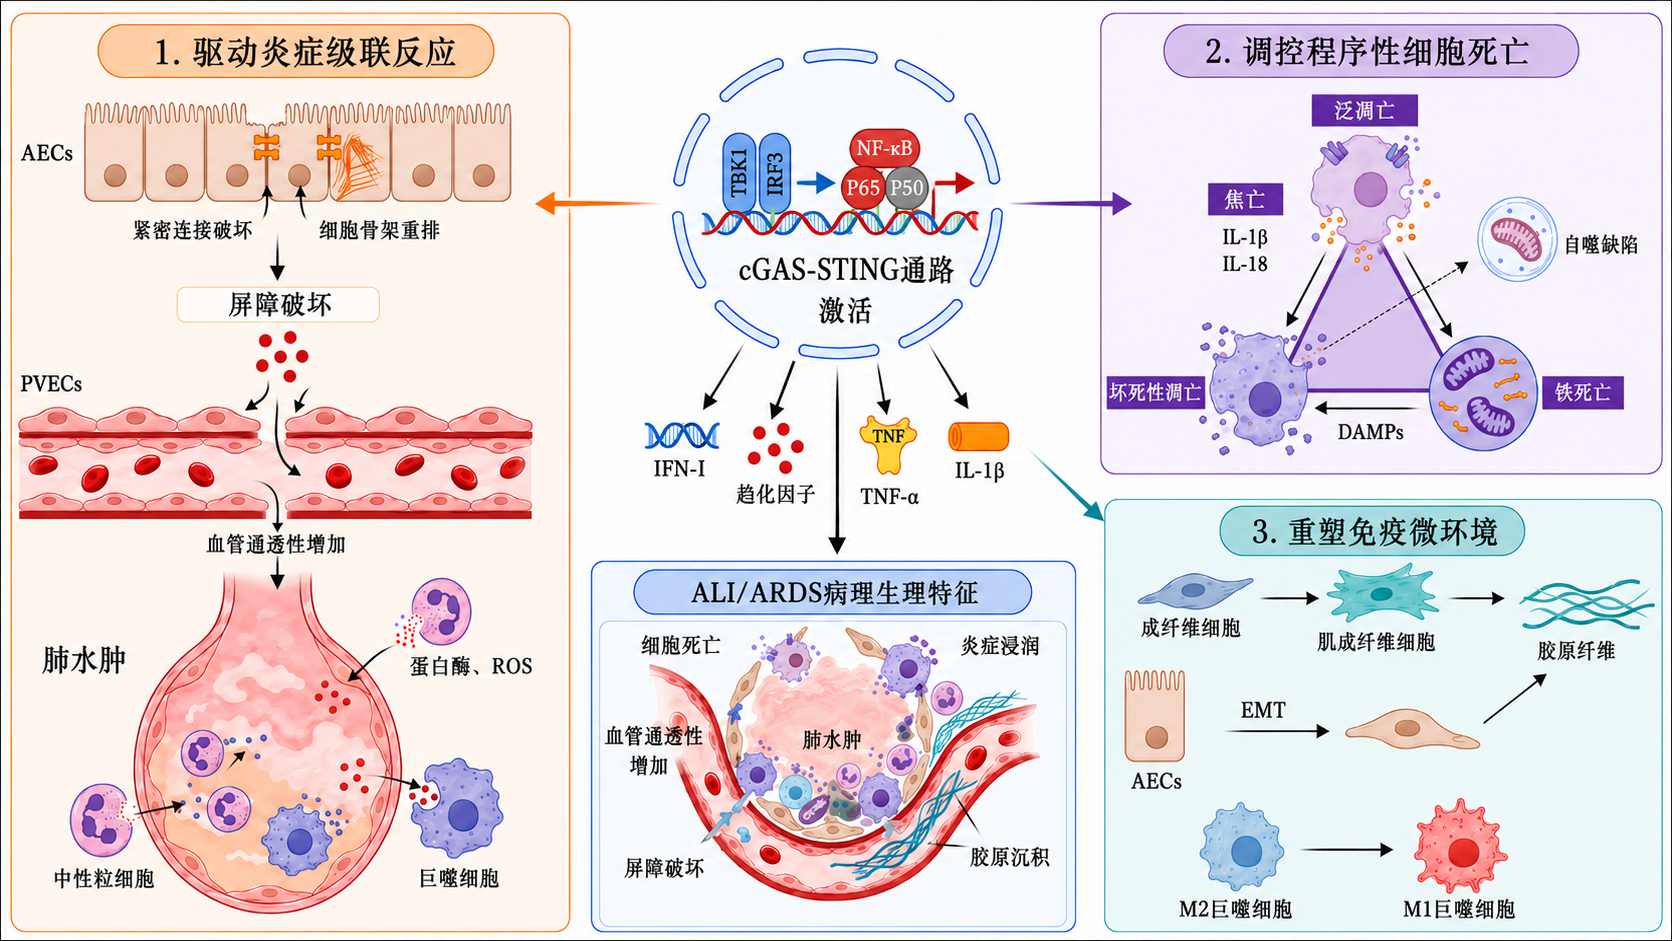
2 cGAS-STING通路在ALI/ARDS中的核心作用 2.1 驱动炎症级联反应cGAS-STING通路可驱动失控的固有免疫炎症级联反应,是ALI/ARDS中炎症风暴和肺泡-毛细血管屏障破坏的重要机制。该通路激活后,下游转录因子IRF3和NF-κB协同活化,诱导IFN-α/β及多种趋化因子快速表达[25]。这一过程不仅放大局部炎症,还促进中性粒细胞、单核巨噬细胞等免疫细胞募集和过度激活,形成炎症正反馈。此外,cGAS-STING通路诱导的IFN-Ⅰ可与TNF-α、IL-1β等炎症因子协同,直接损伤AECs和肺血管内皮细胞(pulmonary vascular endothelial cells, PVECs),导致紧密连接蛋白降解、细胞骨架重排和血管通透性升高,最终引发富含蛋白质的肺水肿,这是ARDS的典型病理生理特征[26]。多项研究表明,抑制cGAS或STING可显著降低炎症介质水平,并减轻肺水肿和组织病理损伤[27-28]。
2.2 调控程序性细胞死亡 2.2.1 焦亡在ALI病理进程中,cGAS-STING通路是调控程序性细胞死亡的重要枢纽,多种死亡形式共同加重肺组织损伤。其中,焦亡是其关键下游效应之一。cGAS-STING信号激活后,可通过IRF3或NF-κB上调NOD样受体蛋白3(NOD-like receptor protein 3, NLRP3)炎症小体关键组分,促进炎症小体组装[22]。同时,STING信号可直接激活胱天蛋白酶-1(Caspase-1),或通过促进组织蛋白酶B释放活化NLRP3,最终导致GSDMD剪切和质膜孔形成,诱导炎症性焦亡。该机制已在镉暴露及肺缺血-再灌注相关ALI模型中得到证实[15, 29]。
2.2.2 坏死性凋亡cGAS-STING通路同样参与坏死性凋亡调控。研究表明,NETs或心肺旁路手术来源的外泌体高迁移率族蛋白B1(high mobility group box 1, HMGB1)可激活cGAS-STING信号,上调受体相互作用蛋白激酶3(receptor-interacting protein kinase 3, RIPK3)和混合谱系激酶结构域样蛋白(mixed lineage kinase domain-like protein, MLKL)的磷酸化水平,进而诱导肺泡上皮细胞坏死性凋亡,造成肺泡结构破坏[30]。见图 2。
|
| 注: cGAS为环鸟苷酸-腺苷酸合成酶;ROS为活性氧;mtDNA为线粒体DNA;Nets为中性粒细胞胞外诱捕网;dsDNA为双链DNA 图 2 ALI中激活cGAS-STING通路的四种胞质DNA来源 |
|
|
cGAS-STING通路持续活化可扰乱细胞代谢稳态,并与铁死亡密切相关。博来霉素诱导的肺损伤模型显示,巨噬细胞来源外泌体可通过激活cGAS-STING信号,诱导肺泡上皮细胞发生以脂质过氧化为特征的铁死亡[17]。此外,STING可与核受体共激活因子4(nuclear receptor coactivator 4, NCOA4)相互作用,促进铁蛋白自噬,导致游离铁释放和脂质过氧化级联反应增强,进而诱导巨噬细胞铁死亡。该过程并不完全依赖经典TBK1/IFN信号轴[31]。见图 2。
2.2.4 自噬自噬在细胞死亡交互网络中主要发挥调控作用。cGAS-STING信号异常激活可加重线粒体功能障碍,包括膜电位下降和ROS积累,从而为焦亡、坏死性凋亡提供信号平台,并形成有利于铁死亡发生的氧化应激环境[32]。相反,自噬缺陷,如ATG16L1或IRGM缺失,可impair损伤线粒体清除并促进ROS累积,进一步放大cGAS-STING-NLRP3信号,形成正反馈回路,最终加剧细胞死亡和组织损伤[33]。见图 2。
2.2.5 泛凋亡在ALI复杂炎症微环境中,cGAS-STING通路可整合多种细胞死亡信号,其效应并不限于单一死亡形式,而体现为多种死亡通路的交互与协同。泛凋亡概念提示,焦亡、凋亡和坏死性凋亡可在同一细胞群体或组织内共同激活[34]。例如,在脂多糖(lipopolysaccharide, LPS)诱导的ALI中,cGAS-STING通路不仅促进GSDMD介导的焦亡,还上调促凋亡相关蛋白BCL-2(B-cell lymphoma 2, BCL-2)相关X蛋白/BCL-2比值及坏死性凋亡标志物p-MLKL;而抑制该通路可同步减轻上述三种死亡形式[35]。这一死亡网络进一步放大组织损伤。NETs可通过激活cGAS-STING诱导肺泡上皮细胞和巨噬细胞发生焦亡或坏死性凋亡;死亡细胞释放的DAMPs,如ATP、HMGB1和更多mtDNA,又可招募更多中性粒细胞,形成自我放大的损伤循环[36]。因此,靶向cGAS-STING通路以协同调控多重细胞死亡,可能成为ALI治疗的重要转化方向。见图 2。
2.3 重塑免疫微环境cGAS-STING通路还可通过重塑肺内免疫微环境和促进异常修复,推动ARDS向慢性化或纤维化表型演进。活化的cGAS-STING信号可直接作用于肺成纤维细胞和上皮细胞,诱导上皮-间质转化(epithelial-mesenchymal transition, EMT),并促进胶原蛋白等细胞外基质沉积[37-38]。在辐射性肺损伤模型中,肺上皮细胞释放的dsDNA可通过cGAS-STING-PERK-eIF2α信号轴,驱动成纤维细胞向肌成纤维细胞转化,成为后期肺纤维化的重要细胞来源[39]。同时,cGAS-STING通路也调控巨噬细胞极化。其激活可推动巨噬细胞向促炎、促纤维化的M1表型分化,并抑制其向修复性M2表型转换。这种失衡的巨噬细胞反应进一步放大炎症、阻碍组织修复,并为纤维化形成提供微环境基础[40]。对基质细胞和免疫细胞的双重编程,可能是ARDS患者进入纤维增生期或遗留肺功能障碍的重要机制。
3 cGAS-STING通路在ALI中的干预策略与应用 3.1 经典靶向抑制剂随着cGAS-STING通路在急性肺损伤中作用机制的逐步明确,直接靶向其关键节点的特异度抑制剂已成为重要干预策略。见图 3。代表性药物包括cGAS抑制剂RU.521及STING抑制剂H-151、C-176,可分别阻断上游DNA感知或下游信号转导,从而减轻炎症反应和细胞死亡。多项临床前研究表明,这类抑制剂可缓解LPS、缺血-再灌注、纳米颗粒及辐射等因素诱导的ALI,表现为肺水肿减轻、炎性细胞浸润减少和促炎因子水平下降[21, 41]。值得注意的是,考虑到STING在抗肿瘤免疫中的双重作用,ALI治疗中仍需避免长期或全身性STING抑制带来的免疫抑制风险。因此,发展具有时空选择性的干预策略,可能更具转化价值[39, 42]。
|
| 注:cGAS为环鸟苷酸-腺苷酸合成酶;STING为干扰素基因刺激蛋白;AECs为肺泡上皮细胞;PVECs为血管内皮细胞;ROS为活性氧;IRF3为转录因子干扰素调节因子3;NF-κB为核因子κB;TNF为肿瘤坏死因子;IL为白介素;DAMPs为损伤相关分子模式;EMT为上皮间质转化 图 3 cGAS-STING通路在ALI/ARDS中的核心作用 |
|
|
在ALI中,靶向cGAS-STING通路的天然产物和中药复方因具有多靶点、协同调控特征,成为具有潜力的干预策略。已有研究显示,紫苏醛、甘草黄酮、芦丁、槲皮素衍生物、双氢青蒿素等天然化合物,以及连翘-金银花药对、双丹解毒汤、银翘散等中药复方,可通过抑制cGAS-STING通路及其交汇的NLRP3炎症小体通路,发挥协同抗炎作用[25, 28, 35, 43-46]。其中,连翘-金银花药对较单一药物更有效地同步抑制STING-IRF3和NLRP3-Caspase-1信号通路,提示其可能具有更优的抗炎效应。见表 1。
| 干预策略类型 | 代表制剂 | 作用机制 | 损伤模型 |
| 经典靶向抑制剂 | RU.521 | 直接抑制cGAS酶活性,阻断cGAMP的合成 | 辐射、缺血/再灌注、纳米颗粒 |
| H-151、C-176 | 直接靶向并抑制STING蛋白,阻断下游TBK1-IRF3/NF-κB信号传导 | 辐射、LPS | |
| 天然产物与中药复方 | 紫苏醛 | 抑制cGAS-STING通路及下游IRF3/NF-κB磷酸化,减轻氧化应激 | LPS |
| 甘草黄酮 | 抑制cGAMP合成,阻断cGAS-STING通路,减少Ⅰ型干扰素及炎症因子产生 | LPS | |
| 芦丁 | 双重抑制cGAS-STING通路激活和NLRP3炎症小体介导的焦亡 | LPS | |
| 槲皮素衍生物 | 抑制胞质DNA释放和cGAS-STING轴,减轻泛凋亡 | LPS | |
| 双氢青蒿素 | 抑制cGAS/STING/NF-κB信号通路 | 辐射 | |
| 连翘-金银花药对 | 协同抑制STING-IRF3和NLRP3-Caspase-1信号,抗炎效果优于单药 | LPS | |
| 双丹解毒汤 | 通过多草药协同作用,抑制cGAS-STING和炎症小体的异常激活 | LPS | |
| 银翘散 | 抑制cGAS-STING通路活化 | LPS | |
| 纳米技术与新材料应用 | CoAl-LDH纳米片 | 兼具ROS清除能力,并能负载STING抑制剂,实现肺部靶向递送与协同治疗 | LPS |
| 小球藻来源外泌体纳米凝胶 | 天然来源囊泡具有抗氧化酶,负载cGAS抑制剂,协同抑制通路,抗炎抗纤维化 | 辐射 | |
| 氨基胍功能化DNA四面体 | 载体骨架可抑制cGAS-STING,同时递送STING siRNA,实现基因沉默与药物治疗协同 | LPS |
前沿干预策略正逐渐融合生物材料学与精准递送技术,以提高肺部靶向性、降低脱靶效应并实现联合治疗。研究者已开发多种智能纳米递送系统。例如,将cGAS抑制剂RU.521装载于具有ROS清除能力的钴铝层状双金属氢氧化物(cobalt-aluminum layered double hydroxide, CoAl-LDH)纳米片,或小球藻来源的外泌体纳米凝胶中,可通过吸入实现肺部靶向递送,在清除损伤诱因的同时抑制cGAS-STING通路,并显示出良好的生物安全性[47-48]。此外,DNA纳米结构,如氨基胍功能化的DNA四面体TETAG,可作为siRNA递送载体,实现靶向STING的精准基因沉默;其骨架本身也可通过竞争性结合或抑制cGAS发挥治疗作用,从而实现基因沉默与药物干预的协同[49]。这些新兴技术通过时空精准调控和多机制协同,为将cGAS-STING通路干预安全、有效地递送至肺部病灶提供了新的转化方向。
总之,cGAS-STING通路作为胞质DNA感知和固有免疫激活的核心枢纽,在ALI/ARDS病理进程中发挥关键连接作用。该通路既整合线粒体损伤、NETs释放和外泌体信号等上游损伤刺激,又驱动失控性炎症、多重细胞死亡、肺泡-毛细血管屏障破坏及异常修复/纤维化等下游病理事件。大量临床前研究表明,药理抑制或基因敲除cGAS/STING可显著减轻多种病因诱导的肺损伤,提示其具有重要治疗靶点潜力[50-51]。因此,进一步阐明cGAS-STING通路在ALI中的细胞特异度调控网络,将有助于理解疾病异质性,并为精准治疗策略开发奠定基础。
尽管相关研究已取得重要进展,将cGAS-STING通路的机制认识转化为临床干预仍面临多重挑战。首先,该通路具有显著的时空异质性和双重作用。cGAS-STING在抗感染免疫中不可或缺;在ALI早期,适度激活可能具有保护效应,而持续或过度激活则可驱动病理性损伤。因此,治疗干预需精准界定时间窗和剂量窗,避免全局抑制带来的感染风险[52]。其次,cGAS-STING通路的细胞类型特异度效应仍未充分阐明。现有研究主要集中于肺泡上皮细胞、巨噬细胞和中性粒细胞,而该通路在肺成纤维细胞、内皮细胞和间充质干细胞等细胞中的功能,以及其介导细胞间通讯的具体机制,仍需进一步解析[20, 53]。最后,目前仍缺乏可实时、无创评估患者肺内cGAS-STING通路活性的可靠生物标志物,这限制了基于该通路的精准分型和个体化治疗。
未来研究可从三个方面推进。首先,应结合单细胞多组学技术和空间转录组学,在ALI患者样本及高级别动物模型中绘制cGAS-STING通路活性的细胞类型特异度图谱及其动态变化,明确其在有害炎症和组织修复中的阶段性作用,为细胞靶向治疗提供依据。其次,应发展超越单纯抑制的新型调节策略,包括开发变构调节剂、靶向通路负向调控分子(如自噬相关蛋白、去乙酰化酶)的激动剂,以及利用工程化外泌体/纳米载体实现靶向递送和联合调控,从而重塑免疫稳态。最后,应加强转化医学研究,将临床前发现与患者队列相结合,筛选并验证反映cGAS-STING通路活性的循环生物标志物,并开展研究者发起的小型临床试验,评估现有抑制剂(如用于其他适应证的STING抑制剂)在特定ALI/ARDS亚型患者中的安全性和初步疗效,推动机制研究向临床获益转化。
利益冲突 所有作者声明无利益冲突
| [1] | Zong Y, Li H, Liao P, et al. Mitochondrial dysfunction: mechanisms and advances in therapy[J]. Sig Transduct Target Ther, 2024, 9: 124. DOI:10.1038/s41392-024-01839-8 |
| [2] | Meyer NJ, Gattinoni L, Calfee CS. Acute respiratory distress syndrome[J]. Lancet, 2021, 398(10300): 622-637. DOI:10.1016/s0140-6736(21)00439-6 |
| [3] | 刘付蓉, 翁利, 杜斌. 急性呼吸窘迫综合征的全球新定义与诊断标准: 问题与挑战依旧[J]. 中华急诊医学杂志, 2024, 33(8): 1057-1059. DOI:10.3760/cma.j.issn.1671-0282.2024.08.001 |
| [4] | 中国研究型医院学会危重医学专委会, 宁波诺丁汉大学GRADE中心. 中国成人急性呼吸窘迫综合征(ARDS)诊断与非机械通气治疗指南(2023)[J]. 中华急诊医学杂志, 2023, 32(10): 1-15. DOI:10.3760/cma.j.issn.1671-0282.2023.10.004 |
| [5] | Grasselli G, Calfee CS, Camporota L, et al. ESICM guidelines on acute respiratory distress syndrome: definition, phenotyping and respiratory support strategies[J]. Intensive Care Med, 2023, 49(7): 727-759. DOI:10.1007/s00134-023-07050-7 |
| [6] | Matthay MA, Zemans RL, Zimmerman GA, et al. Acute respiratory distress syndrome[J]. Nat Rev Dis Primers, 2019, 5: 18. DOI:10.1038/s41572-019-0069-0 |
| [7] | Hopfner KP, Hornung V. Molecular mechanisms and cellular functions of cGAS-STING signalling[J]. Nat Rev Mol Cell Biol, 2020, 21(9): 501-521. DOI:10.1038/s41580-020-0244-x |
| [8] | Ablasser A, Chen ZJ. cGAS in action: Expanding roles in immunity and inflammation[J]. Science, 2019, 363(6431): aat8657. DOI:10.1126/science.aat8657 |
| [9] | Civril F, Deimling T, de Oliveira Mann CC, et al. Structural mechanism of cytosolic DNA sensing by cGAS[J]. Nature, 2013, 498(7454): 332-337. DOI:10.1038/nature12305 |
| [10] | Gao P, Ascano M, Wu Y, et al. Cyclic[G(2', 5')pA(3', 5')p] is the metazoan second messenger produced by DNA-activated cyclic GMP-AMP synthase[J]. Cell, 2013, 153(5): 1094-1107. DOI:10.1016/j.cell.2013.04.046 |
| [11] | Gui X, Yang H, Li T, et al. Autophagy induction via STING trafficking is a primordial function of the cGAS pathway[J]. Nature, 2019, 567(7747): 262-266. DOI:10.1038/s41586-019-1006-9 |
| [12] | Zhang CG, Shang GJ, Gui X, et al. Structural basis of STING binding with and phosphorylation by TBK1[J]. Nature, 2019, 567(7748): 394-398. DOI:10.1038/s41586-019-1000-2 |
| [13] | Chen C, Xu PL. Cellular functions of cGAS-STING signaling[J]. Trends Cell Biol, 2023, 33(8): 630-648. DOI:10.1016/j.tcb.2022.11.001 |
| [14] | Ni JJ, Guo TT, Zhou Y, et al. STING signaling activation modulates macrophage polarization via CCL2 in radiation-induced lung injury[J]. J Transl Med, 2023, 21(1): 590. DOI:10.1186/s12967-023-04446-3 |
| [15] | Ju YN, Li H, Zhuo ZP, et al. Mitochondrial DNA from endothelial cells activated the cGAS-STING pathway and regulated pyroptosis in lung ischaemia reperfusion injury after lung transplantation[J]. Immunobiology, 2025, 230(1): 152865. DOI:10.1016/j.imbio.2024.152865 |
| [16] | He SY, Pan TT, Tian R, et al. Fatty acid synthesis promotes mtDNA release via ETS1-mediated oligomerization of VDAC1 facilitating endothelial dysfunction in sepsis-induced lung injury[J]. Cell Death Differ, 2025, 32(12): 2177-2192. DOI:10.1038/s41418-025-01524-5 |
| [17] | Wu X, Jiang YX, Li R, et al. Ficolin B secreted by alveolar macrophage exosomes exacerbates bleomycin-induced lung injury via ferroptosis through the cGAS-STING signaling pathway[J]. Cell Death Dis, 2023, 14(8): 577. DOI:10.1038/s41419-023-06104-4 |
| [18] | Peng K, Yao YX, Lu X, et al. Mitochondrial dysfunction-associated alveolar epithelial senescence is involved in CdCl2-induced COPD-like lung injury[J]. J Hazard Mater, 2024, 476: 135103. DOI:10.1016/j.jhazmat.2024.135103 |
| [19] | Zhao C, Liang FT, Ye ML, et al. GSDMD promotes neutrophil extracellular traps via mtDNA-cGAS-STING pathway during lung ischemia/reperfusion[J]. Cell Death Discov, 2023, 9: 368. DOI:10.1038/s41420-023-01663-z |
| [20] | Li XC, Wang YY, Chen YX, et al. Icariside Ⅱ alleviates lipopolysaccharide-induced acute lung injury by inhibiting lung epithelial inflammatory and immune responses mediated by neutrophil extracellular traps[J]. Life Sci, 2024, 346: 122648. DOI:10.1016/j.lfs.2024.122648 |
| [21] | Wang CL, Lin XY, Guan SC, et al. Dihydroartemisinin attenuates radiation-induced lung injury by inhibiting the cGAS/STING/NF-κB signaling pathway[J]. Drug Dev Res, 2025, 86(3): e70090. DOI:10.1002/ddr.70090 |
| [22] | Zhang Y, Li ZJ, Hong WF, et al. STING-dependent sensing of self-DNA driving pyroptosis contributes to radiation-induced lung injury[J]. Int J Radiat Oncol, 2023, 117(4): 928-941. DOI:10.1016/j.ijrobp.2023.05.029 |
| [23] | Benmerzoug S, Rose S, Bounab B, et al. STING-dependent sensing of self-DNA drives silica-induced lung inflammation[J]. Nat Commun, 2018, 9: 5226. DOI:10.1038/s41467-018-07425-1 |
| [24] | Yang Y, Zeng YY, Zhu JJ, et al. OMP38 of Carbapenem-Resistant Acinetobacter Baumannii-Mediated mtDNA Release Activates the cGAS-STING Signaling to Induce Inflammatory Response[J]. Adv Sci, 2025, 12(4): 2408292. DOI:10.1002/advs.202408292 |
| [25] | Wei JH, Liu ZJ, Sun HB, et al. Perillaldehyde ameliorates lipopolysaccharide-induced acute lung injury via suppressing the cGAS/STING signaling pathway[J]. Int Immunopharmacol, 2024, 130: 111641. DOI:10.1016/j.intimp.2024.111641 |
| [26] | Huang RH, Shi Q, Zhang ST, et al. Inhibition of the cGAS-STING pathway attenuates lung ischemia/reperfusion injury via regulating endoplasmic reticulum stress in alveolar epithelial type Ⅱ cells of rats[J]. J Inflamm Res, 2022, 15: 5103-5119. DOI:10.2147/jir.s365970 |
| [27] | 弥亮钰, 丁文艳, 杨莹莹, 等. 调控cGAS/STING通路对油酸致急性肺损伤小鼠的保护机制[J]. 中华危重病急救医学, 2025, 37(7): 651-656. DOI:10.3760/cma.j.cn121430-20250104-00012 |
| [28] | Zhou X, Wang ZB, Wang YT, et al. Rutin ameliorates LPS-induced acute lung injury in mice by inhibiting the cGAS-STING-NLRP3 signaling pathway[J]. Front Pharmacol, 2025, 16: 1590096. DOI:10.3389/fphar.2025.1590096 |
| [29] | Zhang CY, Ou AJ, Jin L, et al. Cadmium exposure triggers alveolar epithelial cell pyroptosis by inducing mitochondrial oxidative stress and activating the cGAS-STING pathway[J]. Cell Commun Signal, 2024, 22(1): 566. DOI:10.1186/s12964-024-01946-7 |
| [30] | Zhao YP, Zhang JY, Lu HH, et al. Cardiopulmonary bypass-derived plasma exosomal hmgb1 contributes to alveolar epithelial cell necroptosis via mtDNA/cgas/sting pathway[J]. Shock, 2022, 58(6): 534-541. DOI:10.1097/shk.0000000000002006 |
| [31] | Wu J, Liu QJ, Zhang XF, et al. The interaction between STING and NCOA4 exacerbates lethal sepsis by orchestrating ferroptosis and inflammatory responses in macrophages[J]. Cell Death Dis, 2022, 13(7): 653. DOI:10.1038/s41419-022-05115-x |
| [32] | Zhao MM, Xie XH, Ding YT, et al. Glabridin protects against paraquat-induced acute lung injury by targeting ME1 to mitigate oxidative stress, mitochondrial dysfunction, and cGAS-STING activation[J]. Free Radic Biol Med, 2025, 235: 317-334. DOI:10.1016/j.freeradbiomed.2025.04.016 |
| [33] | vBai Y, Zhan XY, Zhu Q, et al. ATG16L1 restrains macrophage NLRP3 activation and alveolar epithelial cell injury during septic lung injury[J]. Clinical & Translational Med, 2025, 15(4): e70289. DOI:10.1002/ctm2.70289 |
| [34] | Li XL, Wang M, Li YF, et al. Crosstalk between cell death and the cGAS-STING pathway in sepsis-associated acute lung injury[J]. J Inflamm Res, 2025, 18: 13291-13312. DOI:10.2147/jir.s543273 |
| [35] | Chen YH, Wu XL, Jiang Z, et al. KAE ameliorates LPS-mediated acute lung injury by inhibiting PANoptosis through the intracellular DNA-cGAS-STING axis[J]. Front Pharmacol, 2025, 15: 1461931. DOI:10.3389/fphar.2024.1461931 |
| [36] | Zhao J, Zhen NX, Zhou QC, et al. NETs promote inflammatory injury by activating cGAS-STING pathway in acute lung injury[J]. Int J Mol Sci, 2023, 24(6): 5125. DOI:10.3390/ijms24065125 |
| [37] | Guo J, Su QY, Chai H, et al. Baricitinib alleviates myositis-associated interstitial lung disease in mice by inhibiting the NETs-cGAS-STING-EMT axis[J]. Int Immunopharmacol, 2026, 171: 116137. DOI:10.1016/j.intimp.2025.116137 |
| [38] | Qu C, Bai CJ, Luo JH, et al. Environmental low-dose nanosized carbon black exposure aggravates lung fibrosis-induced by radiation in vivo and in vitro[J]. Sci Total Environ, 2025, 972: 179119. DOI:10.1016/j.scitotenv.2025.179119 |
| [39] | Ge XW, Liu QW, Fan H, et al. STING facilitates the development of radiation-induced lung injury via regulating the PERK/eIF2α pathway[J]. Transl Lung Cancer Res, 2024, 13(11): 3010-3025. DOI:10.21037/tlcr-24-649 |
| [40] | Yang MM, Fan Q, Hei TK, et al. Single-cell transcriptome analysis of radiation pneumonitis mice[J]. Antioxidants, 2022, 11(8): 1457. DOI:10.3390/antiox11081457 |
| [41] | Jiang ZQ, Jiang Y, Fan JC, et al. Inhibition of cGAS ameliorates acute lung injury triggered by zinc oxide nanoparticles[J]. Toxicol Lett, 2023, 373: 62-75. DOI:10.1016/j.toxlet.2022.11.002 |
| [42] | Zhao XY, Du LH, Ma N, et al. The role of cGAS-STING pathway in the development of radiation-induced lung injury[J]. J Cancer Res Clin Oncol, 2025, 151(2): 48. DOI:10.1007/s00432-025-06088-y |
| [43] | Li JJ, Dong M, Yao Q, et al. Amplifying protection against acute lung injury: Targeting both inflammasome and cGAS-STING pathway by Lonicerae Japonicae Flos-Forsythiae Fructus drug pair[J]. Chin Herb Med, 2024, 16(3): 422-434. DOI:10.1016/j.chmed.2024.04.001 |
| [44] | Yao Q, Wen JC, Chen SM, et al. Shuangdan Jiedu Decoction improved LPS-induced acute lung injury by regulating both cGAS-STING pathway and inflammasome[J]. J Ethnopharmacol, 2025, 336: 118661. DOI:10.1016/j.jep.2024.118661 |
| [45] | Xuan LH, Wang Y, Qu C, et al. Metabolomics reveals that PS-NPs promote lung injury by regulating prostaglandin B1 through the cGAS-STING pathway[J]. Chemosphere, 2023, 342: 140108. DOI:10.1016/j.chemosphere.2023.140108 |
| [46] | Li H, Wen JC, Cui YY, et al. Yinqiao powder effectively alleviates acute lung injury via regulating cGAS-STING signaling pathway[J]. MedScience, 2025, 19(6): 1086-1098. DOI:10.1007/s11684-025-1172-0 |
| [47] | Hu HQ, Lu F, Zhang WT, et al. Chlorella-derived extracellular vesicle-based nanogels suppress cGAS-STING for treatment of radiation-induced lung injury[J]. Nat Commun, 2026, 17: 1403. DOI:10.1038/s41467-025-68140-2 |
| [48] | Qin XC, Fu Z, Wu LL, et al. Regulation of cGAS-STING pathway with inhalable nanozyme in acute lung injury[J]. Biomaterials, 2026, 324: 123521. DOI:10.1016/j.biomaterials.2025.123521 |
| [49] | Chen Y, Wu D, Li Q, et al. Aminoguanidine-assembled functional DNA tetrahedron alleviates acute lung injury by targeting the cGAS-STING signaling pathway[J]. Mater Today Bio, 2025, 32: 101760. DOI:10.1016/j.mtbio.2025.101760 |
| [50] | He YQ, Zhou CC, Deng JL, et al. Tanreqing inhibits LPS-induced acute lung injury in vivo and in vitro through downregulating STING signaling pathway[J]. Front Pharmacol, 2021, 12: 746964. DOI:10.3389/fphar.2021.746964 |
| [51] | Mi LY, Zhou YK, Ding WY, et al. Effect of regulating FUNDC1 mitophagy-mediated cGAS/STING pathway in oleic acid-induced acute lung injury model[J]. Pulm Circ, 2025, 15(3): e70137. DOI:10.1002/pul2.70137 |
| [52] | Peng YQ, Yang YX, Li YY, et al. Mitochondrial (mt)DNA-cyclic GMP-AMP synthase (cGAS)-stimulator of interferon genes (STING) signaling promotes pyroptosis of macrophages via interferon regulatory factor (IRF)7/IRF3 activation to aggravate lung injury during severe acute pancreatitis[J]. Cell Mol Biol Lett, 2024, 29(1): 61. DOI:10.1186/s11658-024-00575-9 |
| [53] | Wu YT, Xu WT, Zheng L, et al. 4-octyl itaconate ameliorates alveolar macrophage pyroptosis against ARDS via rescuing mitochondrial dysfunction and suppressing the cGAS/STING pathway[J]. Int Immunopharmacol, 2023, 118: 110104. DOI:10.1016/j.intimp.2023.110104 |