 2026, Vol. 35


引用本文 |


2. 赣南医科大学第一临床医学院, 赣州 341000;
3. 赣南医科大学第一附属医院输血科, 赣州 341000
2. The First Clinical Medical College of Gannan Medical University, Ganzhou 341000, China;
3. Department of Blood Transfusion, The First Affiliated Hospital of Gannan Medical University, Ganzhou 341000, China
气候变暖日益对人类生存造成挑战[1-2]。全球平均气温在近百年来已经上升约1.1℃,并且世界范围内极端高温事件频发[3]。2019年全球与高温相关的死亡人数达31万[4]。热射病(heat stroke,HS)作为重症急性中暑的最严重类型,病死率高达20%~60%,其以核心温度大于40℃、中枢神经功能障碍为典型特征,常继发全身炎症反应综合征及多器官衰竭,目前临床尚缺乏特效防治手段[5]。
肠道作为人体最大的免疫器官和微生态系统,在HS的病理进程中发挥核心调控作用[6-7]。高温应激可破坏肠道黏膜完整性,下调紧密连接蛋白表达、增加肠道屏障通透性,同时引发肠道菌群失衡,导致内毒素入血。内毒素通过“肠-器官轴”形成恶性循环,进一步放大全身炎症反应,加剧多器官损伤[8]。动物研究表明,HS可损害肠道消化吸收功能、破坏肠道组织形态,并诱发全身性炎症反应[9]。
研究证实,益生菌地衣芽孢杆菌预给药可通过维持肠道屏障功能、调节肠道菌群,减轻HS大鼠的全身炎症反应及脏器损伤[10]。证据表明,FM对复发性艰难梭菌感染的疗效确切,其可通过富集有益菌、抑制致病菌增殖、增强肠道屏障功能及减轻局部炎症发挥作用[11-12]。然而,FMT对HS肠道菌群及屏障功能疗效尚不清楚。本研究以HS大鼠为模型,探讨FMT对全身炎症的影响,聚焦其对肠道菌群及屏障功能的调控作用,揭示FMT干预机制,为临床防治提供实验依据。
1 材料与方法 1.1 实验动物成年雄性SD大鼠,7~8周龄,体重250~280 g,购自江苏华创信诺医疗科技有限公司,饲养于赣南医科大学SPF级动物实验中心,环境温度为22℃,12 h昼夜循环,大鼠自由摄食饮水。本研究所有动物处理均符合赣南医科大学实验动物伦理委员会规范(伦理审批号:LLSC-2023第432号)及国家相关法规。
1.2 材料与仪器研究使用材料包括无水乙醇、二甲苯、4%多聚甲醛、2.5%戊二醛(国药集团化学试剂有限公司,中国);HE染色试剂盒(上海碧云天生物技术有限公司,中国);IL-6、IL-1β、TNF-α试剂盒(武汉基因科学生物技术有限公司,中国);D-乳酸检测试剂盒(BioVision公司,美国);I-FABP检测试剂盒(广西燕晶生物技术有限公司,中国);内毒素鲎试剂(厦门鲎试剂实验厂有限公司,中国);FITC-dextran、SCFAs标准品(Sigma-Aldrich公司,美国);粪便基因组DNA提取试剂盒(QIAGEN N.V.公司,德国);16S rRNA V3-V4区扩增引物(武汉塞维尔生物科技有限公司,中国)。
研究使用仪器包括THB-80PF恒温恒湿试验箱(广东浩天科技有限公司,中国);ALC-ET06数字体温计(奥朗科技有限公司,中国);JB-P5包埋机、RM2016病理切片机(武汉俊杰电子有限公司,中国);DW86L626超低温冰箱(海尔集团,中国);BX53光学显微镜(奥林巴斯株式会社,日本);JEM-1400 Plus透射电镜(日本电子株式会社,日本);GC-MS气相色谱质谱联用仪。
1.3 粪菌液制备取5只大鼠新鲜粪便共10 g,加入37 ℃无菌生理盐水50 mL充分混匀,双层无菌纱布过滤;滤液4 ℃、3 000 r/min离心3 min,弃上清液后生理盐水重悬沉淀,重复离心洗涤3次,0.9% NaCl重悬沉淀制得粪菌液,分装冻存管于- 80 ℃保存。该制剂为包含多种肠道微生物及代谢产物的复合菌群悬液,未进行单菌分离纯化或活菌浓度定量。
1.4 研究设计采用随机数字表法将大鼠分为Con组(n=20)、HS组(n=36)及HS+FMT组(n=36),每日记录体重。HS、HS+FMT组每日于39 ℃环境暴露2 h建立HS模型,连续7 d[13],造模期间禁食禁水;Con组置于22 ℃常温环境。非造模时段所有大鼠常规饲养、自由进食饮水。每日造模结束后,HS+FMT组灌胃1 mL新鲜粪菌液,Con、HS组给予等量生理盐水,干预周期7 d。造模过程中每10 min采用数字体温计检测大鼠直肠2 cm处肛温,观察大鼠生存状态。
1.5 样本采集造模结束后,大鼠置于22 ℃环境恢复3 h,采用颈椎脱臼法处死。心脏穿刺采集血液,3 000 r/min离心15 min,分离血清置于- 80 ℃保存备用;快速分离空肠、回肠及结肠组织,4% 多聚甲醛固定用于病理学检测;截取部分结肠组织以2.5%戊二醛4 ℃固定,用于透射电镜超微结构观察;收集盲肠远端5 cm左右的粪便,液氮速冻后于-80 ℃保存。
1.6 炎症因子和肠道屏障功能检测采用ELISA法检测血清IL-6、IL-1β、TNF-α炎症因子水平;通过比色法检测血清D-乳酸、肠型脂肪酸结合蛋白(Intestinal Fatty Acid Binding Protein, I-FABP)及内毒素含量,分别于450 nm、545 nm波长测定吸光度并计算浓度。采用荧光法检测4 KDa异硫氰酸荧光素标记葡聚糖苷(4 kD fluorescein isothiocyanate, FITC-dextran, FD4)含量,于485 nm激发、528 nm发射波长下测定荧光强度,评估肠道屏障通透性。
1.7 组织病理学检查肠道组织经多聚甲醛固定、脱水透明、石蜡包埋后制备3~5 μm切片,行苏木精-伊红染色封片;显微镜与切片扫描仪观察,CaseViewer软件分析并采集图像。
1.8 透射电镜检查结肠组织经戊二醛、锇酸双重固定,脱水树脂包埋后制备50~70 nm超薄切片;醋酸铀-柠檬酸铅双染,透射电镜下观察,配套CCD相机采集超微结构图像。
1.9 粪便菌群分析提取粪便微生物DNA并检测纯度,采用338F/806R引物扩增16S rRNA V3-V4区,同一样本3份PCR产物合并纯化后上机MiSeq测序。原始序列质控聚类OTU,依托SILVA数据库完成物种注释;QIIME2分析群落多样性,LEfSe筛选LDA≥4.0的差异菌群。
1.10 SCFAs检测粪便样本冰浴匀浆、离心过滤后低温保存;配制梯度SCFAs标准品绘制标准曲线(R2≥0.99),采用DB-FFAP色谱柱上机检测,依据曲线计算样本含量,每组设置3个平行,相对标准偏差RSD≤5%为有效数据。
1.11 统计学方法采用GraphPad Prism 10.0软件进行数据统计分析,计量资料以均数±标准差(x±s)表示。多组计量资料组间比较先行单因素方差分析;方差齐性满足时采用Tukey检验进行事后两两比较;方差不齐时采用Kruskal-Wallis H检验进行整体比较,事后两两比较采用Dunn t检验。生存率采用Log-rank检验,并绘制Kaplan-Meier生存曲线。16S rRNA测序α多样性采用Kruskal-Wallis检验,以Dunn's t test进行组间两两比较;β多样性基于Bray-Curtis距离开展主坐标分析(PCoA),并采用PERMANOVA检验组间群落差异。以P<0.05为差异有统计学意义,箱线图由GraphPad Prism 10.0软件绘制。
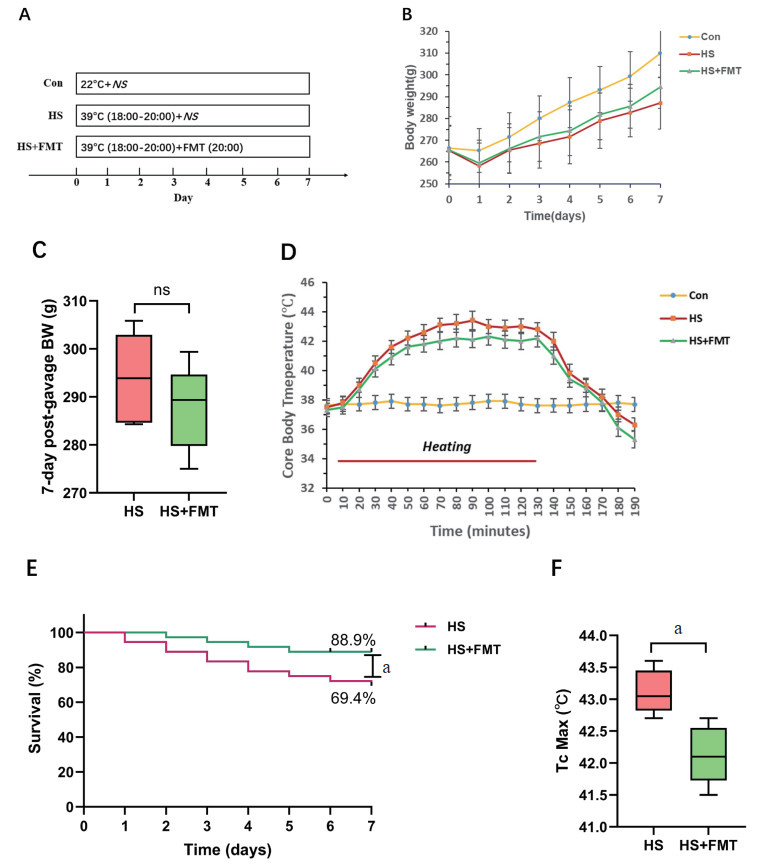
2 结果 2.1 FMT对HS大鼠的干预效应Con组大鼠体重呈平稳增长趋势,而HS组与HS+FMT组大鼠体重均低于Con组(图 1B);进一步组间对比显示,HS组与HS+FMT组大鼠的体重差异无统计学意义[(287.1±11.9)g vs. (294.5±9.9)g,P>0.05,图 1C]。核心体温监测结果表明,经39℃热暴露处理后,HS+FMT组大鼠核心体温的上升幅度显著小于HS组,且停止热暴露后,其体温回落速度更快(图 1D);同时,HS+FMT组大鼠的最高核心体温显著低于HS组[(42.11±0.45)℃ vs. (43.13±0.33)℃,P<0.05,图 1F]。生存分析结果显示,HS+FMT组大鼠的生存率显著高于HS组(88.9% vs. 69.4%,P=0.039,图 1E)。
|
| 注:A为实验分组与流程图;B为各组大鼠体重随时间的动态变化(n=12);C为热暴露7 d后,HS组与HS+FMT组大鼠的体重对比;D为各组大鼠核心体温随时间的变化曲线(n=8);E为HS组与HS+FMT组大鼠7 d生存率的Kaplan-Meier曲线比较(n=36);F为HS组与HS+FMT组大鼠最高核心体温的比较。与HS组比较,nsP>0.05,aP<0.05 图 1 FMT对HS大鼠模型的干预效果 Fig 1 Intervention effect of FMT on HS rat models |
|
|
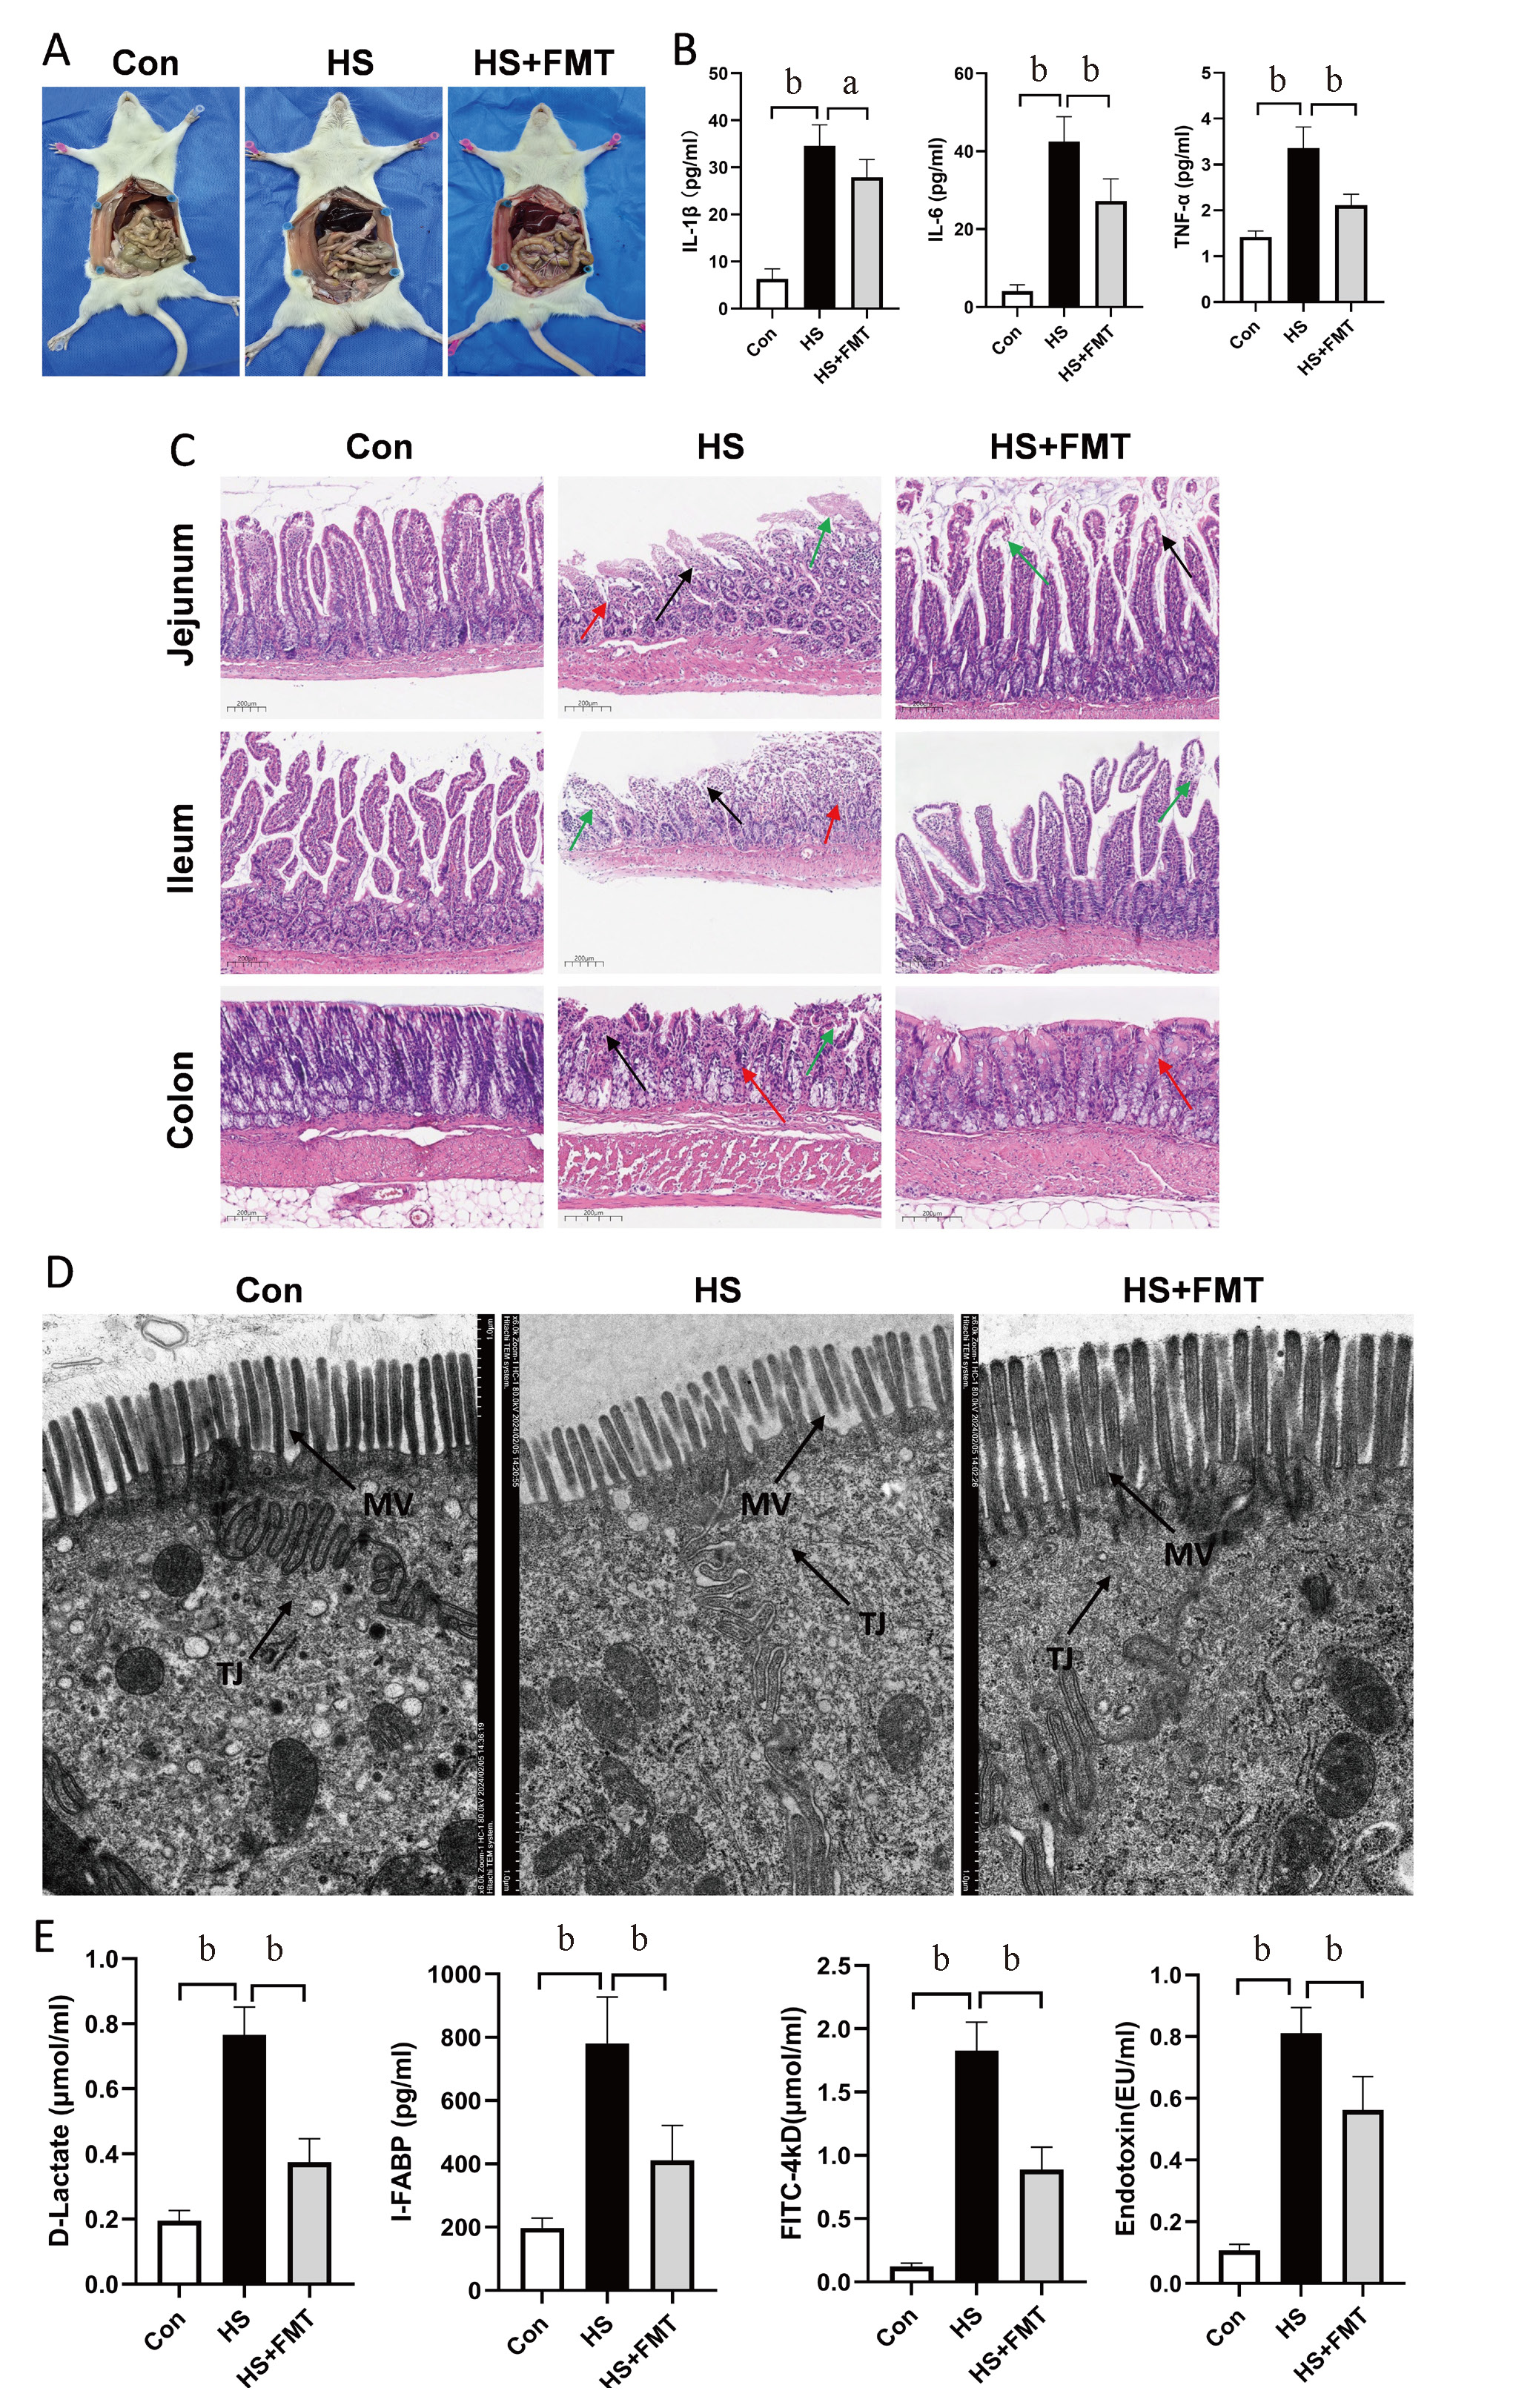
与Con组相比,HS组大鼠腹腔明显充血水肿,且血清促炎因子IL-1β、IL-6、TNF-α水平均显著升高(P<0.001);经FMT干预后,HS+FMT组腹腔充血水肿明显减轻,上述炎症因子水平较HS组显著降低(IL-1β:P<0.01;IL-6、TNF-α:P<0.001)(图 2A、B)。肠道病理切片结果显示,HS组大鼠空肠、回肠及结肠黏膜结构破坏、绒毛萎缩,肠上皮细胞微绒毛排列紊乱、线粒体肿胀;而FMT干预后,HS+FMT组的肠道黏膜结构及上皮细胞超微结构均得到明显修复(图 2C、D)。同时,HS组大鼠血清肠道屏障损伤标志物(D-乳酸、I-FABP、FITC-4kD及内毒素)水平均显著升高(P<0.001);FMT干预后,上述标志物水平较HS组显著降低(P<0.001)(图 2E)。
|
| 注:A为各组大鼠肠道组织形态;B为各组大鼠血清炎症因子水平;C为空肠、回肠和结肠组织的HE染色结果(×200倍)。红色、绿色、黑色箭头分别指示炎症浸润、组织坏死及充血/出血等典型病理改变(n=6);D为结肠上皮细胞的透射电镜图像(×6000倍),显示细胞核、微绒毛(MV)及紧密连接(TJ)结构(n=3);E为各组大鼠肠道屏障损伤标志物水平。注:数据以(x±s)表示。与HS组相比较,aP<0.01,bP<0.001 图 2 FMT改善HS大鼠肠道损伤、降低全身炎症与肠道通透性 Fig 2 FMT alleviates intestinal injury and reduces systemic inflammation and intestinal permeability in HS rats |
|
|
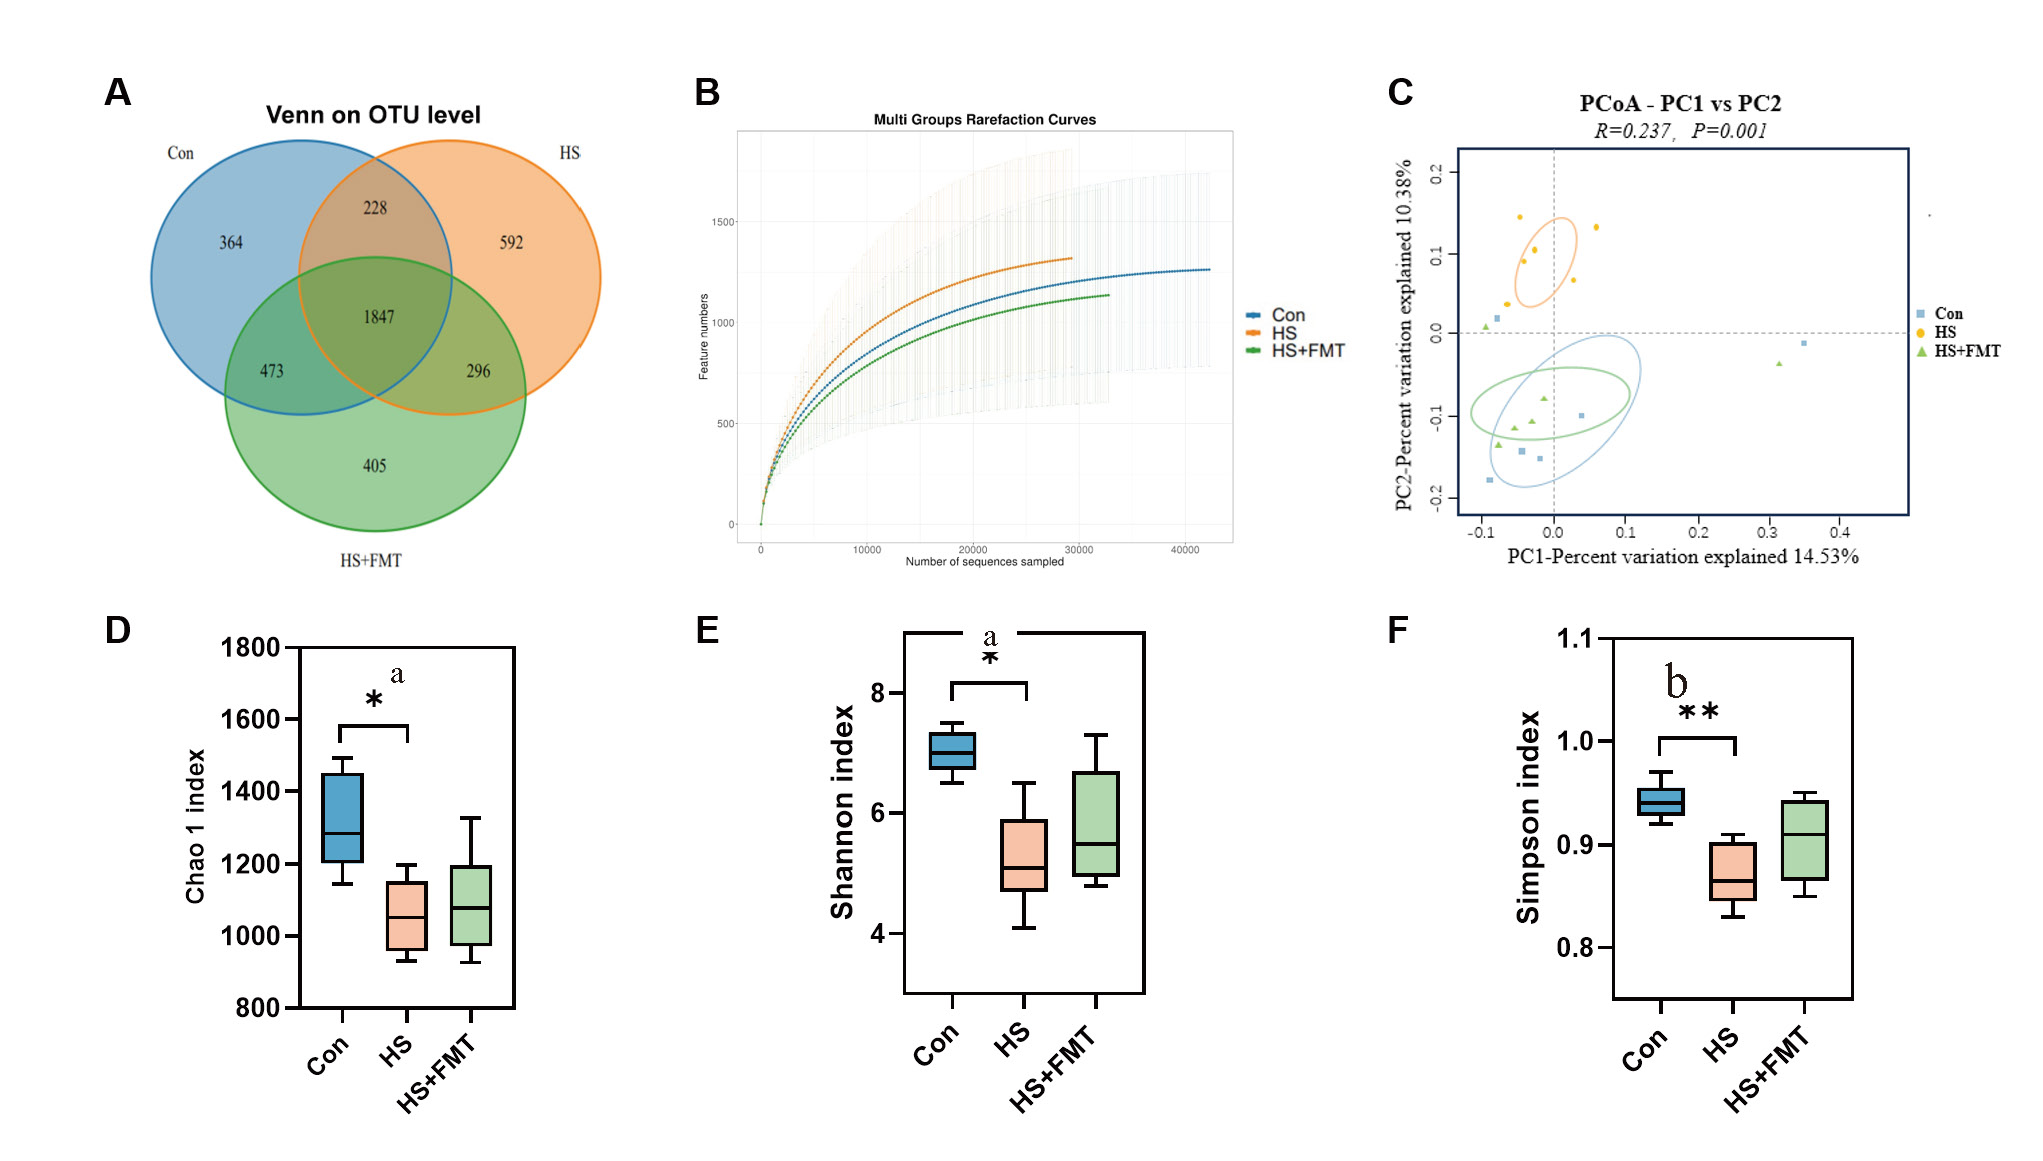
OUT水平的维恩图(图 3A)显示:3组共享1 847个OTU,其中Con、HS、HS+FMT组的独有OUT数量分别为364、592和405个。Shannon指数稀释曲线(图 3B)趋于平缓,提示本研究的测序数据量已满足菌群多样性分析的需求。α多样性分析结果显示:HS组的Chao 1指数、Shannon指数及Simpson指数均显著低于Con组(P<0.05,图 3D-F),表明HS可降低大鼠肠道菌群的丰富度与多样性。β多样性的PCoA分析结果显示:HS组的菌群结构与Con组、HS+FMT组明显分离(R=0.237,P=0.001,图 3C),而FMT干预后的菌群结构向Con组靠拢,提示外源性菌群干预逆转了HS所致的菌群失调,供体来源的功能菌群可能在受体肠道内发挥了生态位占位与竞争性排斥效应。
|
| 注:A为维恩图;B为稀释曲线;C为β多样性分析;D~F为α多样性分析(n=6)。数据以(x±s)表示,与HS组相比较,aP<0.05,bP<0.01 图 3 FMT对HS大鼠肠道菌群组成及群落多样性的影响 Fig 3 Effects of FMT on intestinal microbiota composition and community diversity in HS rats |
|
|
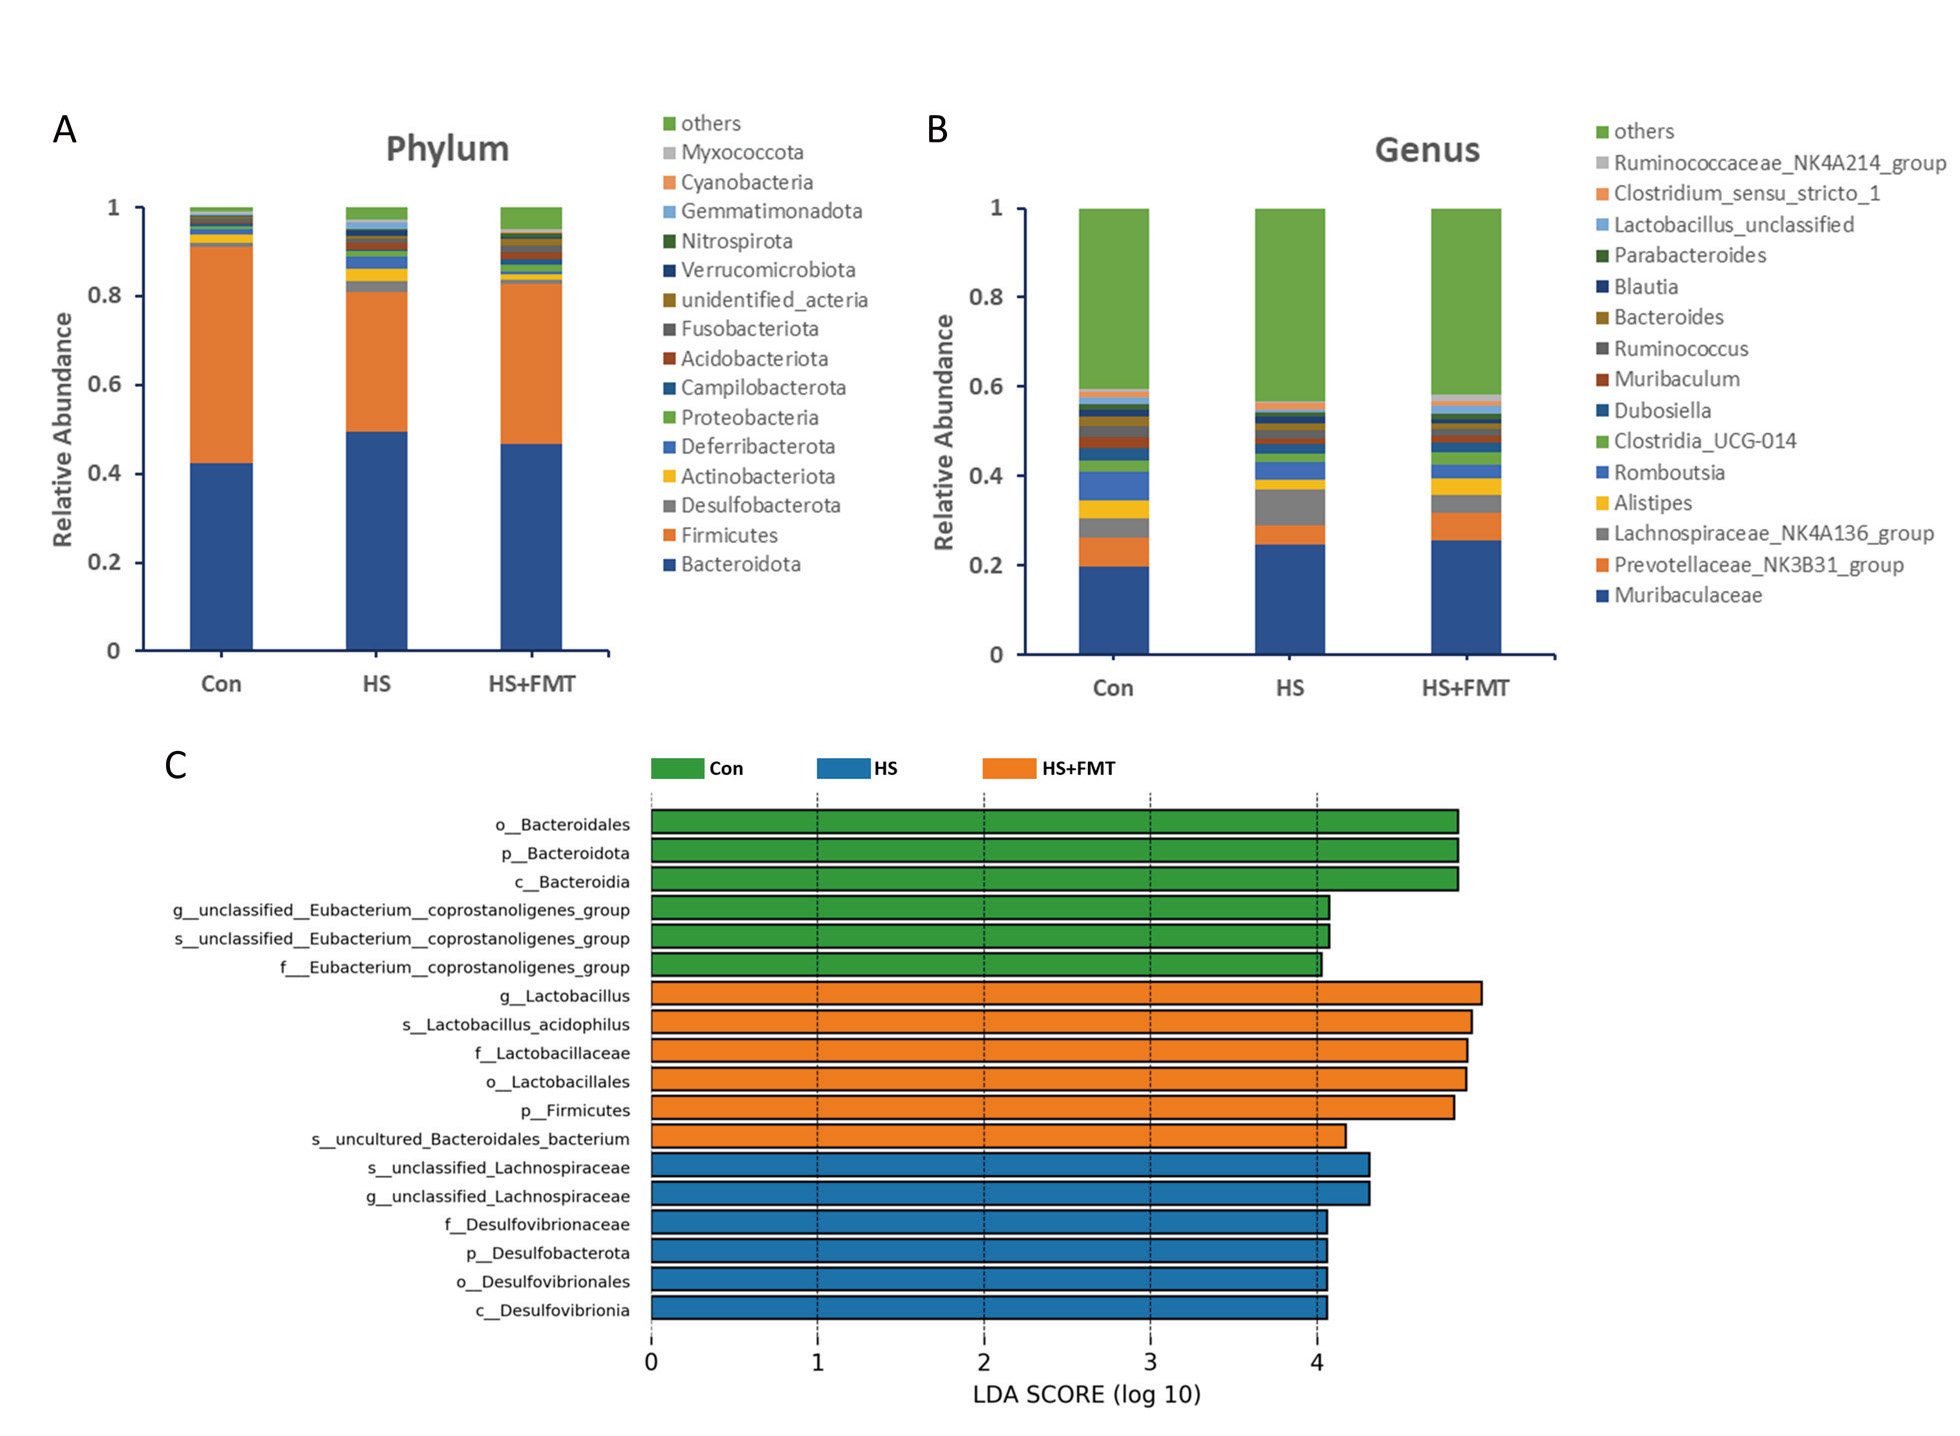
本研究选取门、属水平相对丰度排名前15的物种绘制柱状图:门水平的优势菌主要包括拟杆菌门(Bacteroidota)、厚壁菌门(Firmicutes)、脱硫杆菌门(Desulfobacterota)及放线菌门(Actinobacteriota)等;属水平的优势菌则以毛螺菌科(Muribaculaceae)、普雷沃菌科_NK3B31_group、毛螺菌科_NK4A136_group、别样杆菌属(Allistipes)及罗姆布茨菌属(Romboutsia)等为主(图 4A、B)。物种互作分析显示:Allistipes、鼠乳杆菌(Lactobacillus murinus)与克里斯滕森菌科(Christensenellaceae)呈现正相互作用,提示HS模型中,FMT干预可特异度提升这些菌的相对丰度;反之,大肠杆菌(Escherichia coli)、狭义梭菌属1(Clostridium sensu stricto_1)与奇异变形杆菌(Proteus mirabilis)呈现负相互作用,表明FMT可降低HS状态下这些菌的丰度。线性判别分析(LEfSe)结果(LDA score≥4,图 4C)与物种组成分析趋势一致,进一步验证了FMT对HS大鼠肠道差异菌群的调控作用。
|
| 注:A、B分别为门、属水平相对物种丰富度;C为LEfSe分析(LDA score>4.0) 图 4 大鼠肠道菌群的物种组成及差异分析 Fig 4 Species composition and differential analysis of intestinal microbiota in rats |
|
|
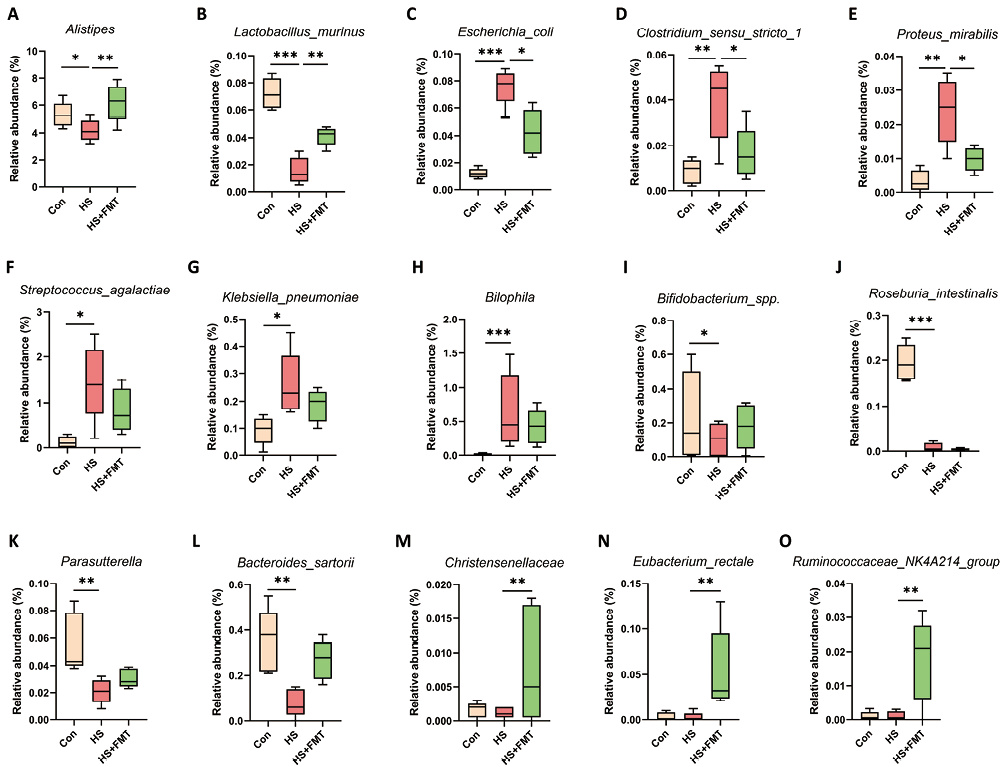
组间配对比较结果显示:HS可显著降低别样杆菌属(Allistipes)与鼠乳杆菌(Lactobacillus murinus)的相对丰度,同时显著升高大肠杆菌(Escherichia coli)、狭义梭菌属1(Clostridium sensu stricto_1)及奇异变形杆菌(Proteus mirabilis)的丰度(P<0.05);而FMT干预可大幅逆转上述菌群的丰度变化(P<0.05,图 5A-E)。此外,HS还可显著增加无乳链球菌(Streptococcus agalactiae)、肺炎克雷伯菌(Klebsiella pneumoniae)及嗜胆菌属(Bilophila)的丰度,同时显著降低双歧杆菌属(Bifidobacterium spp.)、肠道罗斯拜瑞氏菌(Roseburia intestinalis)、副萨特氏菌属(Parasutterella)及萨氏拟杆菌(Bacteroides sartorii)的丰度(P<0.05,图 5F-L)。值得注意的是,FMT干预可显著提升克里斯滕森菌科(Christensenellaceae)、直肠真杆菌(Eubacterium rectale)及瘤胃菌科_NK4A214_group的相对丰度(P<0.05,图 5M~O)。
|
| 注:A~O为15个具有代表性的关键菌属在各组中的相对丰度,包括Alistipes、Lactobacillus murinus、Escherichia coli、Clostridium sensu stricto 1、Proteus mirabilis、Streptococcus agalactiae、Klebsiella pneumoniae、Bilophila、Bifidobacterium spp、Roseburia intestinalis、Parasutterella、Bacteroides sartorii、Christensenellaceae、Eubacterium rectale和Ruminococcaceae NK4A214 group,n=6。数据以(x±s)表示,与HS组相比较,aP<0.05,bP<0.01,cP<0.001 图 5 各组大鼠肠道关键差异菌属相对丰度比较 Fig 5 Comparison of relative abundance of key differential intestinal genera in rats of each group |
|
|
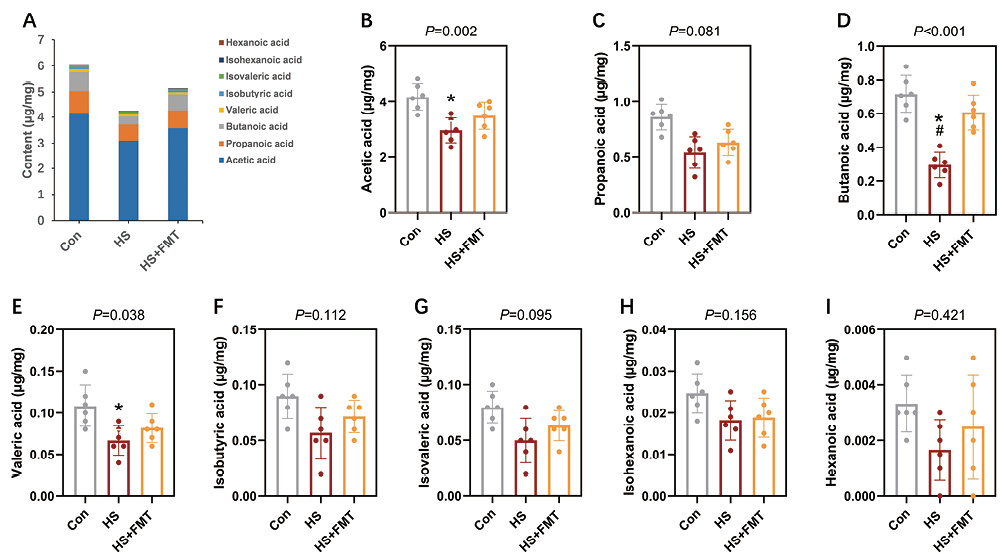
与Con组相比,HS组大鼠粪便中总SCFAs含量显著降低,而HS+FMT干预可部分逆转这一趋势。进一步分析各SCFAs组分发现,HS组乙酸(P=0.002)、丁酸(P<0.001)和戊酸(P=0.038)含量均显著低于Con组,而HS+FMT干预可使上述SCFAs水平恢复至接近Con组,其中丁酸的恢复有统计学意义(P<0.001);丙酸、异丁酸、异戊酸、异己酸及己酸在各组间均差异无统计学意义(P>0.05)。
3 讨论HS是极端高温暴露引发的严重急性重症,高病死率与全身炎症反应综合征及多器官损伤密切相关,肠道屏障功能障碍与肠道菌群失衡是其病理进程的核心环节[14]。本研究系统探讨FMT对HS大鼠的干预效果及机制,证实FMT可通过调节肠道菌群结构、SCFAs代谢、保护肠道屏障完整性,显著减轻HS引发的全身炎症反应,降低核心体温并提高生存率,为HS临床防治提供了新的试验依据与干预思路。
既往研究证实FMT可重塑肠道菌群稳态、改善肠道健康[15],在复发性艰难梭菌感染、代谢性疾病等中均展现出治疗潜力[16]。本研究中,HS模型大鼠高温暴露后核心体温骤升至43℃以上,生存率仅69.4%,血清IL-1β、IL-6、TNF-α等促炎因子水平显著升高,与既往HS引发全身过度炎症反应的特征一致[17-18];而FMT干预后,大鼠最高核心体温显著降低,生存率提升至88.9%,促炎因子水平大幅下调,提示FMT可有效抑制HS所致的炎症瀑布效应,阻断炎症信号级联放大,减轻全身脏器损伤,改善大鼠预后。
本研究采用连续7 d HS造模后即刻行FMT干预的方案,既契合HS病理特性,又贴近临床实际救治场景:该方案摒弃传统“先FMT再造模”的预处理模式,选择HS损伤明确后干预,与临床HS患者热损伤发生后接受治疗的实际相符,更具临床参考价值;同时,连续7 d重复造模可模拟临床持续性高温暴露,充分诱导稳定的全身炎症与肠道损伤表型,避免单次造模损伤轻微、自限性强的局限,为客观评价FMT疗效提供可靠模型[19];且肠道菌群定植、稳态重建及肠道屏障修复均需一定周期,连续7 d FMT干预可持续补充有益菌、抑制致病菌,确保菌群结构根本性重塑,为肠道黏膜修复提供稳定微环境,有效阻断“肠道损伤-菌群失衡-全身炎症”的恶性循环[20],这也与“连续FMT可提升菌群定植效率与治疗效果”的结论一致[21],为临床制定HS微生物干预疗程提供了试验参考。
|
| 注:A为各组总SCFAs含量分布;B~I分别为大鼠粪便中乙酸、丙酸、丁酸、戊酸、异丁酸、异戊酸、异己酸及己酸的含量。数据以(x±s)表示,n=6。与Con组比较,aP < 0.05;与HS+FMT组比较,bP < 0.001 图 6 大鼠粪便中SCFAs含量 Fig 6 Contents of SCFAs in rat feces |
|
|
肠道作为HS病理损伤的“始动器官”,其屏障功能完整性直接决定全身炎症反应的严重程度[21]。本研究通过血液标志物检测、病理形态观察及透射电镜分析发现,HS大鼠肠道黏膜结构破坏、绒毛萎缩,肠上皮细胞微绒毛排列紊乱,血清D-乳酸、I-FABP、FITC-4kd及内毒素水平显著升高,提示高温应激导致肠道屏障功能受损、通透性增加,内毒素及肠道内容物易位入血,成为触发全身炎症反应的重要诱因[22];而FMT干预后,大鼠肠道病理损伤明显修复,肠道屏障损伤标志物水平显著降低,提示FMT可有效保护HS大鼠肠道屏障完整性,减少内毒素入血,切断“肠-器官轴”介导的炎症放大循环,这与FMT在其他炎症性疾病中通过增强肠道屏障发挥保护作用的机制相符[23]。
肠道菌群失衡是HS引发肠道屏障功能障碍的重要病理基础[24]。本研究16S rRNA测序结果显示,HS大鼠肠道菌群多样性显著降低,Chao 1、Shannon及Simpson指数均低于健康对照组,菌群整体结构与Con组、HS+FMT组差异有统计学意义;物种组成上,alistipes、lactobacillus murinus等有益菌相对丰度显著降低,escherichia coli、clostridium sensu stricto 1、proteus mirabilis等潜在致病菌丰度显著升高。其中,alistipes可通过产生SCFAs调节肠道pH、抑制致病菌生长并增强肠道屏障[25],lactobacillus murinus可调节肠道局部免疫、维持紧密连接蛋白表达,发挥屏障保护作用[26];而escherichia coli、clostridium sensu stricto 1过度增殖可通过产生内毒素、破坏菌群稳态加重肠道黏膜损伤[27]。FMT干预后,受体大鼠肠道内alistipes、lactobacillus murinus等产SCFA有益菌的丰度显著回升,同时致病菌丰度下降,提示FMT通过引入外源性功能菌群,重塑了肠道微生态平衡,实现了“以菌制菌”的稳态重建,这与FMT在复发性艰难梭菌感染、炎症性肠病中的核心作用机制一致[26]。
肠道菌群代谢产物SCFAs的紊乱,是HS大鼠菌群失衡与肠道屏障损伤的重要关联环节。本研究GC-MS检测结果显示,与Con组相比,HS组大鼠粪便总SCFAs含量显著降低,乙酸、丁酸、戊酸等主要组分含量均显著下降,而FMT干预可有效逆转该代谢紊乱,使上述SCFA组分水平恢复至接近健康对照组,且丁酸的恢复具有统计学意义。结合菌群测序结果来看,HS组中产SCFA相关菌属(如alistipes、lactobacillus murinus)丰度的下降与SCFAs水平的降低在变化趋势上具有一致性,而FMT后这些菌属丰度的回升恰与SCFAs水平的恢复相伴出现,提示FMT可能通过富集上述产SCFA菌群来恢复肠道SCFAs的合成代谢。SCFAs作为肠道菌群核心代谢产物,可通过多种途径维护肠道屏障、调节炎症反应:既是肠上皮细胞主要能量来源,可促进上皮细胞增殖修复,上调紧密连接蛋白表达,降低肠道通透性;还可通过激活GPR41、GPR43等信号通路,抑制促炎因子释放、促进抗炎因子IL-10分泌,发挥全身抗炎作用[28];其中丁酸生物活性最强,可直接抑制NF-κB信号通路激活,阻断炎症信号传导[29]。HS大鼠有益菌丰度降低导致SCFAs合成减少,削弱了其肠道屏障保护及抗炎效应,形成“菌群失衡-SCFAs合成减少-肠道屏障损伤-全身炎症加重”的恶性循环;而FMT通过富集Alistipes、鼠乳杆菌等产SCFA有益菌,恢复肠道SCFAs合成能力,可能是其改善HS大鼠肠道屏障功能、减轻全身炎症的重要机制。
本研究存在以下局限性:第一,未对移植粪菌液进行微生物组成测序与活菌计数,难以明确供体菌群的活性状态、活菌比例及菌种含量,亦无法评估剂量-效应关系;第二,未鉴定FMT中发挥核心作用的特定功能菌株或代谢产物,亦未验证SCFAs调控肠道屏障及炎症反应的具体信号通路;第三,菌群与SCFAs代谢的关联分析仅限于趋势描述,未进行菌属丰度与代谢物含量的统计学相关性分析。
综上所述,本研究证实FMT可通过调节肠道菌群结构、富集产SCFA有益菌、改善SCFAs代谢,维持肠道屏障功能完整性,减少内毒素入血,有效抑制HS大鼠全身炎症反应,降低核心体温并提高生存率。本研究设计的“连续7 d HS造模后即刻FMT干预”方案,与HS病理累积效应、肠道菌群定植规律及屏障修复周期契合,为临床制定HS微生物干预策略提供了实验参考,也为HS防治提供了新的思路与实验基础。
利益冲突 所有作者声明无利益冲突
作者贡献声明 谢江波:设计实验、实施研究、论文撰写;丁舒畅、温佩珊:实验操作、采集数据;薛正彪、王捷:数据收集及整理;温燕华:论文修改、研究指导、提供研究经费
| [1] | Ebi KL, Capon A, Berry P, et al. Hot weather and heat extremes: health risks[J]. Lancet, 2021, 398(10301): 698-708. DOI:10.1016/s0140-6736(21)01208-3 |
| [2] | Zhong L, Shuai FF, Wang CL, et al. Serum procalcitonin levels are associated with rhabdomyolysis following exertional heatstroke: an over 10-year intensive care survey[J]. World J Emerg Med, 2024, 15(1): 23. DOI:10.5847/wjem.j.1920-8642.2024.02.009 |
| [3] | Ebi KL, Vanos J, Baldwin JW, et al. Extreme weather and climate change: population health and health system implications[J]. Annu Rev Public Health, 2021, 42: 293-315. DOI:10.1146/annurev-publhealth-012420-105026 |
| [4] | Song J, Pan RB, Yi WZ, et al. Ambient high temperature exposure and global disease burden during 1990–2019: an analysis of the Global Burden of Disease Study 2019[J]. Sci Total Environ, 2021, 787: 147540. DOI:10.1016/j.scitotenv.2021.147540 |
| [5] | Birkun AA. First aid for heat emergencies: gaps and inconsistencies in existing guidelines[J]. World J Emerg Med, 2026, 17(1): 76. DOI:10.5847/wjem.j.1920-8642.2026.020 |
| [6] | Donnelly MC, Talley NJ. Effects of climate change on digestive health and preventative measures[J]. Gut, 2023, 72(12): 2199-2201. DOI:10.1136/gutjnl-2023-331187 |
| [7] | Wang YC, Jin XY, Lei Z, et al. Gastrointestinal manifestations of critical ill heatstroke patients and their associations with outcomes: a multicentre, retrospective, observational study[J]. World J Gastroenterol, 2024, 30(4): 346-366. DOI:10.3748/wjg.v30.i4.346 |
| [8] | Li L, Tan HP, Zou ZM, et al. Preventing necroptosis by scavenging ROS production alleviates heat stress-induced intestinal injury[J]. Int J Hyperth, 2020, 37(1): 517-530. DOI:10.1080/02656736.2020.1763483 |
| [9] | Du LW, Xu BQ, Xun K, et al. Glutamine supplementation attenuates intestinal apoptosis by inducing heat shock protein 70 in heatstroke rats[J]. World J Emerg Med, 2023, 14(1): 37. DOI:10.5847/wjem.j.1920-8642.2023.011 |
| [10] | Li L, Wang M, Chen JK, et al. Preventive effects of Bacillus licheniformis on heat stroke in rats by sustaining intestinal barrier function and modulating gut microbiota[J]. Front Microbiol, 2021, 12: 630841. DOI:10.3389/fmicb.2021.630841 |
| [11] | Wu ZH, Huang SM, Li TT, et al. Gut microbiota from green tea polyphenol-dosed mice improves intestinal epithelial homeostasis and ameliorates experimental colitis[J]. Microbiome, 2021, 9(1): 184. DOI:10.1186/s40168-021-01115-9 |
| [12] | Zhao Z, Ning JW, Bao XQ, et al. Fecal microbiota transplantation protects rotenone-induced Parkinson's disease mice via suppressing inflammation mediated by the lipopolysaccharide-TLR4 signaling pathway through the microbiota-gut-brain axis[J]. Microbiome, 2021, 9(1): 226. DOI:10.1186/s40168-021-01107-9 |
| [13] | Liu XY, Liu CC, et al. Fecal microbiota transplantation alleviated heat-induced colonic tissue damage, epithelial apoptosis, and oxidative stress[J]. Appl Environ Microbiol, 2025, 91(10): e00976-e00925. DOI:10.1128/aem.00976-25 |
| [14] | 全军热射病防治专家组, 中国老年保健协会急诊医学专业委员会, 海南省医学会急诊医学分会, 等. 热射病救治体系建设标准专家共识(2025)[J]. 中华急诊医学杂志, 2025, 34(3): 326-334. DOI:10.3760/cma.j.issn.1671-0282.2025.03.008 |
| [15] | Karimi M, Shirsalimi N, Hashempour Z, et al. Safety and efficacy of fecal microbiota transplantation (FMT) as a modern adjuvant therapy in various diseases and disorders: a comprehensive literature review[J]. Front Immunol, 2024, 15: 1439176. DOI:10.3389/fimmu.2024.1439176 |
| [16] | Liu YL, Ding KN, Shen XL, et al. Chronic heat stress promotes liver inflammation in broilers via enhancing NF-κB and NLRP3 signaling pathway[J]. BMC Vet Res, 2022, 18(1): 289. DOI:10.1186/s12917-022-03388-0 |
| [17] | Xia ZN, Zong Y, Zhang ZT, et al. Dexmedetomidine protects against multi-organ dysfunction induced by heatstroke via sustaining the intestinal integrity[J]. Shock, 2017, 48(2): 260-269. DOI:10.1097/shk.0000000000000826 |
| [18] | 孙正中, 江利亚, 孟冉, 等. 激活Pink1/Parkin通路减轻劳力型热射病大鼠急性肺损伤[J]. 中华急诊医学杂志, 2024, 33(7): 983-990. DOI:10.3760/cma.j.issn.1671-0282.2024.07.017 |
| [19] | Ba FR, Wang W, Huang YL, et al. Improving fecal transplantation precision for enhanced maturation of intestinal function in germ-free mice through microencapsulation and probiotic intervention[J]. Microbiome, 2025, 13(1): 212. DOI:10.1186/s40168-025-02204-9 |
| [20] | Peng G, Wang SS, Zhang HS, et al. Tremella aurantialba polysaccharides alleviate ulcerative colitis in mice by improving intestinal barrier via modulating gut microbiota and inhibiting ferroptosis[J]. Int J Biol Macromol, 2024, 281: 135835. DOI:10.1016/j.ijbiomac.2024.135835 |
| [21] | Lian PQ, Braber S, Garssen J, et al. Beyond heat stress: intestinal integrity disruption and mechanism-based intervention strategies[J]. Nutrients, 2020, 12(3): 734. DOI:10.3390/nu12030734 |
| [22] | Qu YF, Li XY, Xu FY, et al. Kaempferol alleviates murine experimental colitis by restoring gut microbiota and inhibiting the LPS-TLR4-NF-κB axis[J]. Front Immunol, 2021, 12: 679897. DOI:10.3389/fimmu.2021.679897 |
| [23] | Zhong S, Sun YQ, Huo JX, et al. The gut microbiota-aromatic hydrocarbon receptor (AhR) axis mediates the anticolitic effect of polyphenol-rich extracts from Sanghuangporus[J]. iMeta, 2024, 3(2): e180. DOI:10.1002/imt2.180 |
| [24] | 江利亚, 王娇, 张玉想. 肠道菌群和肠-肺轴在热射病中的作用[J]. 中国病理生理杂志, 2021, 37(12): 2293-2298. DOI:10.3969/j.issn.1000-4718.2021.12.024 |
| [25] | Mukohda M, Yano T, Matsui T, et al. Treatment with Ligilactobacillus murinus lowers blood pressure and intestinal permeability in spontaneously hypertensive rats[J]. Sci Rep, 2023, 13: 15197. DOI:10.1038/s41598-023-42377-7 |
| [26] | van Beurden YH, de Groot PF, van Nood E, et al. Complications, effectiveness, and long term follow-up of fecal microbiota transfer by nasoduodenal tube for treatment of recurrent Clostridium difficile infection[J]. UEG Journal, 2017, 5(6): 868-879. DOI:10.1177/2050640616678099 |
| [27] | Seufferlein T, Kleger A, Nitschmann S. Rezidivierende Clostridium-difficile-infektion: therapie mit duodenaler infusion von spenderfäzes[J]. Internist, 2014, 55(4): 455-459. DOI:10.1007/s00108-014-3483-0 |
| [28] | Mukohda M, Yano T, Matsui T, et al. Treatment with Ligilactobacillus murinus lowers blood pressure and intestinal permeability in spontaneously hypertensive rats[J]. Sci Rep, 2023, 13: 15197. DOI:10.1038/s41598-023-42377-7 |
| [29] | Segain JP, de la Blétière DR, Bourreille A, et al. Butyrate inhibits inflammatory responses through NFκB inhibition: implications for Crohn's disease[J]. Gut, 2000, 47(3): 397-403. DOI:10.1136/gut.47.3.397 |