 2026, Vol. 35


引用本文 |


脓毒症是宿主对感染反应失调所致多器官功能障碍综合征[1-2],约34%~46% 脓毒症患者会出现肝损伤,是患者病死率升高的独立危险因素[3]。脓毒症诱发肝损伤涉及一系列病理生理过程,包括:肝组织形态结构改变、NOD样受体热蛋白结构域相关蛋白3(NOD-like receptor thermal protein domain protein 3,NLRP3)炎症小体激活、免疫反应和细胞凋亡等[4]。肝细胞损伤后释放大量丙氨酸氨基转移酶(alanine aminotransferase,ALT)和天冬氨酸氨基转移酶(aspartate aminotransferase,AST)至循环系统中;免疫细胞如库普弗细胞被活化后可产生大量促炎细胞因子如白介素1β(interleukin-1β,IL-1β)、白介素6(interleukin-6,IL-6)、肿瘤坏死因子α(tumor necrosis factor alpha,TNF-α),肝窦内皮细胞和肝细胞表达细胞黏附分子1进一步损伤肝细胞,使肝细胞大量坏死[5-6]。因此控制炎症反应是治疗脓毒症诱发急性肝损伤的重要策略[7]。肝细胞作为肝脏核心功能单元,可通过旁分泌作用参与免疫调节和组织损伤修复[8-9]。在部分肝切除或化学性肝损伤模型中,肝细胞外泌体可通过递miR-122、miR-155抑制凋亡,促进肝细胞增殖,从而缓解肝损伤[10-12]。此外, 肝细胞外泌体(exosome,Exo)天然具备肝脏归巢特性, 其表面整合素谱系赋予了其精准的肝脏靶向能力 [13-14]。然而, 其对脓毒症诱发肝损伤的作用及机制尚不明确。本研究制备小鼠正常肝细胞系AML12来源的外泌体(A-Exos), 探讨其基本特性、体内分布和对脓毒症急性肝损伤的作用并初步探究其潜在机制。
1 材料与方法 1.1 A-Exos的分离与表征小鼠正常肝细胞系(AML-12)购自中国科学院上海生科院细胞库。使用DMEM高糖培养基(Gibco, C11995500BT), 添加10% 胎牛血清(BI, CO4001)和1% 青霉素-链霉素双抗(Solarbio, G4003)培养, 待细胞生长至70%~80%融合度时, 去除培养基, 磷酸盐缓冲液(Phosphate buffer saline, PBS)清洗三次后添加无外泌体血清培养基, 24 h后收集细胞上清液。上清液经4 ℃, 300 g, 离心10 min, 4 ℃, 2 000 g, 离心20 min, 去除细胞碎片, 4 ℃, 10 000 g, 离心30 min, 去除凋亡小体后, 使用0.22 μm真空过滤器过滤, 之后使用超速离心机(Beckman Optima XPN-100, 美国)4 ℃, 120 000 g, 离心70 min, 沉淀使用PBS重悬分装并保存于-80 ℃备用。使用透射电镜(JEM-1400FLASH, 日本)观察A-Exos形态; 纳米颗粒跟踪分析仪(NTA,ZetaVeiw, 德国)检测A-Exos大小和颗粒数; Western Blot检测外泌体标志性蛋白白细胞分化抗原9 (CD9, ab236630, abcam)、肿瘤易感基因101(TSG101, 28283-1-AP, proteintech)及凋亡连接基因-2-相互作用蛋白X (Alix, A25326, ABclonal)及阴性标志物高尔基体基质蛋白130(GM130, ab52649, abcam)的表达。
1.2 A-Exos的体内分布检测SPF级6-8周龄雄性C57BL/6小鼠购自长沙市天勤生物技术有限公司,饲养于温度(22 ± 2)℃、相对湿度(50 ± 10)%、12 h/12 h明暗的环境中实验动物自由摄取标准啮齿类动物维持饲料及灭菌饮用水,适应性喂养后进行实验(伦理审批号:2403659)。使用近红外亲脂性染料碳氰酸酯DiOC18 (7)(DiR,5 µmol/L,D12731,Invitrogen)标记后备用。将实验动物随机(随机数字法)分为2组:对照组(DiR)和DiR-Exos组,其中DiR-Exos组每只经尾静脉注射100 μg A-Exos,DiR组每只经尾静脉注射游离DiR染料。分别于注射后3 h、24 h麻醉处死小鼠,使用小动物活体成像系统(IVIS Lumina SeriesⅢ,美国)观察心、肝、脾、肺、肾组织荧光并定量分析。
1.3 动物造模及处理将小鼠随机分为5组: 对照组(NC)、模型组(LPS组)、A-Exos不同剂量干预组, 其中模型组腹腔注射10 mg / kg脂多糖(lipopolysaccharide, LPS)处理, A-Exos干预组每只经尾静脉分别注射A-Exos (25 μg、50 μg、100 μg), 30 min后腹腔注射LPS, 对照组腹腔注射PBS后经尾静脉注射等量PBS处理。24 h后取血清使用试剂盒(BC1565, 索莱宝)检测ALT和AST水平, 苏木精-伊红(H&E)染色评估肝组织病理学变化, 并根据肝组织坏死性炎症评分标准进行评分 [15]。Western blot检测NLRP3(15101S, Cell Signaling Technology, 美国) 及β-actin (AC026, ABclonal) 蛋白表达水平, 并使用Image J分析蛋白相对表达量
1.4 qRT一PCR检测促炎因子基因表达使用TRIzol法提取肝组织总RNA,逆转录试剂盒(R123-01,Vazyme,南京)逆转合成cDNA。使用SupRealQ Purple Universal SYBR qPCR Master Mix (U+)(Q41202,Vazyme,南京)根据说明书在Bio-Rad CFX384 PCR仪上进行cDNA扩增,反应结束后,以actin为内参,采用2-ΔΔCt法计算各基因相对表达量。本研究中使用的引物均由上海生工设计合成。见附表 1。
1.5 免疫组织化学染色和免疫荧光染色肝组织石蜡切片经脱蜡水化、抗原修复及3% H2O2阻断内源性过氧化物酶后, 以山羊血清封闭非特异性位点, 随后滴加裂解的半胱氨酸天冬氨酸蛋白酶-1(cleaved-caspase 1, p20, 1:100, PA5-99390, Invitrogen)4 ℃孵育过夜。继而以HRP标记兔二抗(1 : 20 000)室温孵育50 min, DAB显色, 苏木素复染细胞核于镜下观察。石蜡切片水化封闭后, 按多重染色试剂盒(abs50088, 爱必信, 中国)说明书操作行免疫荧光染色, 滴加小鼠含生长因子样模体粘液样激素样受体抗体(F4/80, ABclonal, 武汉)检测阳性细胞数, 并使用Image J分析肝组织蛋白表达水平。
1.6 统计学方法采用SPSS 29.0及GraphPad Prism 9.5.0进行统计学方法与作图。计量资料经Shapiro-Wilk检验证实符合正态分布,数据表示为均数±标准差(x±s)表示,两组间比较采用成组t检验,多组间比较采用单因素方差分析,然后进行LSD-t检验。以P<0.05认为差异具有统计学意义。
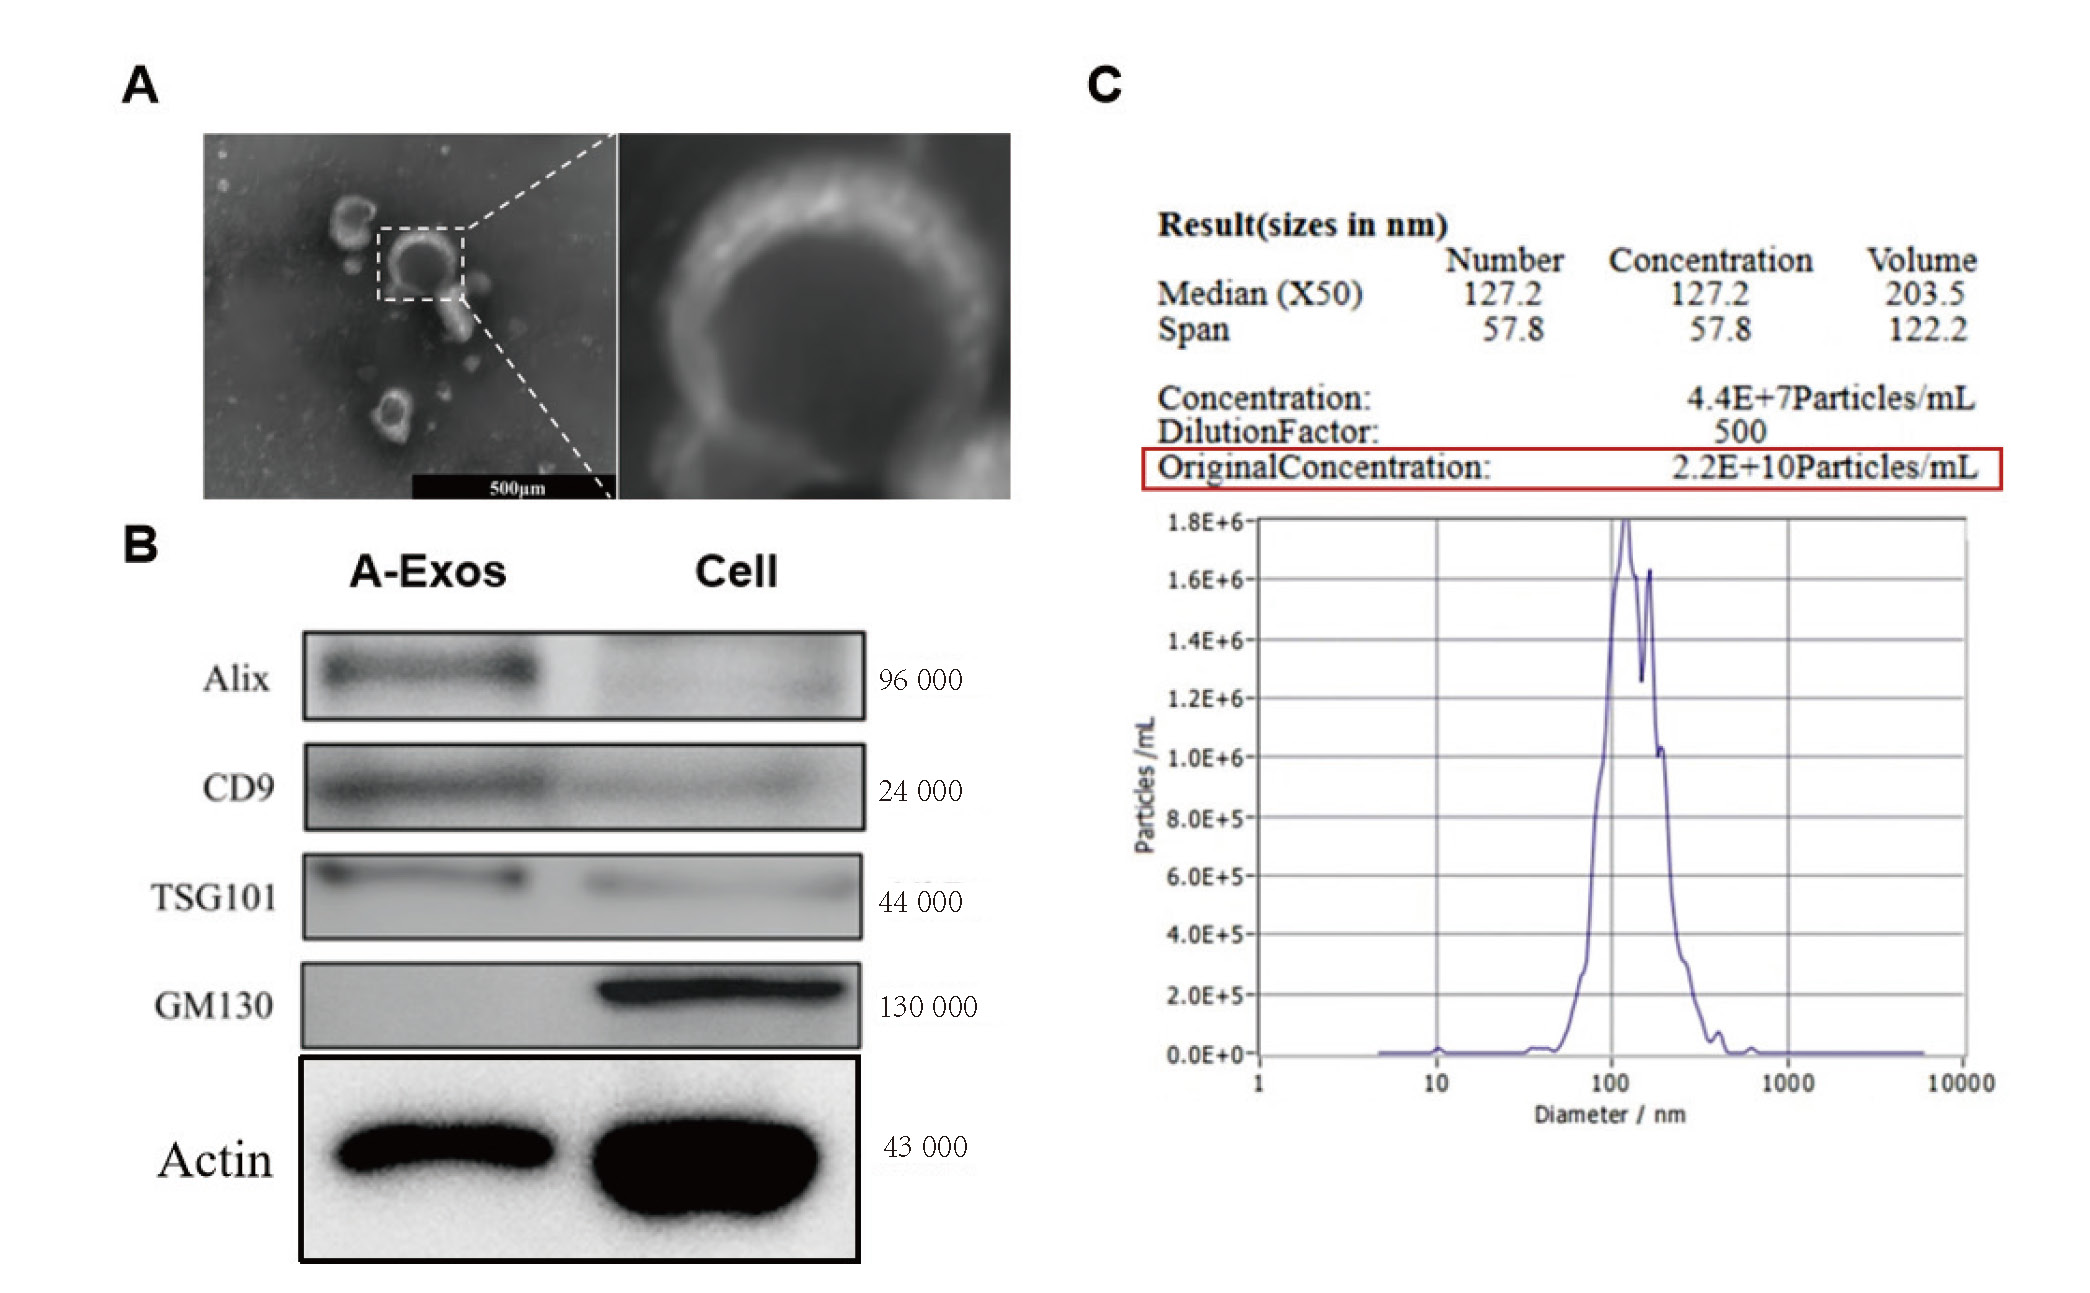
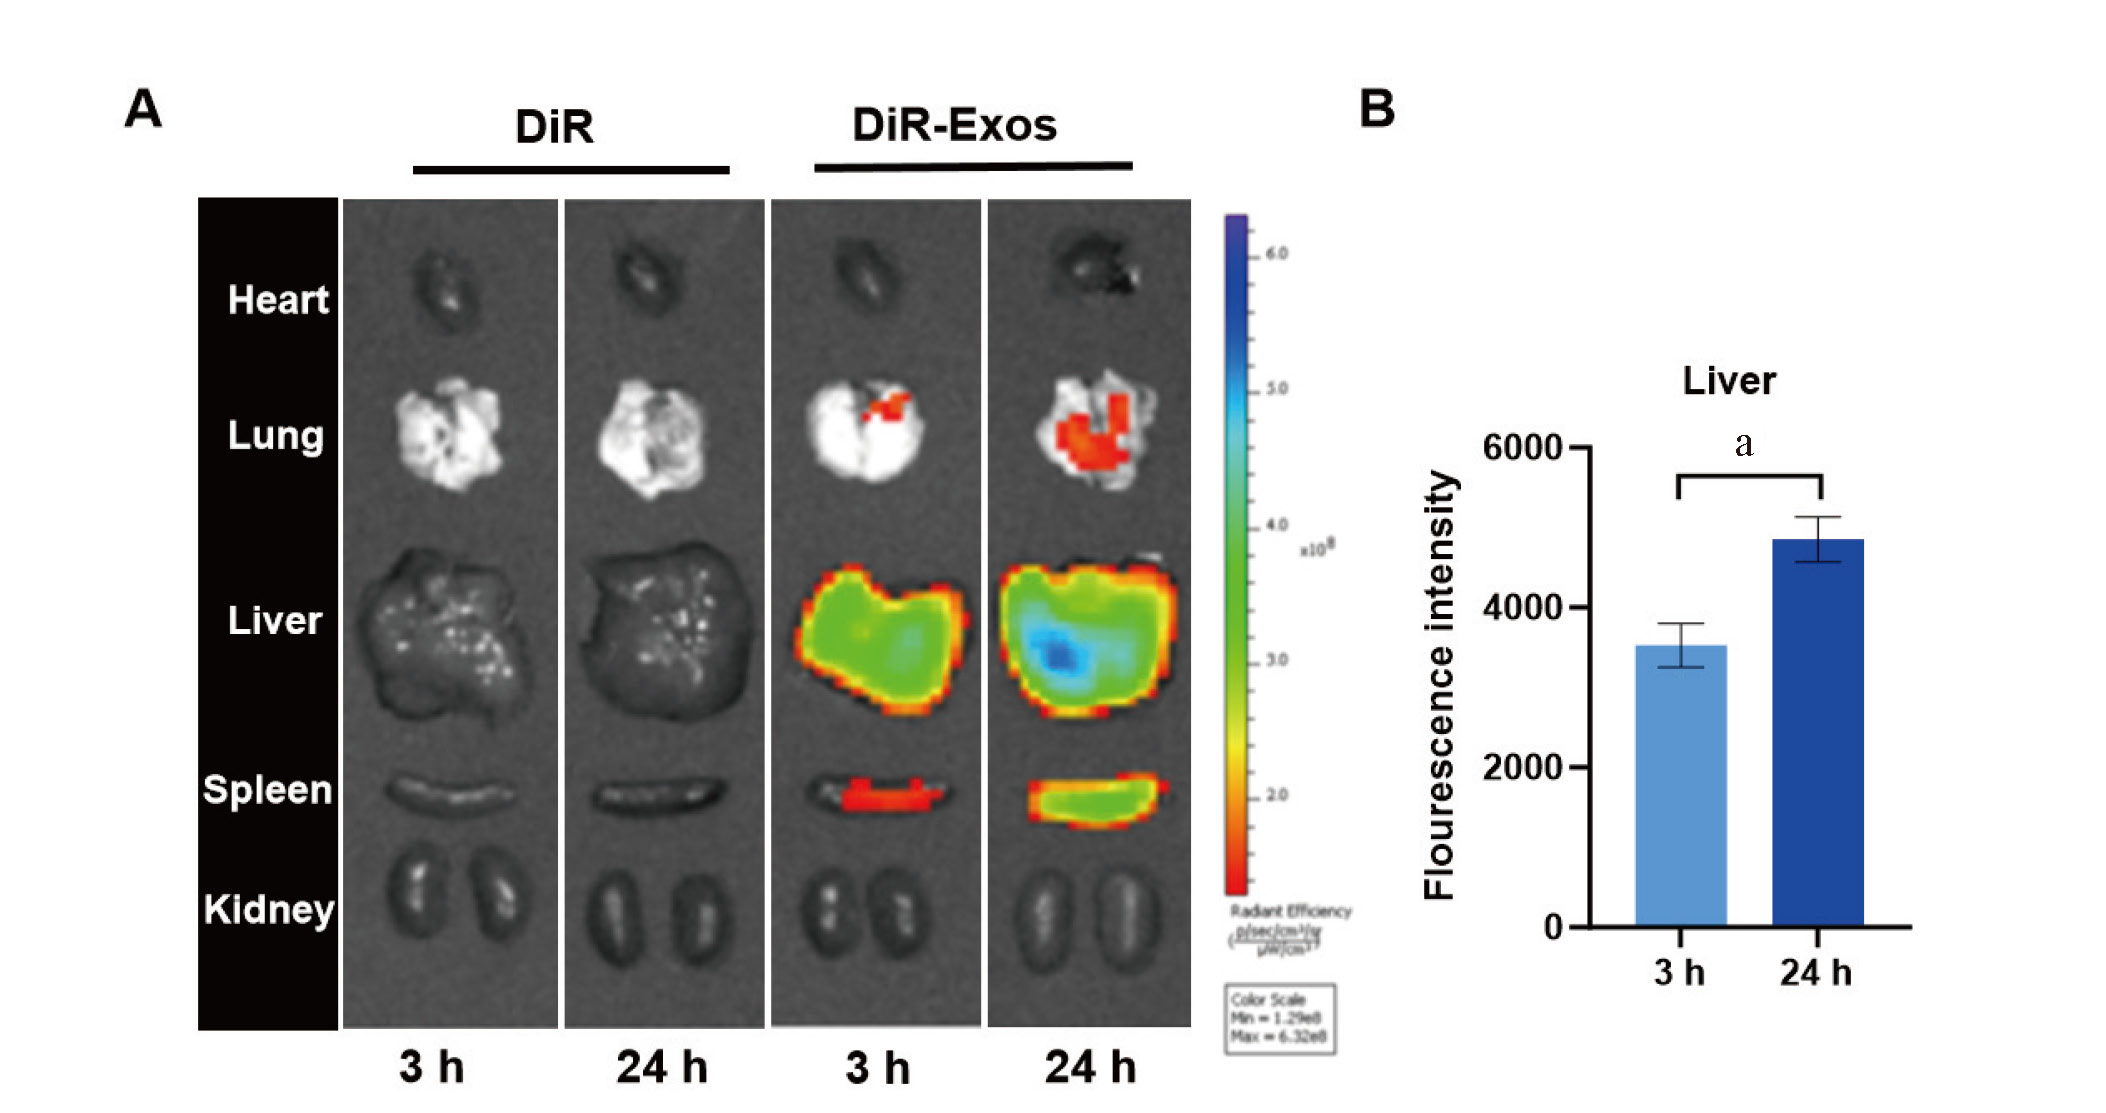
2 结果 2.1 A-Exos的表征与体内分布如图 1所示, 透射电镜下A-Exos呈典型“杯状或球形”双层膜结构(图 1A)。Western Blot结果显示, 与AML-12细胞相比, A-Exos除含有外泌体阳性标志物CD9、Alix和TSG101外, 还表达细胞骨架蛋白actin, 但不表达阴性标志物GM130, (图 1B)。NTA结果显示A-Exos平均大小为127.2 nm, 颗粒数为2.2×10¹⁰ Particles/mL (图 1C), 符合国际鉴定标准 [16], 提示A-Exos提取成功。将DiR标记的A-Exos通过尾静脉注射至正常小鼠体内, 小动物活体成像检测显示, 相对于DiR组, DiR-Exos组在肝脏、脾脏和肺上均有荧光信号, 且肝脏荧光信号最强(图 2A), 说明尾静脉注射A-Exos主要分布于血供丰富的肝脏组织, 这种注射方式具有天然的肝脏靶向性, 3 h与24 h荧光信号强度比较, 统计分析差异有统计学意义(P<0.01) (图 2B)。
|
| 注:A为TEM检测A-Exos形态;B为WB检测A-Exos中标志蛋白;C为NTA检测A-Exos大小分布 图 1 A-Exos表征 Fig 1 Characterization of A-Exos |
|
|
|
| 注:A为各器官荧光信号分布图;B为肝组织荧光强度统计图。aP < 0.01 图 2 A-Exos体内分布(n=3) Fig 2 Biodistribution of A-Exos(n=3) |
|
|
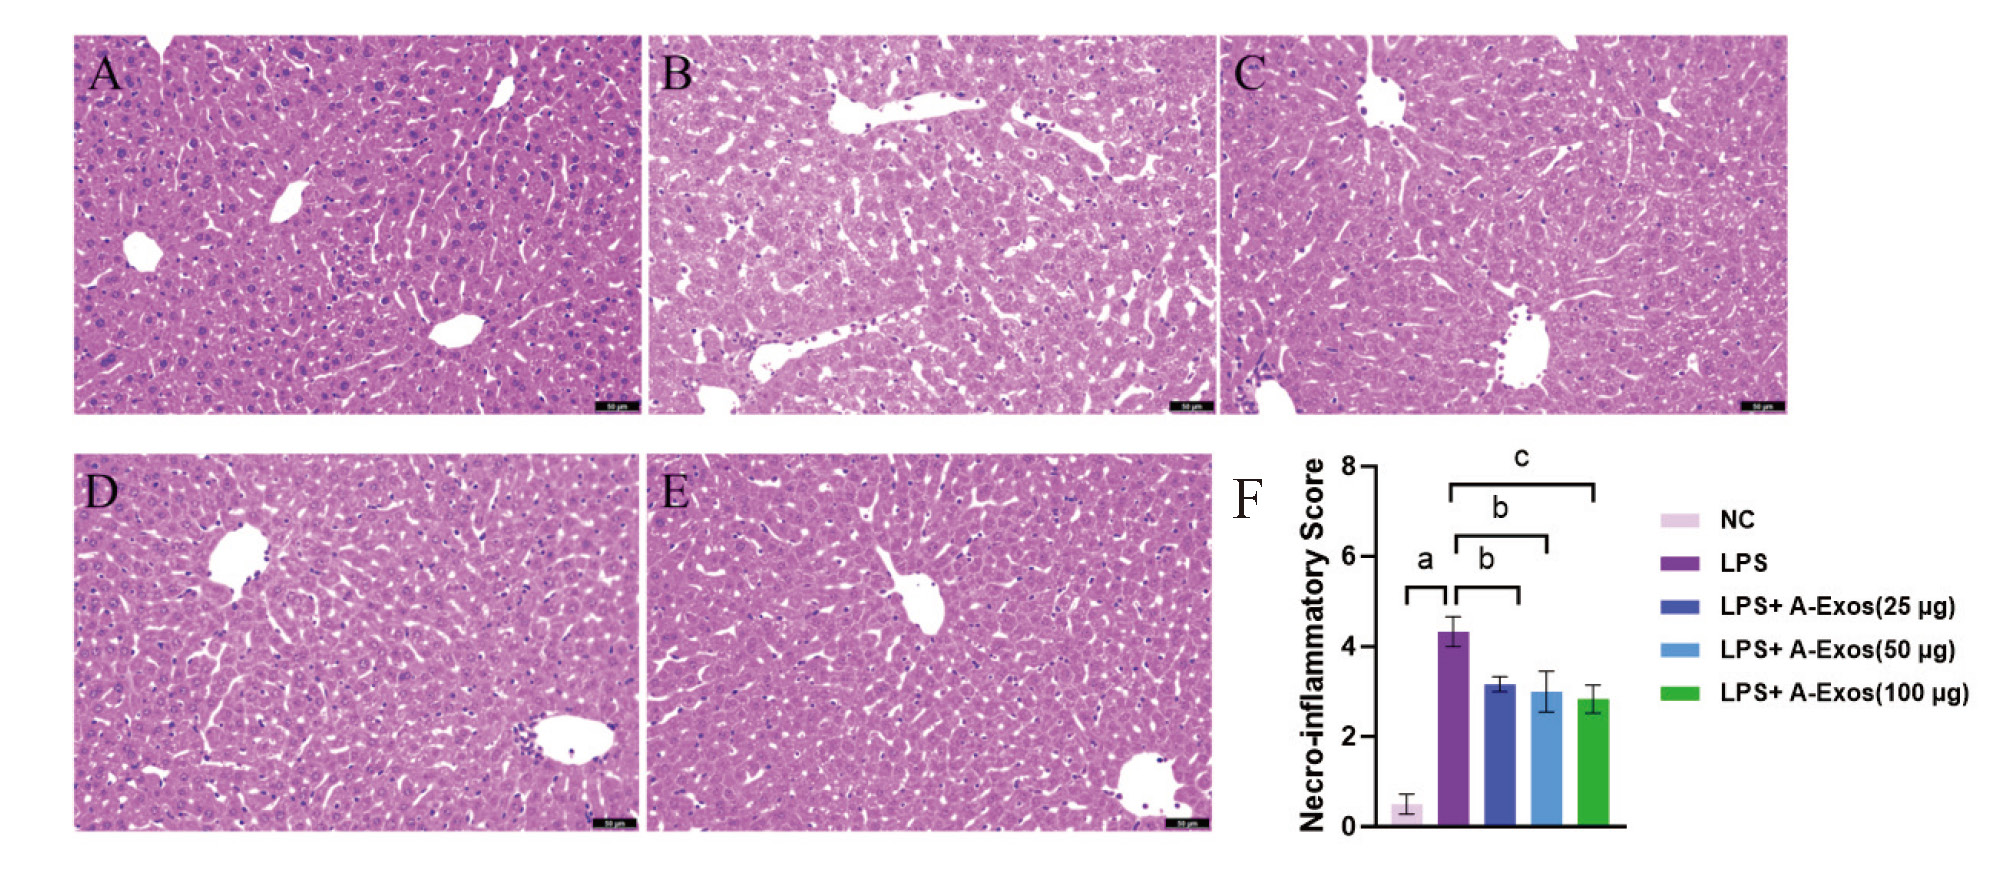
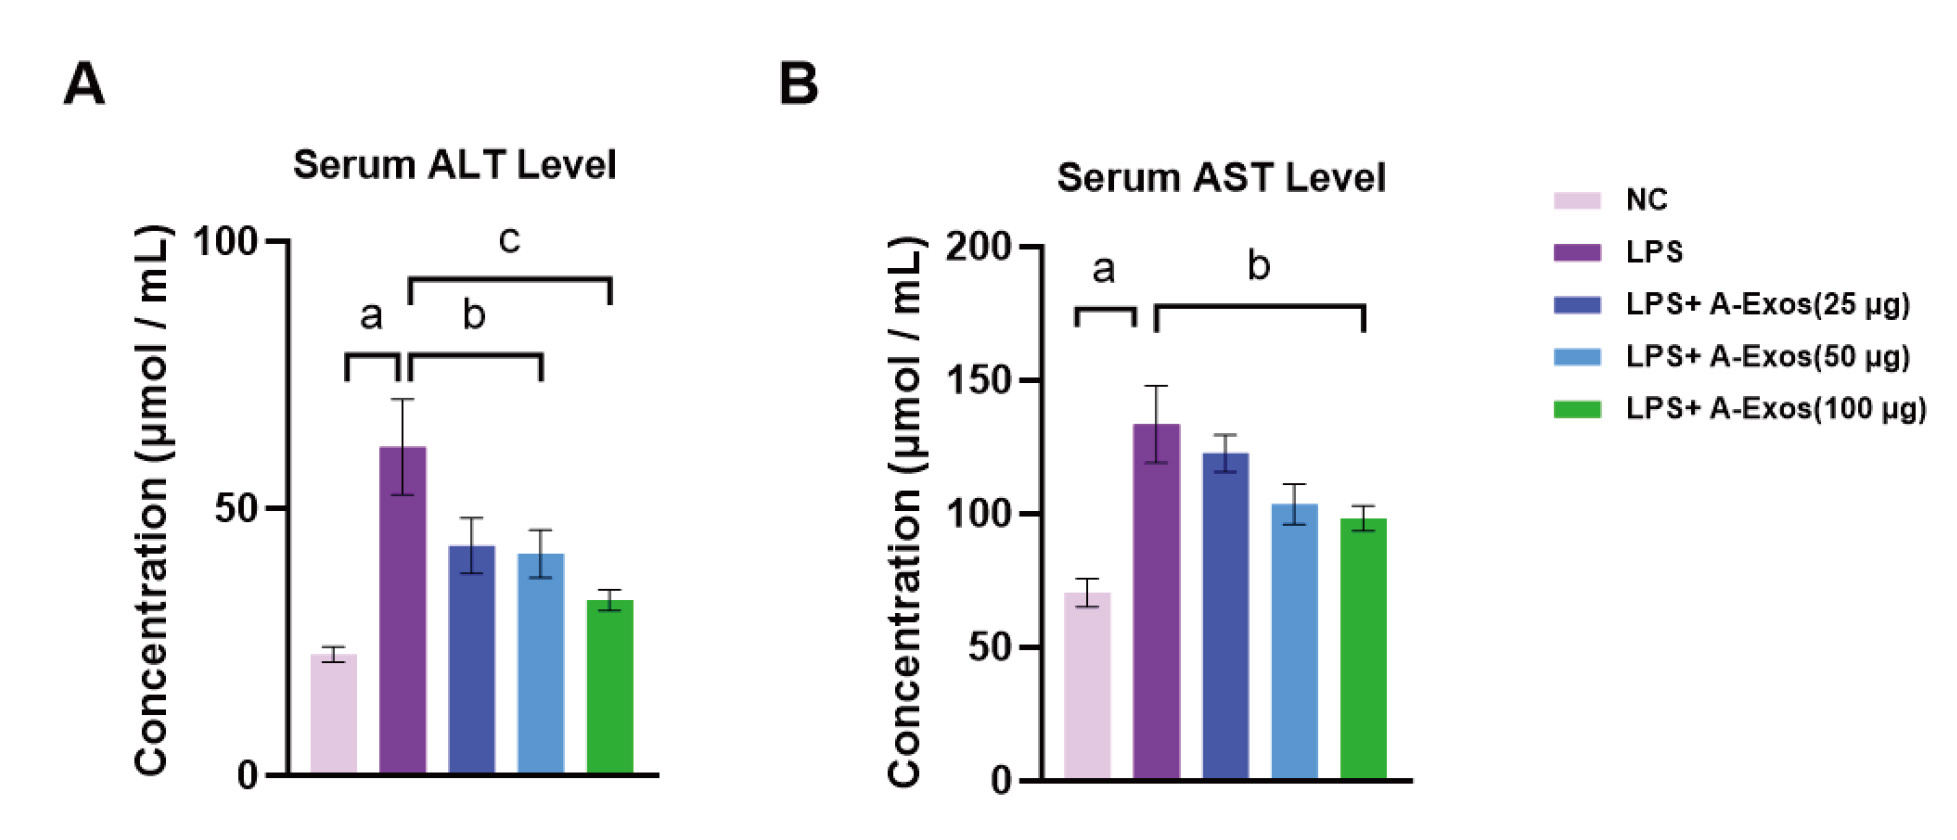
HE染色显示,NC组肝组织无明显炎性细胞浸润和肝细胞水肿,肝细胞索排列正常。LPS组肝组织存在炎性细胞浸润和肝细胞水肿,肝细胞索排列紊乱(图 3B),而这些损伤在LPS+A-Exo组明显减轻,表现为炎性细胞浸润和肝细胞水肿情况减轻(图 3C~E)。肝组织病理学评分亦降低(P<0.05)(图 3F)。检测小鼠血清中ALT和AST水平显示,与NC组相比,LPS组血清中ALT与AST水平显著升高(P<0.0001),而A-Exos干预后,ALT与AST水平较LPS组均显著下降(P<0.01)(图 4)。
|
| 注:小鼠肝脏组织H&E染色及病理损伤评分,比例尺=50 μm。A为NC组;B为LPS组;C为LPS+25 µg A-Exos组;D为LPS+50 µg A-Exos组;E为LPS+100 µg A-Exos组;F为各组病理损伤评分统计图;aP < 0.0001,bP < 0.05,cP < 0.01 图 3 A-Exos干预降低脓毒症小鼠肝组织病理损伤(n=6) Fig 3 A-Exos intervention reduces histopathological damage in liver of septic mice(n=6) |
|
|
|
| 注:小鼠血清中ALT与AST水平检测。A为ALT;B为AST;aP < 0.0001,bP < 0.05,cP < 0.01 图 4 A-Exos干预各组ALT、AST水平(n = 6) Fig 4 ALT and AST levels in the A-Exos intervention groups(n= 6) |
|
|
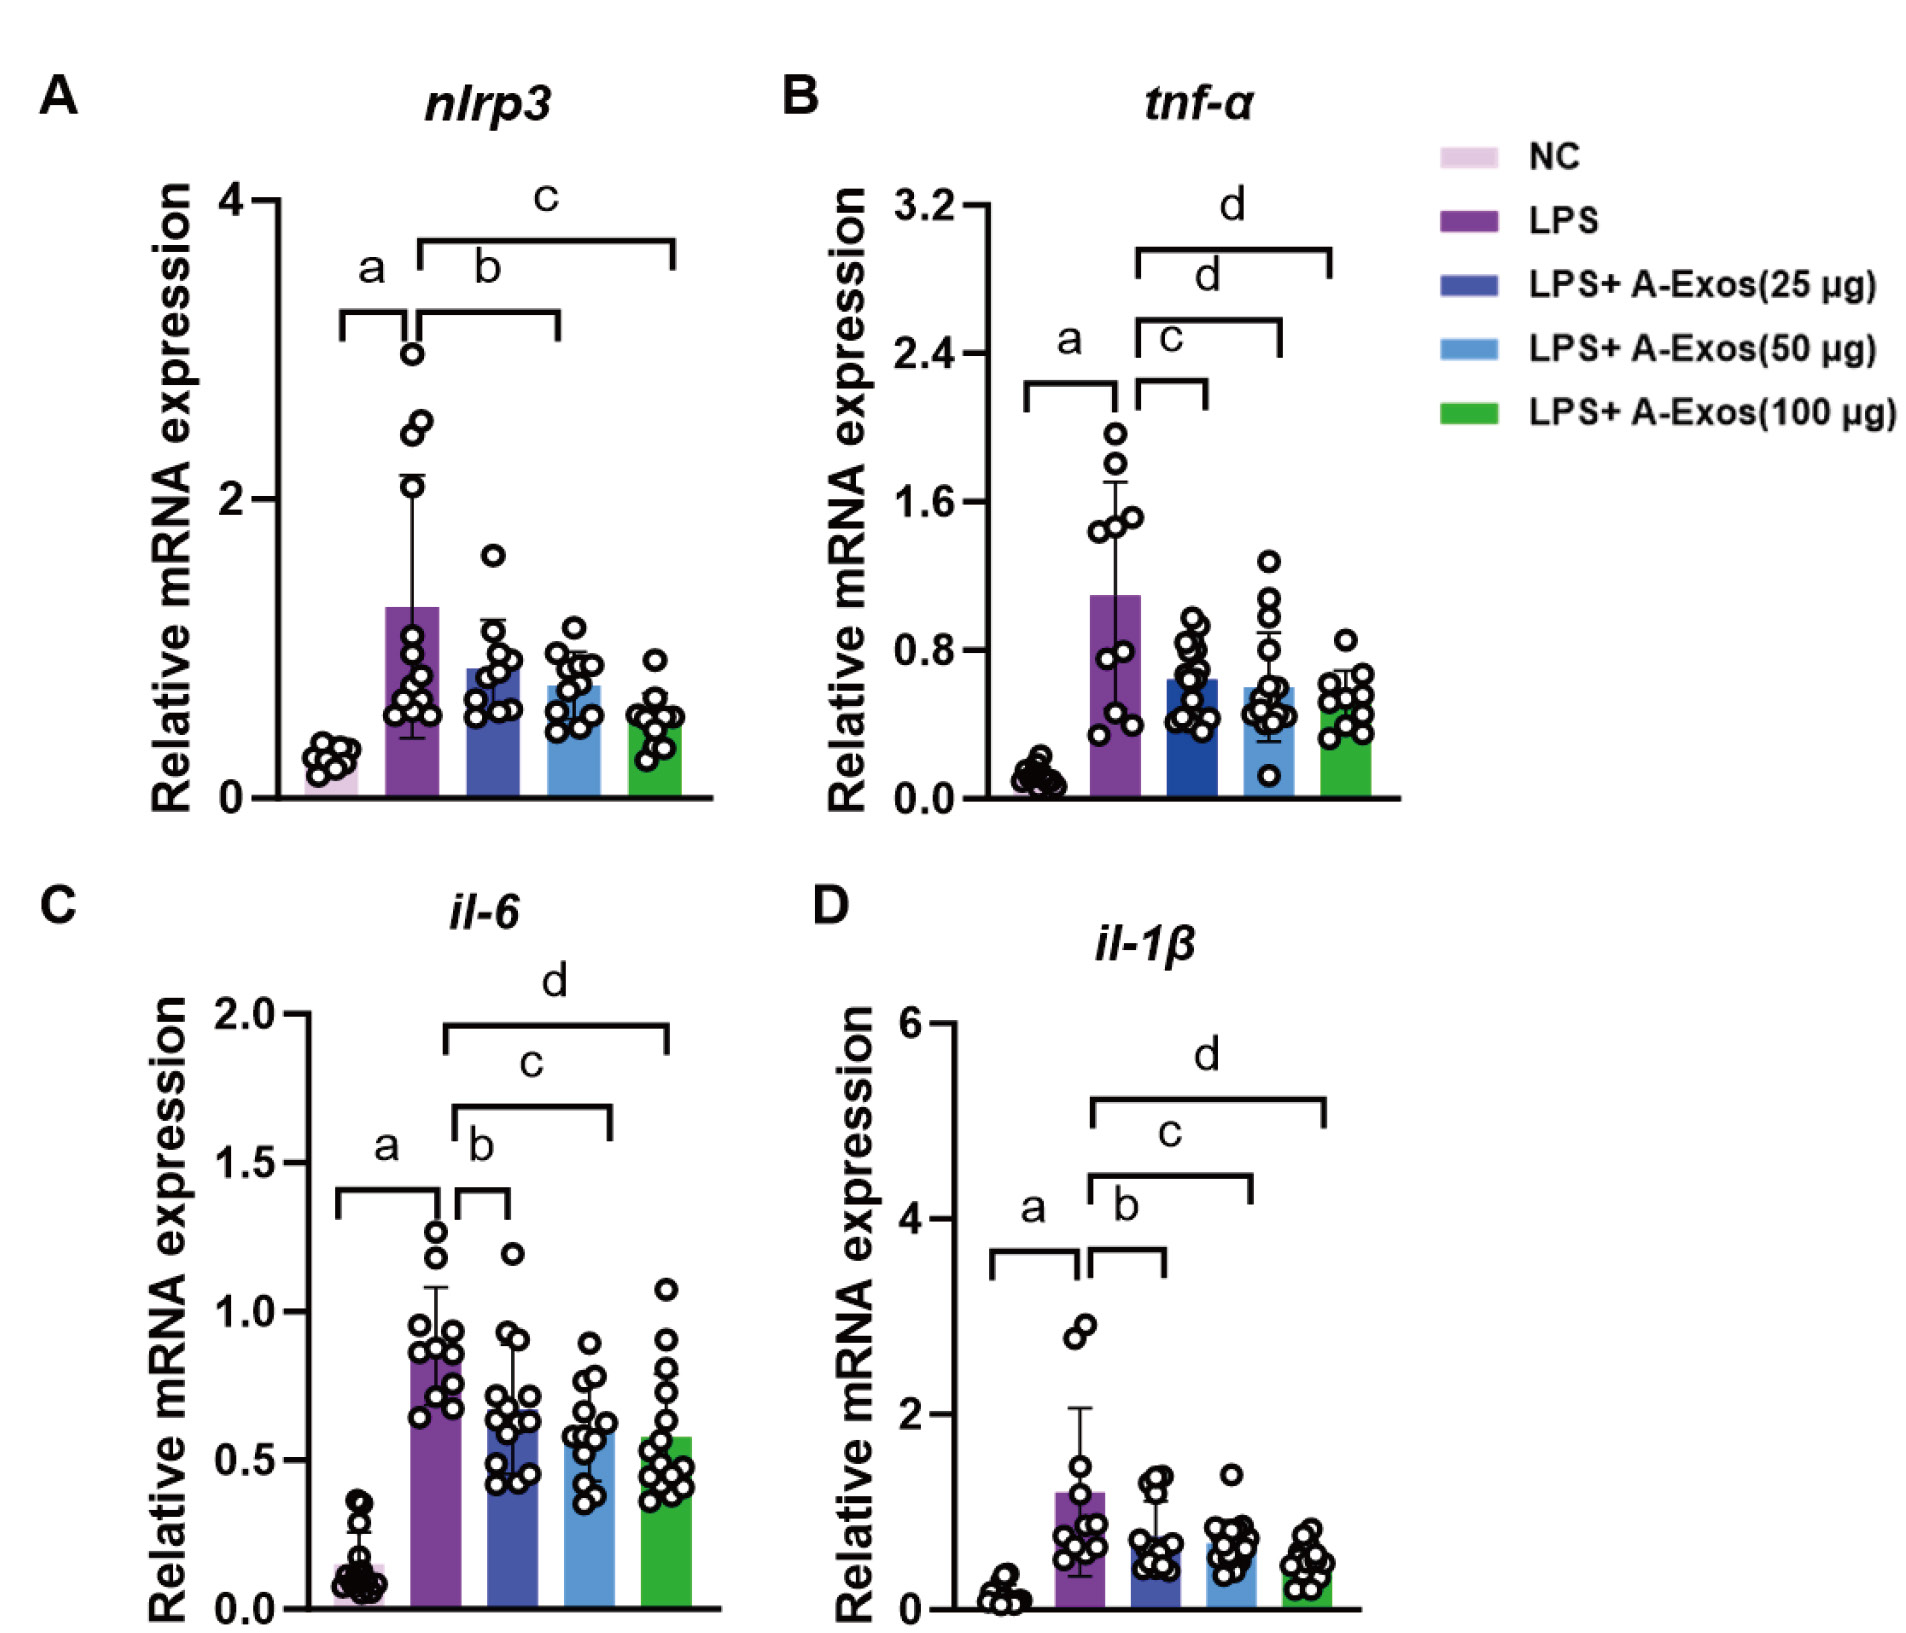
qRT-PCR结果显示,与NC组相比,LPS组小鼠肝组织中促炎因子IL-1β、IL-6、TNF-α及NLRP3的基因表达水平均显著升高(P<0.0001),且A-Exos干预后上述促炎因子的表达明显下降,且呈剂量依赖性变化(图 5)。
|
| 注:qRT-PCR检测肝组织中炎症因子基因表达水平。A为nlrp3;B为tnf-α;C为IL-6;D为IL-1β;aP < 0.0001,bP < 0.05,cP < 0.01,dP < 0.001 图 5 H-Exos干预降低脓毒症小鼠肝组织炎症因子表达(n = 9~18) Fig 5 H-Exos intervention reduces the expression of inflammatory factors in liver of septic mice(n = 9~18) |
|
|
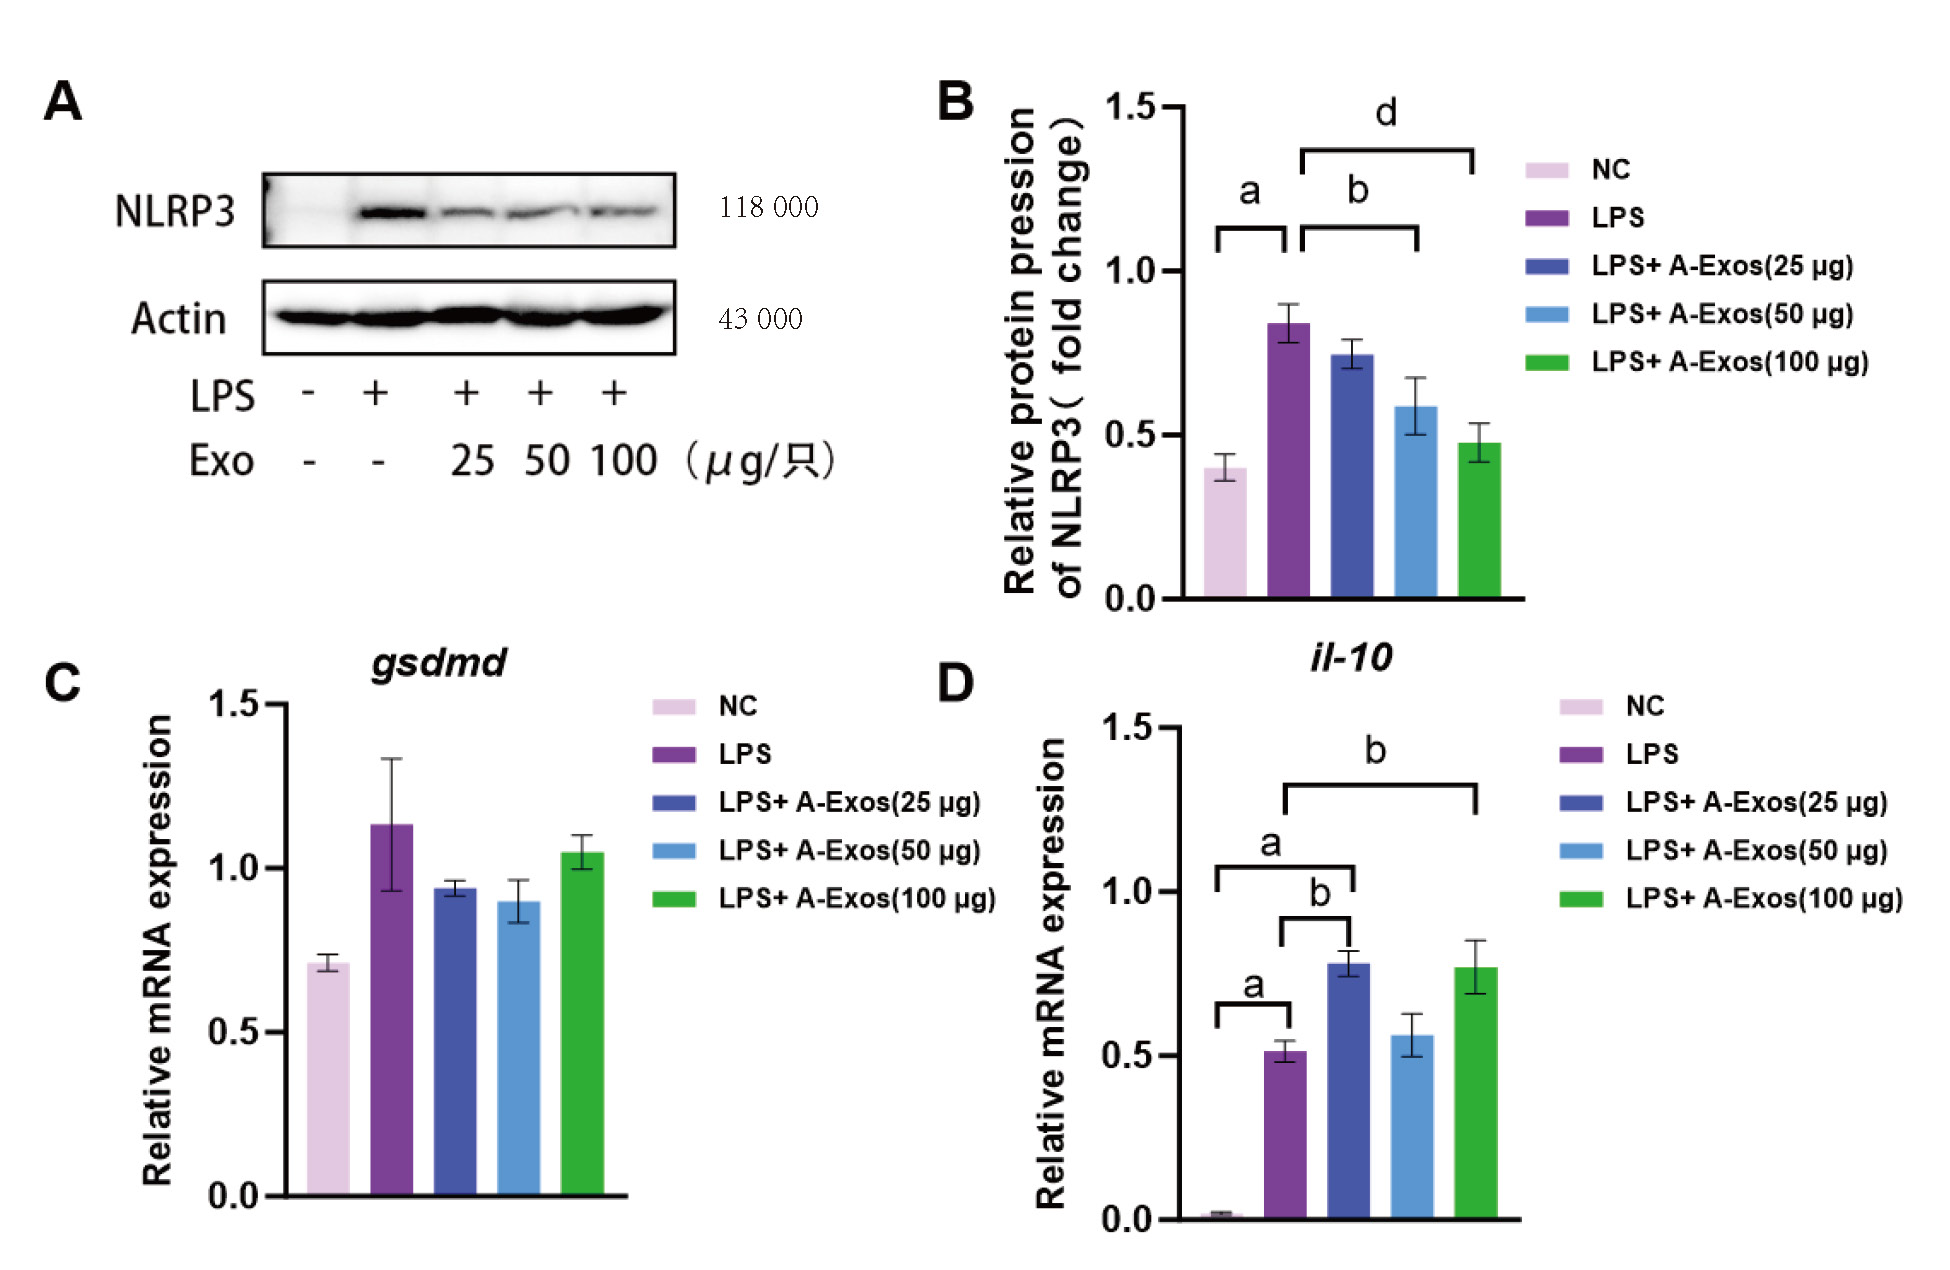
Western Blot检测结果显示, 与对照组相比, LPS模型组NLRP3表达显著升高(P<0.0001), 而A-Exos干预后NLRP3蛋白表达下降,呈剂量依赖性降低,100 μg组降低最为明显(P<0.001)。此外, 与NC组相比, LPS组抗炎因子IL-10的mRNA表达显著升高(P<0.001),且A-Exos干预后,IL-10的mRNA表达较LPS模型组进一步升高(P<0.05)。与NC组相比, LPS组细胞焦亡相关基因GSDMD的mRNA表达升高, A-Exos干预后有下降趋势, 但差异无统计学意义(图 6)。
|
| 注:Westren Blot检测NLRP3蛋白的表达水平。A为各组NLRP3蛋白印迹图;B为NLRP3蛋白统计图;C为qRT-PCR检测肝组织中细胞焦亡相关基因gsdmd表达;D为qRT-PCR检测肝组织中抗炎因子il-10的表达。aP < 0.001,bP < 0.05,dP < 0.01。 图 6 A-Exos干预抑制NLRP3炎症小体信号通路激活(n = 3) Fig 6 A-Exos intervention suppresses the activation of NLRP3 inflammasomes.(n = 3) |
|
|
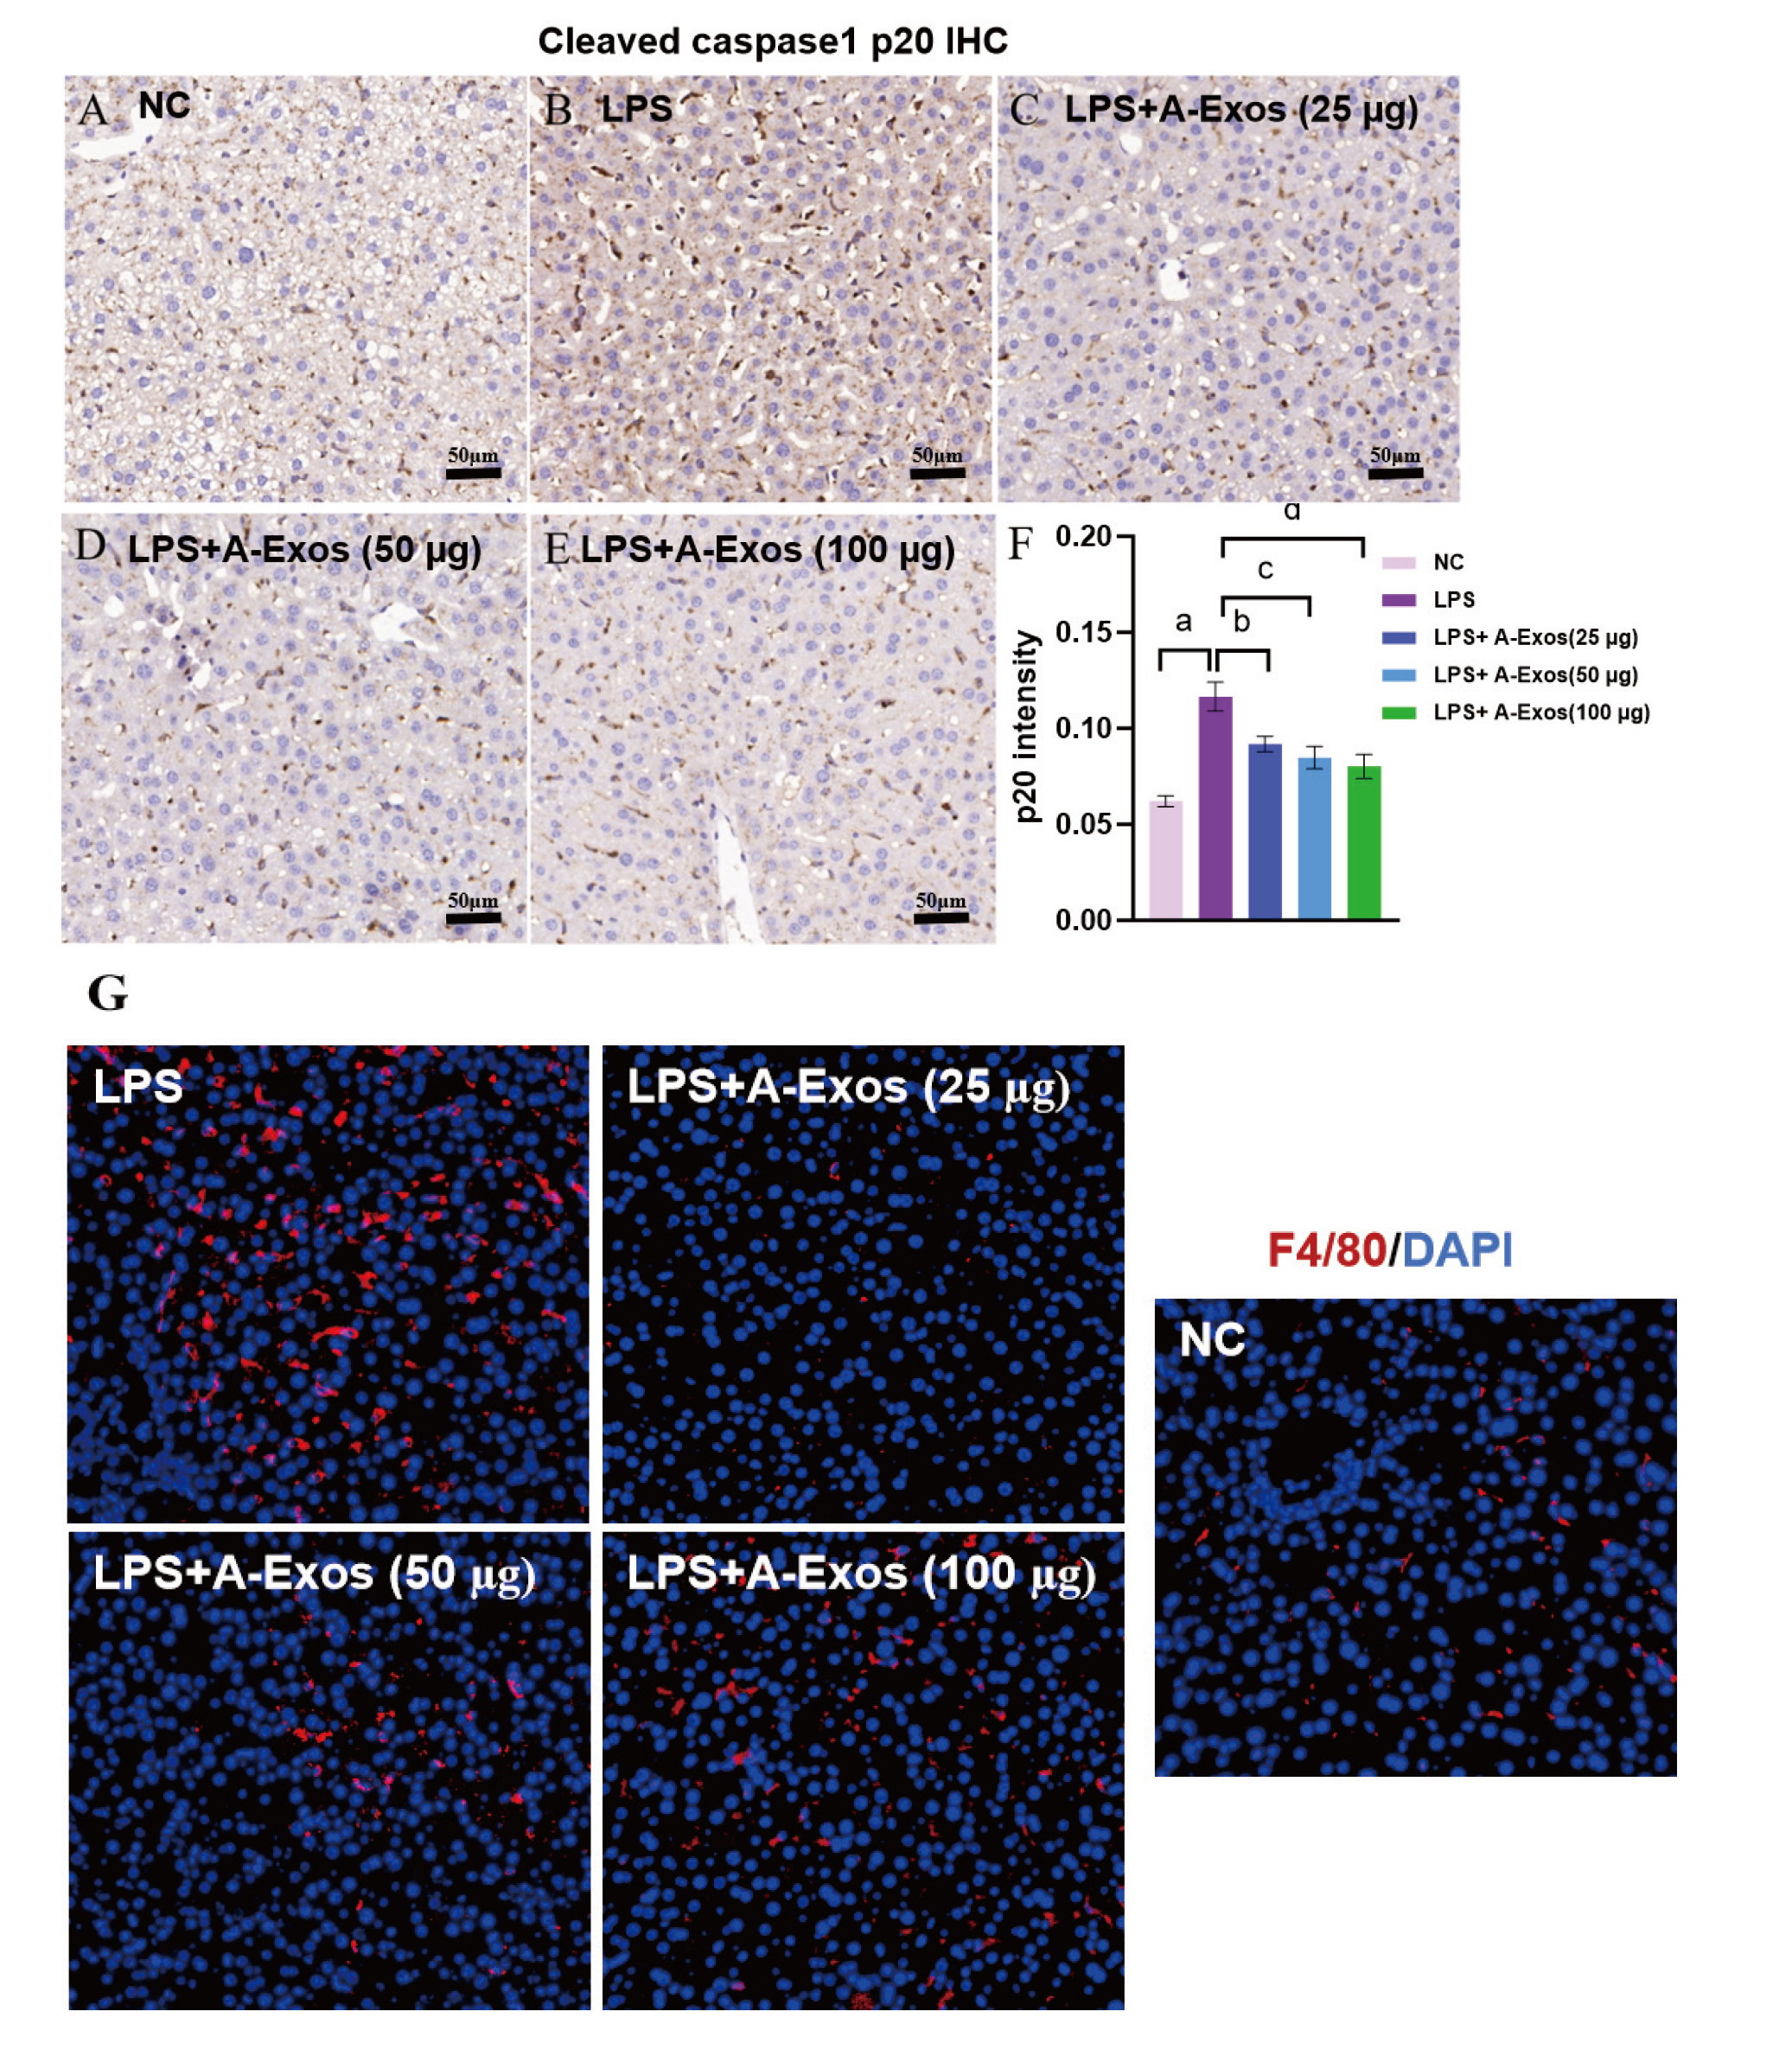
免疫组化染色结果显示, 与NC组相比, LPS组p20蛋白表达显著升高(P<0.0001), 而LPS+A-Exos组p20表达显著低于LPS组(P<0.05), 但A-Exos各剂量组之间差异无统计学意义(图 7A-F) (P>0.05)。免疫荧光染色结果显示, 与NC组相比, LPS组F4/80阳性细胞增多, 而LPS+A-Exos各剂量组均少于LPS组(图 7G)。
|
| 注:免疫组织化学染色检测p20蛋白表达,标尺= 50 μm。A为NC组;B为LPS组;C为LPS+25 µg A-Exos组;D为LPS+50 µg A-Exos组;E为LPS+100 µg A-Exos组;F为p20蛋白统计图;G为免疫荧光检测炎性巨噬细胞标志物F4/ 80的表达(标尺= 100 µm)。aP < 0.0001,bP < 0.05,cP < 0.01 图 7 A-Exos干预降低脓毒症小鼠肝组织炎症反应(n = 6) Fig 7 A-Exos intervention reduces inflammatory response in liver of septic mice (n= 6) |
|
|
脓毒症所致急性肝损伤以肝细胞水肿坏死、胆汁淤积及代谢功能紊乱为主要病理特征,临床缺乏特异性治疗手段 [17-19]。因此, 寻找新的治疗方式具有重要科学价值。研究报道BRL-3A肝细胞外泌体可在体内外激活YAP-Notch信号通路促进门静脉结扎后的肝脏再生 [20], 且来源于正常小鼠肝组织的外囊泡显著降低四氯化碳诱导的肝细胞凋亡和肝纤维化 [21], 这些研究提示正常肝细胞或肝脏组织来源外囊泡能促进肝脏损伤后修复。本研究选取了小鼠正常肝细胞系AML12分离外泌体, 探讨了其对脓毒症肝损伤的作用及可能机制, 结果显示尾静脉注射A-Exos大多在肝脏富集, 这与相关研究报道类似, 尾静脉注射DiR-Exos主要富集于肝脏、脾脏和肺, 且呈剂量依赖性 [22]。虽然皮下和腹腔注射DiR-Exos也可大量到达肝脏, 但尾静脉注射等量DiR-Exos富集于肝脏的比例更高 [22], 这提示选取的给药方式是可行的。接下来评估了其对脓毒症小鼠肝脏病理与功能指标的影响, 结果显示, 与LPS组相比,A-Exos干预各组显著降低血清ALT、AST水平和肝组织病理学损伤评分, 这提示A-Exos可减轻LPS诱导的急性肝损伤。
脓毒症诱发肝损伤发病机制复杂, 涉及过度炎症反应、氧化应激、自噬及各类细胞死亡途径 [23-24]。LPS是革兰氏阴性菌细胞壁成分, 可诱发脓毒症相关器官功能损伤。其作为典型的病原体相关分子模式, 可激活库普弗细胞及肝窦内皮细胞产生大量炎症因子, 导致肝细胞水肿、坏死及功能障碍 [25-26]。本研究亦证实, LPS诱导肝组织F4/80阳性细胞增多, 提示LPS会引起肝组织巨噬细胞活化, 炎性细胞浸润, 肝组织病理学改变, 伴有ALT、AST水平的升高, A-Exos干预后F4/80阳性的细胞数量减少, 肝组织病理损伤评分减轻, ALT、AST水平下降。NLRP3炎症小体的过度激活可招募并活化caspase-1[27-29], 促进IL-1β和IL-18的成熟和释放 [30], 另一方面切割GSDMD诱导细胞焦亡, 进一步放大炎症级联反应 [31]。本研究发现,相对于NC组, LPS组NLRP3基因及蛋白表达显著升高, 活化的caspase-1蛋白表达亦明显增加, GSDMD基因表达呈上升趋势,IL-1β、IL-6、TNF-α及IL-10的基因表达水平明显升高, 提示促炎及抗炎通路可能均激活;A-Exos干预明显降低NLRP3基因及蛋白表达,同时促进炎症反应的caspase-1活化明显下降,GSDMD的mRNA表达亦有下降趋势。此外A-Exos干预后促炎因子IL-1β、IL-6及TNF-α的mRNA表达水平较LPS组明显下降,抗炎因子IL-10的mRNA表达明显升高。提示A-Exos可能通过抑制NLRP3炎症小体激活, 减轻肝组织炎性细胞浸润及炎症反应,从而改善脓毒症急性肝损伤。
本研究仍存在一定局限性。首先, 源于LPS造模本身的局限性, 该模型主要模拟革兰阴性菌感染早期的过度炎症表型, 缺乏临床脓毒症常见的菌血症、肠道菌群移位及后期免疫麻痹等复杂病理生理过程, 可能导致研究结论外推至临床患者时需持谨慎态度; 其次, 脓毒症肝损伤涉及多种炎症小体的激活如: NLRP3, AIM2, NLRP1, NLRC4和Pyrin[4], 本研究仅对其中一条机制进行探究, 缺乏广谱性; 此外, 本研究缺乏过表达、激动剂或抑制剂的相关对照, 对于A-Exos是否只通过NLRP3炎症小体通路仍有待进一步探究。
利益冲突 所有作者声明无利益冲突。
作者贡献声明 何盈盈:论文撰写;周霞、赵梦:研究设计、论文修改;何盈盈、赵建雄:实验操作、数据收集及整理;周霞、赵梦:提供研究经费、课题指导
本文附件请登录中华急诊网(www.cem.org.cn)浏览(Html格式全文)
| [1] | Singer M, Deutschman CS, Seymour CW, et al. The third international consensus definitions for sepsis and septic shock (sepsis-3)[J]. JAMA, 2016, 315(8): 801. DOI:10.1001/jama.2016.0287 |
| [2] | Collaborators G B D N S D. Global, regional, and national burden of disorders affecting the nervous system, 1990-2021: a systematic analysis for the Global Burden of Disease Study 2021[J]. Lancet Neurol, 2024, 23(4): 344-381. DOI:10.1016/S1474-4422(24)00038-3.Epub2024Mar14 |
| [3] | 陈文胜, 杨巧云, 俞建峰, 等. 早期乳酸/前白蛋白比值对脓毒症相关性肝损伤的预测价值分析[J]. 中华急诊医学杂志, 2024, 33(11): 1559-1565. DOI:10.3760/cma.j.issn.1671-0282.2024.11.015 |
| [4] | 陈雪怡, 张凌峰, 张景鸿. AIM2炎症小体通过JAK2/STAT1通路促进ZBP1-PANoptosis途径在脓毒症急性肺损伤中作用机制研究[J]. 中华急诊医学杂志, 2026, 35(04): 502-509. DOI:10.3760/cma.j.cn114656-20250818-00591 |
| [5] | 张书娟, 韩丽丽, 万献尧. 脓毒症肝损伤的特点[J]. 中华医学杂志, 2017, 97(23): 1828-1830. DOI:10.3760/cma.j.issn.0376-2491.2017.23.015 |
| [6] | 邢博民, 郭娜, 宁海慧, 等. 脓毒症肝损伤与自噬[J]. 中国肝脏病杂志(电子版), 2021, 13(3): 37-41. DOI:10.3969/j.issn.1674-7380.2021.03.006 |
| [7] | 顾伟, 郭伟. 从"一刀切"到"精准分层": 2026年拯救脓毒症指南的突破——争议与中国急诊实践的应对[J]. 中华急诊医学杂志, 2026, 35(5): 594-597. DOI:10.3760/cma.j.cn114656-20260408-00302 |
| [8] | Jiao Y, Xu P, Shi HL, et al. Advances on liver cell-derived exosomes in liver diseases[J]. J Cellular Molecular Medi, 2021, 25(1): 15-26. DOI:10.1111/jcmm.16123 |
| [9] | Li SH, Cheng F, Zhang Z, et al. The role of hepatocyte-derived extracellular vesicles in liver and extrahepatic diseases[J]. Biomed Pharmacother, 2024, 180: 117502. DOI:10.1016/j.biopha.2024.117502 |
| [10] | Bala SS, Petrasek J, Mundkur S, et al. Circulating microRNAs in exosomes indicate hepatocyte injury and inflammation in alcoholic, drug-induced, and inflammatory liver diseases[J]. Hepatology, 2012, 56(5): 1946-1957. DOI:10.1002/hep.25873 |
| [11] | Liu L, Xiao F, Sun J, et al. Hepatocyte-derived extracellular vesicles miR-122-5p promotes hepatic ischemia reperfusion injury by regulating Kupffer cell polarization[J]. Int Immunopharmacol, 2023, 119: 110060. DOI:10.1016/j.intimp.2023.110060 |
| [12] | Caviglia GP, Casalone E, Rosso C, et al. Extracellular vesicles miRNome profiling reveals miRNAs engagement in dysfunctional lipid metabolism, chronic inflammation and liver damage in subjects with metabolic dysfunction-associated steatotic liver disease[J]. Aliment Pharmacol Ther, 2025, 62(1): 22-32. DOI:10.1111/apt.70150 |
| [13] | Nojima H, Freeman CM, Schuster RM, et al. Hepatocyte exosomes mediate liver repair and regeneration via sphingosine-1-phosphate[J]. J Hepatol, 2016, 64(1): 60-68. DOI:10.1016/j.jhep.2015.07.030 |
| [14] | Yamaguchi M, Kanazawa T, Morino S, et al. Increased tropism of extracellular vesicles derived from palmitic acid-treated hepatocytes to activated hepatic stellate cells[J]. Membranes, 2022, 12(10): 1023. DOI:10.3390/membranes12101023 |
| [15] | Elnaghy F, Shehatou GSG, Abd El-Kader EM, et al. Diltiazem mitigates acute liver injury by targeting NFκB-TXNIP/NLRP3 axis in Rats: New insights beyond calcium channel blockade[J]. Int Immunopharmacol, 2024, 143: 113460. DOI:10.1016/j.intimp.2024.113460 |
| [16] | Welsh JA, Goberdhan DCI, O'Driscoll L, et al. Minimal information for studies of extracellular vesicles (MISEV2023): From basic to advanced approaches[J]. J Extracellular Vesicle, 2024, 13(2): e12404. DOI:10.1002/jev2.12404 |
| [17] | 沈美佳, 孙力超, 张国强. 脓毒症小鼠肝细胞自噬与LC3及P62表达的实验研究[J]. 中华急诊医学杂志, 2019, 28(4): 467-472. DOI:10.3760/cma.j.issn.1671-0282.2019.04.014 |
| [18] | Li ZY, Liu T, Feng Y, et al. PPARγ alleviates sepsis-induced liver injury by inhibiting hepatocyte pyroptosis via inhibition of the ROS/TXNIP/NLRP3 signaling pathway[J]. Oxid Med Cell Longev, 2022, 2022: 1269747. DOI:10.1155/2022/1269747 |
| [19] | Guo YJ, Guo WX, Chen HM, et al. Mechanisms of sepsis-induced acute liver injury: a comprehensive review[J]. Front Cell Infect Microbiol, 2025, 15: 1504223. DOI:10.3389/fcimb.2025.1504223 |
| [20] | Liu MQ, Zhu Y, Li ZS, et al. Exosomes from liver progenitor cells carrying JAG1 activate Notch signaling to promote liver regeneration in PVL rats[J]. Cell Death Dis, 2025, 16: 609. DOI:10.1038/s41419-025-07925-1 |
| [21] | Lee J, Kim SR, Lee C, et al. Extracellular vesicles from in vivo liver tissue accelerate recovery of liver necrosis induced by carbon tetrachloride[J]. J Extracellular Vesicle, 2021, 10(10): e12133. DOI:10.1002/jev2.12133 |
| [22] | Wiklander OPB, Nordin JZ, O'Loughlin A, et al. Extracellular vesicle in vivo biodistribution is determined by cell source, route of administration and targeting[J]. J Extracellular Vesicle, 2015, 4: 26316. DOI:10.3402/jev.v4.26316 |
| [23] | 刘思齐, 杨正飞, 江山平. 铁死亡的发生机制及在脓毒症多器官功能障碍中的作用[J]. 中华急诊医学杂志, 2022, 31(11): 1558-1563. DOI:10.3760/cma.j.issn.1671-0282.2022.11.028 |
| [24] | 郑嘉慧, 张海丹, 李虹瑶, 等. HIF-1α/HO-1信号通路调控铁死亡在脓毒症中的作用机制及治疗潜力[J]. 中华急诊医学杂志, 2025, 34(11): 1641-1648. DOI:10.3760/cma.j.cn114656-20250208-00067 |
| [25] | Nakadate K, Saitoh H, Sakaguchi M, et al. Advances in understanding lipopolysaccharide-mediated hepatitis: mechanisms and pathological features[J]. Curr Issues Mol Biol, 2025, 47(2): 79. DOI:10.3390/cimb47020079 |
| [26] | Liu HY, Yin G, Kohlhepp MS, et al. Dissecting acute drug-induced hepatotoxicity and therapeutic responses of steatotic liver disease using primary mouse liver and blood cells in a liver-on-A-chip model[J]. Adv Sci, 2024, 11(30): 2403516. DOI:10.1002/advs.202403516 |
| [27] | Hochheiser IV, Behrmann H, Hagelueken G, et al. Directionality of PYD filament growth determined by the transition of NLRP3 nucleation seeds to ASC elongation[J]. Sci Adv, 2022, 8(19): eabn7583. DOI:10.1126/sciadv.abn7583 |
| [28] | 樊恒, 孙敏, 朱建华. SENP2调控NLRP3炎症小体活化对脓毒症小鼠急性肾损伤中的保护作用[J]. 中华急诊医学杂志, 2025, 34(2): 187-192. DOI:10.3760/cma.j.issn.1671-0282.2025.02.009 |
| [29] | Fu JN, Wu H. Structural mechanisms of NLRP3 inflammasome assembly and activation[J]. Annu Rev Immunol, 2023, 41: 301-316. DOI:10.1146/annurev-immunol-081022-021207 |
| [30] | Devant P, Kagan JC. Molecular mechanisms of gasdermin D pore-forming activity[J]. Nat Immunol, 2023, 24(7): 1064-1075. DOI:10.1038/s41590-023-01526-w |
| [31] | Sharma BR, Kanneganti TD. NLRP3 inflammasome in cancer and metabolic diseases[J]. Nat Immunol, 2021, 22(5): 550-559. DOI:10.1038/s41590-021-00886-5 |