 2026, Vol. 35


引用本文 |


2. 成都市第三人民医院,成都 610014;
3. 四川省医学科学院·四川省人民医院急诊科,成都 610041
急性呼吸窘迫综合征(acute respiratory distress syndrome, ARDS)是由多种病因引发的急性弥漫性肺损伤,其病理特征包括肺泡上皮和内皮屏障破坏、炎症细胞浸润、肺水肿及透明膜形成[1]。在ARDS的修复阶段,部分患者会发展为进行性肺纤维化(pulmonary fibrosis, PF),导致肺功能不可逆性下降,病死率高[2]。PF的本质是肺组织在反复或持续性损伤后,修复过程失调,导致成纤维细胞与肌成纤维细胞过度增殖活化及细胞外基质(extracellular matrix, EMC)异常沉积,最终取代正常的肺泡结构[3]。这一过程涉及复杂的细胞间对话和细胞内信号网络。其中,丝裂原活化蛋白激酶(mitogen-activated protein kinase, MAPK)通路,特别是p38 MAPK通路,在应激反应、炎症和纤维化中扮演着重要角色[4]。而p38的激活又受到转化生长因子β激活激酶1(transforming growth factor beta-activated kinase 1, TAK1)的调控,TAK1的活化则依赖于肿瘤坏死因子受体相关因子6(TNF receptor-associated factor 6, TRAF6)介导的泛素化修饰[5-6]。在ARDS的病理环境中,多种损伤相关分子模式(damage associated molecular patterns, DAMPs)和病原体相关分子模式(pathogen associated molecular patterns, PAMPs)通过模式识别Toll样受体(Toll like receptors, TLRs)激活TRAF6-TAK1-p38信号通路,进而放大炎症风暴并促进纤维化[7]。
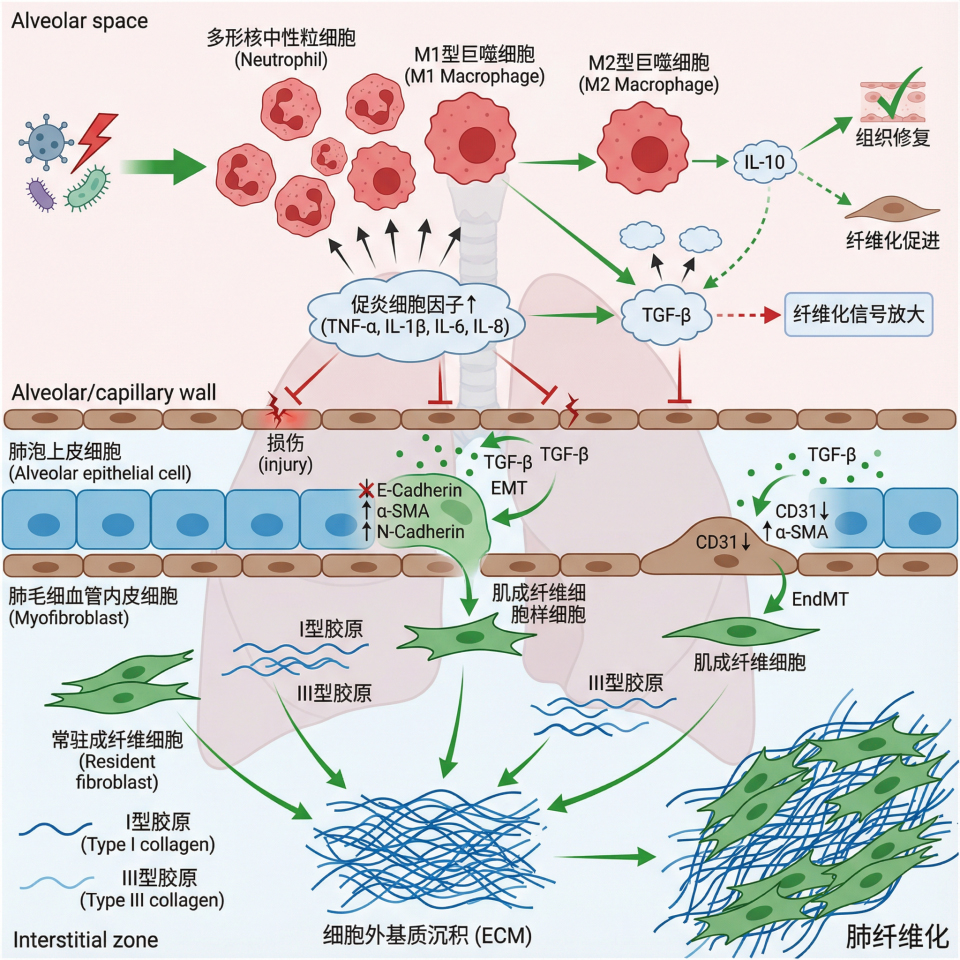
ARDS后的PF主要是在急性炎症期,由感染或损伤触发的过度炎症反应导致大量中性粒细胞和巨噬细胞等炎症细胞浸润和促炎细胞因子释放[8]。其中M1型巨噬细胞分泌促炎因子加剧损伤,而M2型巨噬细胞则分泌白细胞介素(interleukin, IL)-10等因子,促进组织修复但同时也可能驱动纤维化[9]。肿瘤坏死因子(tumor necrosis factor, TNF)-α、IL-1β、IL-6和IL-8等促炎细胞因子,不仅导致肺泡上皮和毛细血管内皮损伤,形成富含蛋白质的肺水肿,还能与转化生长因子(transforming growth factor, TGF)-β协同,放大纤维化信号[10]。TGF-β由受损的肺泡上皮细胞释放,驱动上皮细胞发生上皮-间质转化(epithelial-mesenchymal transition, EMT)[11]。在EMT过程中,肺泡上皮细胞失去极性及E-钙黏蛋白(cadherin, Cad)等上皮标志物,获得α-平滑肌肌动蛋白(smooth muscle actin, SMA)和N-Cad等间质细胞标志物,转化为具有迁移和分泌能力的肌成纤维细胞样细胞[12]。同时,肺微血管内皮细胞的CD31表达下降,α-SMA表达增加,转化为肌成纤维细胞,从而形成内皮-间质转化(endothelial mesenchymal transition, EndMT)促使纤维化[13]。这些转化而来的细胞,连同被激活的常驻肺成纤维细胞,共同成为肌成纤维细胞,产生过量Ⅰ型和Ⅲ型胶的EMC,最终形成PF[14]。并且Pan等[15]发现ARDS和PF患者血浆中IL-10水平升高,与纤维化程度相关。ARDS后PF的病理过程见图 1。
|
| 注:从上至下依次显示,急性期炎症损伤(炎症细胞浸润、促炎因子释放)、上皮/内皮间质转化、成纤维细胞活化与增殖、Ⅰ/Ⅲ型胶原过度沉积,最终形成肺纤维化 图 1 ARDS后IPF的病理过程示意图 |
|
|
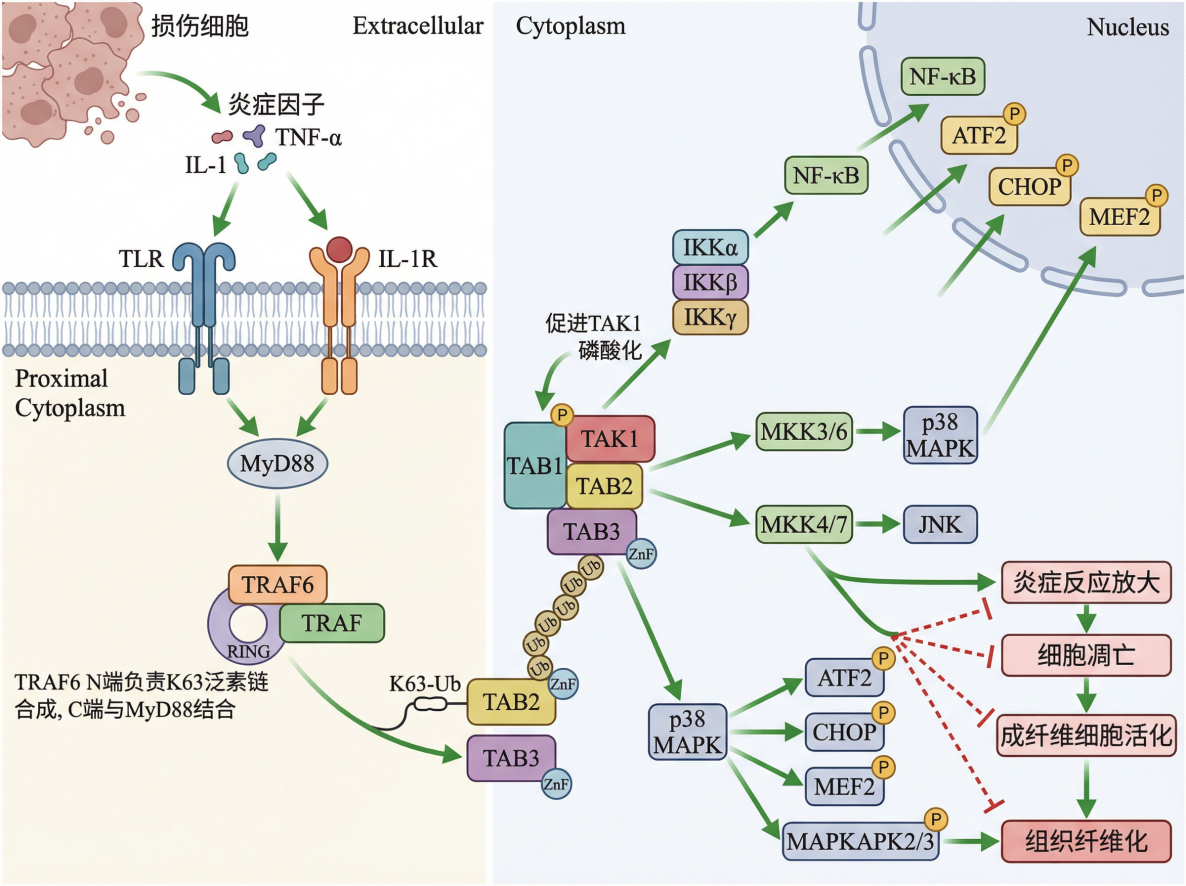
细胞受损后释放炎症因子,从而激活细胞膜上的TLR或IL-1R,招募并激活TRAF6[16]。TRAF6是TRAF家族的关键成员,其N端包含一个RING结构域,负责催化K63连接的泛素链合成,而C端则含有TRAF结构域,与TLR的下游衔接蛋白MyD88的相互作用,活化后TRAF6通过其E3泛素连接酶活性,催化下游TAK1结合蛋白TAB2/TAB3发生K63连接的泛素化[17]。TAK1的激活依赖于其与调节亚基TAB1、TAB2和TAB3形成的复合物[18]。其中,TAB1促进TAK1的磷酸化激活,而TAB2/TAB3则通过其C端的锌指结构域特异性识别由上游TRAF6催化生成的K63连接泛素链,将TAK1复合物锚定在激活位点,导致TAK1发生自身磷酸化而被完全激活[19]。激活TAK1后,不仅能磷酸化并激活IKKα/IKKβ/IKKγ复合物驱动核因子κB(nuclear factor kappa-B, NF-κB)通路,还能磷酸化并激活MKK3/6和MKK4/7,进而启动p38 MAPK通路[20-21]。p38 MAPK是MAPK家族的重要成员[22],激活后的p38能够磷酸化转录因子,如激活转录因子2(activating transcription factor 2, ATF2)、C/EBP同源蛋白(C/EBP homologous protein, CHOP)等下游底物,从而广泛影响基因表达、蛋白质合成和细胞周期[23]。在病理状态下,持续的p38激活与炎症反应的放大、细胞凋亡以及成纤维细胞的活化密切相关,最终促使组织纤维化[24]。TRAF6-TAK1-p38信号通路相关激活与调节网络见图 2。
|
| 注:TRAF6-TAK1-p38信号通路的激活与调控示意图。上游TLR/IL-1R识别PAMPs/DAMPs后,经MyD88激活TRAF6;TRAF6催化K63泛素链,经TAB2/TAB3激活TAK1;TAK1分别激活下游NF-κB通路(经IKK复合物)和p38 MAPK通路(经MKK3/6);p38 MAPK进一步调控转录因子(ATF2、CHOP),介导炎症、凋亡及纤维化反应。TAB1促进TAK1磷酸化,虚线表示与TGF-β/Smad等通路的交叉作用 图 2 TRAF6-TAK1-p38信号通路的激活与调控 |
|
|
TRAF6-TAK1-p38信号通路在ARDS炎症期中起着核心调控作用,其作用机制主要是驱动爆发性性炎症反应、破坏肺组织稳态。该通路的激活形成促炎因子风暴,通过下游NF-κB和MAPK等途径,促进TNF-α、IL-1β和IL-6等关键细胞因子的转录与释放,爆发系统性炎症[25]。同时,促进中性粒细胞向肺泡的过度募集与激活,并驱动肺泡巨噬细胞向促炎的M1表型极化,从而放大炎症并造成组织损伤[26]。多项研究表明,抑制p38 MAPK信号通路可以减轻中性粒细胞肺部浸润以及促进巨噬细胞由促炎的M1表型向抗炎的M2表型转换,从而缓解肺损伤[27]。所以,靶向调控该信号通路可能控制ARDS炎症期病理进展、减轻组织损伤。
3.2 诱导肺泡上皮细胞损伤与凋亡除了驱动免疫细胞介导的过度炎症外,TRAF6-TAK1-p38信号通路的持续激活也直接作用于肺组织的结构细胞,特别是肺泡上皮细胞,导致其发生凋亡。研究证实,失活的p38 MAPK可减轻Ⅱ型肺泡上皮细胞发生凋亡[28]。AT2细胞作为肺泡上皮的祖细胞和修复细胞,其大量丢失不仅破坏了肺泡上皮屏障的完整性,导致肺水肿和呼吸衰竭,更严重削弱了肺组织的正常再生与修复能力,从而发生PF[29]。Xu等[30]发现在LPS诱导的ARDS小鼠中,抑制p38活性被证实可以显著减轻肺泡上皮细胞的凋亡,并改善肺泡结构。
4 TRAF6-TAK1-p38轴在肺纤维化期的调控作用 4.1 促进成纤维细胞活化与增殖在ARDS后的病理微环境中,TGF-β1和血小板衍生生长因子(platelet derived growth factor, PDGF),通过激活成纤维细胞表面的相应受体,间接或直接利用TRAF6-TAK1-p38通路传递强烈的促增殖与活化信号[31]。研究表明,在纤维化进程中,活化的成纤维细胞表现出糖酵解增强的代谢特征,即“Warburg效应”,以快速产生能量满足其大量增殖和合成胶原蛋白的需求[32]。TRAF6-TAK1-p38通路可能通过调控关键代谢酶的表达或活性,参与这一过程,为成纤维细胞的活化与功能执行提供能量支持[33]。
4.2 介导EMT与肌成纤维细胞转化EMT是受损的肺泡上皮细胞获得间质细胞表性和功能的重要病理过程,是肌成纤维细胞的重要来源之一,在ARDS后PF中扮演关键角色[34]。TGF-β1是诱导EMT的核心因子,其部分促EMT效应被证实依赖于TAK1-p38信号的激活。活化的p38 MAPK可磷酸化并稳定EMT相关转录因子,从而促使EMT转化[35]。
4.3 TRAF6-TAK1-p38与其他纤维化相关信号通路TRAF6-TAK1-p38通路与经典的TGF-β/Smad信号通路之间存在密切的协同与交叉作用,这在多种器官纤维化进程中扮演着关键角色。在非小细胞肺癌细胞中,TGF-β1不仅通过经典的Smad4通路,也通过非经典的TAK1-TRAF6-p38 MAPK通路诱导自噬[36]。此外,TGF-β可通过TAK1激活p38 MAPK,而活化的p38 MAPK又可反过来磷酸化并调节Smad蛋白的活性与稳定性,从而形成一个正反馈环路,极大地增强了促纤维化信号的输出[37]。所以,这种TGF-β/Smad与p38 MAPK通路的交叉对话可能同样存在,共同决定了成纤维细胞的活化与EMC的过度沉积。
TRAF6-TAK1-p38通路与NF-κB信号通路之间存在紧密的关联,TAK1是激活NF-κB和MAPK通路的关键分叉点。激活的TAK1同时具有磷酸化并激活IKK复合体的能力,同时,TAK1也能磷酸化并激活MKK3/6,进而导致p38 MAPK的激活[38]。研究证实,左乙拉西坦通过下调MyD88、TRAF6的表达,并抑制TAK1、p38及NF-κB p65的磷酸化,从而抑制小胶质细胞活化[39]。
p38 MAPK可以磷酸化并调节β-连环蛋白(Catenin Beta 1, β-catenin)的稳定性或转录共激活因子Yes相关蛋白(Yes associated protein, YAP)的活性,从而影响这些通路在组织修复与纤维化中的作用[40]。在骨关节炎中,齐墩果酸(Oleanolic acid, OLA)通过抑制Wnt/β-catenin通路和激活Hippo/YAP通路来抑制EMC降解[41]。类似地,KCTD11通过结合β-catenin来调节Wnt和Hippo通路的活性,从而抑制肺癌细胞的恶性表型[42]。这种交互对话在纤维化背景下可能存在持续的p38激活可能通过稳定β-catenin或促进YAP核转位,增强促纤维化基因的转录,反之,Wnt/β-catenin通路的激活也可能影响p38的活性。在黑色素瘤中,TGF-β/Smad、Hippo/YAP/TAZ和Wnt/β-catenin信号通路之间存在等级式的相互作用,共同驱动表型转换,其中YAP/TAZ掌管着TGF-β诱导的关键过程[43]。所以,在ARDS后PF的复杂微环境中,TRAF6-TAK1-p38通路可能与Wnt/β-catenin和Hippo/YAP通路形成信号网络,协同促进纤维化的发生与发展。
5 靶向TRAF6-TAK1-p38通路的潜在治疗策略与挑战靶向TRAF6-TAK1-p38通路的潜在治疗策略包括小分子抑制剂、基因治疗与RNA干扰、天然产物干预以及联合治疗等多种方向,但各自面临不同的挑战。在小分子抑制剂方面,p38抑制剂在临床前模型中展现出显著的抗炎和抗肿瘤潜力,但早期药物如SB203580和BIRB796在临床试验中因肝毒性、心血管不良反应及疗效有限而受阻[44-45]。另有p38抑制剂Losmapimod通过提高对p38亚型的选择性来降低毒性[46],但其在PF中的疗效仍需验证。又如TAK1抑制剂5Z-7-oxozeaenol被证实能够有效逆转因TRIM38缺失而加重的细胞损伤,通过抑制TAK1/NF-κB信号通路发挥保护作用[47],提示TAK1抑制剂在炎症和纤维化相关病理中的潜力。同时,针对上游靶点TRAF6的干预也在探索中,如白藜芦醇可通过增加miR-181a-5p表达来抑制TRAF6/TAK1通路活性,在破骨细胞分化模型中发挥抗炎作用[48]。基因治疗与RNA干扰技术则提供了精准靶向工具,例如利用小干扰RNA或短发夹RNA特异性敲低通路关键分子,已在多种疾病模型中验证了其治疗潜力。在原发性膜性肾病研究中,TRAF6被证实通过诱导TAK1泛素化激活下游GSDMD/Caspase-1轴并驱动足细胞焦亡[49],提示靶向沉默TRAF6或TAK1可能中断类似的致病链条。此外,天然产物与中药干预也展现出调节该通路的能力,如2-酮戊二酸被证明可直接与TAK1结合并抑制TRAF6-TAK1相互作用,从而阻断下游NF-κB激活,在炎症性肠病模型中改善肠道屏障功能[50]。研究显示,Protectin D1通过上调IRAK-M抑制TLR4下游TAK1和p38激活,从而减轻非酒精性脂肪性肝炎中的炎症和纤维化[51],提示天然产物与靶向药物的联合可能具有协同作用。在纤维化疾病中,该通路很可能与TGF-β/Smad等经典通路交叉作用,联合应用p38或TAK1抑制剂与TGF-β通路抑制剂理论上可产生协同效应。
6 结论TRAF6-TAK1-p38 MAPK信号通路在ARDS后的PF中发挥重要作用。该通路促使肺泡上皮损伤和成纤维细胞活化,推动了纤维化进程。虽然抑制该通路的上游节点可有效减轻PF,但也需考虑其在生理状态下的重要功能及潜在副作用。未来研究可以聚焦于通路的细胞特异性,并开发靶向递送系统和生物标志物等精准的干预策略,以提升疗效和安全性。深入该通路研究有望推动新型抗PF药物的开发,改善患者预后。
利益冲突 所有作者声明无利益冲突
| [1] | Lima APS, Marshall DA, Morrell E, et al. Bridging the gap: a comprehensive review of radiology and pathology in acute lung injury[J]. J Thorac Imag, 2026, 41(2): e0837. DOI:10.1097/rti.0000000000000837 |
| [2] | Zhang Z, Shan XY, Liang C, et al. Microvesicles derived from mesenchymal stem cells: a promising therapeutic strategy for acute respiratory distress syndrome-related pulmonary fibrosis?[J]. World J Stem Cells, 2025, 17(1): 101036. DOI:10.4252/wjsc.v17.i1.101036 |
| [3] | Koudstaal T, Wijsenbeek MS. Idiopathic pulmonary fibrosis[J]. La Presse Médicale, 2023, 52(3): 104166. DOI:10.1016/j.lpm.2023.104166 |
| [4] | Li WL, Li D, Chen YS, et al. Classic signaling pathways in alveolar injury and repair involved in sepsis-induced ALI/ARDS: new research progress and prospect[J]. Dis Markers, 2022, 2022: 6362344. DOI:10.1155/2022/6362344 |
| [5] | Wang YH, Ma HL, Yang QJ, et al. Senescent retinal pigment epithelial cells promote angiogenesis in choroidal neovascularization via the TAK1/p38 MAPK pathway[J]. Exp Eye Res, 2025, 251: 110232. DOI:10.1016/j.exer.2025.110232 |
| [6] | Deng QF, Yang SD, Huang K, et al. NLRP6 induces RIP1 kinase-dependent necroptosis via TAK1-mediated p38MAPK/MK2 phosphorylation in S. typhimurium infection[J]. iScience, 2024, 27(4): 109339. DOI:10.1016/j.isci.2024.109339 |
| [7] | Huang QR, Le Y, Li SS, et al. Signaling pathways and potential therapeutic targets in acute respiratory distress syndrome (ARDS)[J]. Respir Res, 2024, 25(1): 30. DOI:10.1186/s12931-024-02678-5 |
| [8] | Liu FC, Yu HP, Liao CC, et al. Corilagin inhibits neutrophil extracellular trap formation and protects against hydrochloric acid/lipopolysaccharide-induced acute lung injury in mice by suppressing the STAT3 and NOX2 signaling pathways[J]. Antioxidants, 2024, 13(4): 491. DOI:10.3390/antiox13040491 |
| [9] | Sun Q, Feng ZY, Wang F, et al. A multifunctional hyaluronic acid modified gelatin methacryloyl hydrogel for infected wound healing: synergistic photothermal antibacterial and immune-microenvironment remodeling[J]. Int J Biol Macromol, 2026, 341: 150262. DOI:10.1016/j.ijbiomac.2026.150262 |
| [10] | Chen LL, Zhuang QH. Expression level, correlation, and diagnostic value of serum miR-99a in pulmonary fibrosis in patients with acute respiratory distress syndrome[J]. J Cardiothorac Surg, 2025, 20(1): 276. DOI:10.1186/s13019-025-03511-w |
| [11] | Liang YF, Xu YY, Lu BT, et al. Inositol alleviates pulmonary fibrosis by promoting autophagy via inhibiting the HIF-1α-SLUG axis in acute respiratory distress syndrome[J]. Oxid Med Cell Longev, 2022, 2022: 1030238. DOI:10.1155/2022/1030238 |
| [12] | Zhang XC, Ye LF, Tang W, et al. Wnt/β-catenin participates in the repair of acute respiratory distress syndrome-associated early pulmonary fibrosis via mesenchymal stem cell microvesicles[J]. Drug Des Devel Ther, 2022, 16: 237-247. DOI:10.2147/DDDT.S344309 |
| [13] | Liu H, Shi QQ, Tang L, et al. Apelin-13 ameliorates lps-induced endothelial-to-mesenchymal transition and post-acute lung injury pulmonary fibrosis by suppressing transforming growth factor-β1 signaling[J]. Shock, 2023, 59(1): 108-117. DOI:10.1097/SHK.0000000000002046 |
| [14] | Chen QH, Zhang Y, Gu X, et al. Microvesicles derived from mesenchymal stem cells inhibit acute respiratory distress syndrome-related pulmonary fibrosis in mouse partly through hepatocyte growth factor[J]. World J Stem Cells, 2024, 16(8): 811-823. DOI:10.4252/wjsc.v16.i8.811 |
| [15] | Pan X, Huang ZS, Tao NN, et al. Increased circulating levels of SP-D and IL-10 are associated with the development of disease severity and pulmonary fibrosis in patients with COVID-19[J]. Front Immunol, 2025, 16: 1553283. DOI:10.3389/fimmu.2025.1553283 |
| [16] | Yang G, Zhao Y. microRNA-490-3p inhibits inflammatory responses in LPS-induced acute lung injury of neonatal rats by suppressing the IRAK1/TRAF6 pathway[J]. Exp Ther Med, 2021, 21(2): 152. DOI:10.3892/etm.2020.9584 |
| [17] | Zhang Y, Zhu ZR, Cao Y, et al. Rnd3 suppresses endothelial cell pyroptosis in atherosclerosis through regulation of ubiquitination of TRAF6[J]. Clin Transl Med, 2023, 13(9): e1406. DOI:10.1002/ctm2.1406 |
| [18] | Wang JN, Wang F, Ke J, et al. Inhibition of METTL3 attenuates renal injury and inflammation by alleviating TAB3 m6A modifications via IGF2BP2-dependent mechanisms[J]. Sci Transl Med, 2022, 14(640): eabk2709. DOI:10.1126/scitranslmed.abk2709 |
| [19] | Singh AK, Haque M, O'Sullivan K, et al. Suppression of monosodium urate crystal-induced inflammation by inhibiting TGF-β-activated kinase 1-dependent signaling: role of the ubiquitin proteasome system[J]. Cell Mol Immunol, 2021, 18(1): 162-170. DOI:10.1038/s41423-019-0284-3 |
| [20] | Park HB, Baek KH. E3 ligases and deubiquitinating enzymes regulating the MAPK signaling pathway in cancers[J]. Biochim Biophys Acta BBA Rev Cancer, 2022, 1877(3): 188736. DOI:10.1016/j.bbcan.2022.188736 |
| [21] | Sung JS, Ko IG, Hwang L, et al. Pirfenidone alleviates against fine particulate matter-induced pulmonary fibrosis modulating via TGF-β1/TAK1/MKK3/p38 MAPK signaling pathway in rats[J]. Biomedicines, 2025, 13(4): 989. DOI:10.3390/biomedicines13040989 |
| [22] | Pelaia C, Vatrella A, Gallelli L, et al. Role of p38 mitogen-activated protein kinase in asthma and COPD: pathogenic aspects and potential targeted therapies[J]. Drug Des Dev Ther, 2021, 15: 1275-1284. DOI:10.2147/dDDT.s300988 |
| [23] | Liu JM, Liu SH, Fu SC, et al. Tetrabromobisphenol A induced p38-MAPK/AMPKα activation downstream-triggered CHOP signal contributing to neuronal apoptosis and death[J]. Toxicology, 2025, 510: 154014. DOI:10.1016/j.tox.2024.154014 |
| [24] | Yang CM, Yang CC, Hsu WH, et al. Tumor necrosis factor-α-induced C-C motif chemokine ligand 20 expression through TNF receptor 1-dependent activation of EGFR/p38 MAPK and JNK1/2/FoxO1 or the NF-κB pathway in human cardiac fibroblasts[J]. Int J Mol Sci, 2022, 23(16): 9086. DOI:10.3390/ijms23169086 |
| [25] | Norooznezhad AH, Shamshirsaz AA, Hantoushzadeh S. Labor could increase systemic inflammation and cause or deteriorate cytokine storm in COVID-19[J]. Iran J Immunol, 2022, 19(3): 330-336. DOI:10.22034/iji.2022.93951.2267 |
| [26] | Li B, Xia C, He WY, et al. The thyroid hormone analog GC-1 mitigates acute lung injury by inhibiting M1 macrophage polarization[J]. Adv Sci, 2024, 11(44): 2401931. DOI:10.1002/advs.202401931 |
| [27] | Li Y, Zhang H, Li B, et al. Role of FGF19 in regulating mitochondrial dynamics and macrophage polarization through FGFR4/AMPKα-p38/MAPK Axis in bleomycin-induced pulmonary fibrosis[J]. Cytokine, 2025, 193: 156978. DOI:10.1016/j.cyto.2025.156978 |
| [28] | Song ZH, Wang ZQ, Cai JQ, et al. Down-regulating lncRNA KCNQ1OT1 relieves type Ⅱ alveolar epithelial cell apoptosis during one-lung ventilation via modulating miR-129-5p/HMGB1 axis induced pulmonary endothelial glycocalyx[J]. Environ Toxicol, 2024, 39(6): 3578-3596. DOI:10.1002/tox.24201 |
| [29] | Ting C, Aspal M, Vaishampayan N, et al. Fatal COVID-19 and non–COVID-19 acute respiratory distress syndrome is associated with incomplete alveolar type 1 epithelial cell differentiation from the transitional state without fibrosis[J]. Am J Pathol, 2022, 192(3): 454-467. DOI:10.1016/j.ajpath.2021.11.014 |
| [30] | Xu XT, Zhu QW, Niu FF, et al. A2BAR activation attenuates acute lung injury by inhibiting alveolar epithelial cell apoptosis both in vivo and in vitro[J]. Am J Physiol Cell Physiol, 2018, 315(4): C558-C570. DOI:10.1152/ajpcell.00294.2017 |
| [31] | Paik SS, Lee JM, Ko IG, et al. Pirfenidone alleviates inflammation and fibrosis of acute respiratory distress syndrome by modulating the transforming growth factor-β/smad signaling pathway[J]. Int J Mol Sci, 2024, 25(15): 8014. DOI:10.3390/ijms25158014 |
| [32] | Vallée A, Lecarpentier Y, Vallée JN. Thermodynamic aspects and reprogramming cellular energy metabolism during the fibrosis process[J]. Int J Mol Sci, 2017, 18(12): 2537. DOI:10.3390/ijms18122537 |
| [33] | Saferding V, Puchner A, Goncalves-Alves E, et al. microRNA-146a governs fibroblast activation and joint pathology in arthritis[J]. J Autoimmun, 2017, 82: 74-84. DOI:10.1016/j.jaut.2017.05.006 |
| [34] | Zhou Y, Yang GF, Liu JQ, et al. MBD2 promotes epithelial-to-mesenchymal transition (EMT) and ARDS-related pulmonary fibrosis by modulating FZD2[J]. Biochim Biophys Acta BBA Mol Basis Dis, 2025, 1871(5): 167798. DOI:10.1016/j.bbadis.2025.167798 |
| [35] | Yang HW, Lee SA, Shin JM, et al. Glucocorticoids ameliorate TGF-β1-mediated epithelial-to-mesenchymal transition of airway epithelium through MAPK and Snail/Slug signaling pathways[J]. Sci Rep, 2017, 7: 3486. DOI:10.1038/s41598-017-02358-z |
| [36] | Trelford CB, Di Guglielmo GM. Canonical and non-canonical TGFβ signaling activate autophagy in an ULK1-dependent manner[J]. Front Cell Dev Biol, 2021, 9: 712124. DOI:10.3389/fcell.2021.712124 |
| [37] | Aashaq S, Batool A, Ahmad Mir S, et al. TGF-β signaling: a recap of SMAD-independent and SMAD-dependent pathways[J]. J Cell Physiol, 2022, 237(1): 59-85. DOI:10.1002/jcp.30529 |
| [38] | Liu MH, Liu FC, Pan YL, et al. Oxymatrine ameliorated experimental colitis via mechanisms involving inflammatory DCs, gut microbiota and TLR/NF-κB pathway[J]. Int Immunopharmacol, 2023, 115: 109612. DOI:10.1016/j.intimp.2022.109612 |
| [39] | Zhang YY, Wang L, Guo H, et al. Levetiracetam attenuates diabetes-associated cognitive impairment and microglia polarization by suppressing neuroinflammation[J]. Front Pharmacol, 2023, 14: 1145819. DOI:10.3389/fphar.2023.1145819 |
| [40] | Astone M, Tesoriero C, Schiavone M, et al. Wnt/β-catenin signaling regulates Yap/taz activity during embryonic development in zebrafish[J]. Int J Mol Sci, 2024, 25(18): 10005. DOI:10.3390/ijms251810005 |
| [41] | Ma TW, Ruan HR, Lv LY, et al. Oleanolic acid, a small-molecule natural product, inhibits ECM degeneration in osteoarthritis by regulating the Hippo/YAP and Wnt/β-catenin pathways[J]. Food Funct, 2023, 14(22): 9999-10013. |
| [42] | Yang M, Han YM, Han Q, et al. KCTD11 inhibits progression of lung cancer by binding to β-catenin to regulate the activity of the Wnt and Hippo pathways[J]. J Cell Mol Med, 2021, 25(19): 9411-9426. DOI:10.1111/jcmm.16883 |
| [43] | Lüönd F, Pirkl M, Hisano M, et al. Hierarchy of TGFβ/SMAD, Hippo/YAP/TAZ, and Wnt/β-catenin signaling in melanoma phenotype switching[J]. Life Sci Alliance, 2021, 5(2): e202101010. DOI:10.26508/lsa.202101010 |
| [44] | Bhole RP, Kadam N, Karwa PN, et al. Advances in targeting p38 MAPK for cancer therapy: insights from molecular pharmacology and medicinal chemistry[J]. Mol Divers, 2025: 1-29. DOI:10.1007/s11030-025-11291-7 |
| [45] | Ganguly P, MacLeod T, Wong C, et al. Revisiting p38 mitogen-activated protein kinases (MAPK) in inflammatory arthritis: a narrative of the emergence of MAPK-activated protein kinase inhibitors (MK2i)[J]. Pharmaceuticals, 2023, 16(9): 1286. DOI:10.3390/ph16091286 |
| [46] | Gipson DS, Hladunewich MA, Lafayette R, et al. Assessing the impact of losmapimod on proteinuria in idiopathic focal segmental glomerulosclerosis[J]. Kidney Int Rep, 2020, 5(8): 1228-1239. DOI:10.1016/j.ekir.2020.05.024 |
| [47] | Lu ZR, Deng MG, Ma GS, et al. TRIM38 protects H9c2 cells from hypoxia/reoxygenation injury via the TRAF6/TAK1/NF-κB signalling pathway[J]. PeerJ, 2022, 10: e13815. DOI:10.7717/peerj.13815 |
| [48] | Xue HY, Liu MW, Yang G. Resveratrol suppresses lipopolysaccharide-mediated activation of osteoclast precursor RAW 264.7 cells by increasing miR-181a-5p expression[J]. Int J Immunopathol Pharmacol, 2023, 37: 03946320231154995. DOI:10.1177/03946320231154995 |
| [49] | Guo YL, Min JL, Chang BC, et al. Exploring the role of TRAF6-TAK1 pathway in podocyte pyroptosis and its implications for primary membranous nephropathy therapy[J]. Inflammation, 2025, 48(5): 3050-3065. DOI:10.1007/s10753-025-02249-w |
| [50] | Kim S, Jang SH, Kim MJ, et al. Hybrid nutraceutical of 2-ketoglutaric acid in improving inflammatory bowel disease: Role of prebiotics and TAK1 inhibitor[J]. Biomed Pharmacother, 2024, 171: 116126. DOI:10.1016/j.biopha.2024.116126 |
| [51] | Liu H, Li NN, Kuang G, et al. Protectin D1 inhibits TLR4 signaling pathway to alleviate non-alcoholic steatohepatitis via upregulating IRAK-M[J]. Free Radic Biol Med, 2024, 210: 42-53. DOI:10.1016/j.freeradbiomed.2023.11.011 |